Доставляемый дыхательными путями ацетат жирных кислот с короткой цепью повышает противовирусный иммунитет при риновирусной инфекции
Jul 18, 2023
Фон:
Известно, что микробиота играет важную роль в регуляции иммунитета посредством высвобождения иммуномодулирующих метаболитов, таких как короткоцепочечные жирные кислоты (КЖК). Риновирусы (РВ) вызывают заболевания верхних дыхательных путей и провоцируют обострения астмы и хронической обструктивной болезни легких посредством плохо изученных механизмов. Местные взаимодействия между SCFAs и противовирусными иммунными реакциями в дыхательных путях ранее не исследовались.
Короткоцепочечные жирные кислоты (КЖК) представляют собой органические кислоты, образующиеся в результате ферментации целлюлозы и других пищевых волокон полезными бактериями в кишечнике. Исследования показали, что SCFAs оказывают важное влияние на иммунную систему человека.
Во-первых, SCFAs могут способствовать целостности барьера слизистой оболочки кишечника и усиливать барьерную функцию кишечника. Кишечный барьер является первой линией защиты кишечной среды. Если кишечный барьер поврежден, вредные вещества могут попасть в систему кровообращения через стенку кишечника, вызывая воспаление и нарушение работы иммунной системы. Исследования показали, что SCFAs могут повышать целостность кишечного барьера и снижать риск воспаления кишечника, способствуя дифференцировке и пролиферации клеток слизистой оболочки, увеличивая толщину слизистой оболочки и выработку слизи.
Во-вторых, SCFAs выполняют функцию регулирования иммунных клеток. Исследования показали, что SCFAs могут способствовать дифференцировке и пролиферации иммунных клеток и регулировать функцию иммунных клеток. SCFAs также могут снижать выработку воспалительных цитокинов и ингибировать активность иммунных клеток, тем самым защищая иммунную систему человека. Другие исследования также показали, что SCFAs могут регулировать функцию Т-клеток, усиливать аутоиммунную функцию и играть определенную роль в профилактике и лечении аутоиммунных заболеваний.
Короче говоря, короткоцепочечные жирные кислоты играют важную роль в нормальном функционировании иммунной системы человека. Мы должны обратить внимание на разумное сочетание диетической структуры, богатой пищевыми волокнами, чтобы увеличить количество и разнообразие полезных бактерий в кишечнике, тем самым способствуя выработке SCFAs и поддерживая стабильность и здоровье иммунной системы человека. С этой точки зрения нам необходимо повышать свой иммунитет. Цистанхе может значительно улучшить иммунитет, потому что Цистанхе богат различными антиоксидантными веществами, такими как витамин С, витамин С, каротиноиды и т. д. Эти ингредиенты могут удалять свободные радикалы и уменьшать окислительный стресс. Стимулировать и повысить сопротивляемость иммунной системы.
Преимущества цистанхе тубулозы Click
Цель:
Мы стремились выяснить, может ли манипулирование легочными метаболитами путем введения SCFAs в легкие модулировать противовирусный иммунитет к инфекции RV.
Методы:
Мы изучили влияние интраназального введения ацетата, бутирата и пропионата SCFAs на базальную экспрессию противовирусных сигнатур и ацетата на мышиной модели инфекции RV и в линиях эпителиальных клеток легких, инфицированных вирусом RV. Мы дополнительно оценили влияние ацетата, бутирата и пропионата на инфекцию РВ в дифференцированных первичных бронхиальных эпителиальных клетках человека.
Полученные результаты:
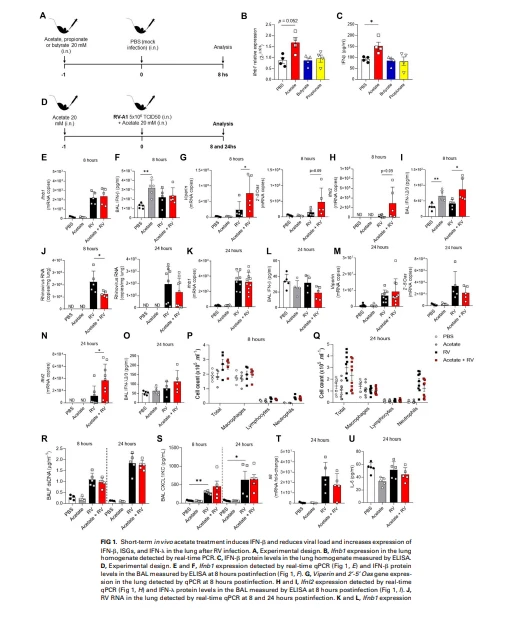
Интраназальное введение ацетата индуцировало базальную активацию IFN-β, эффект, не наблюдаемый при применении других SCFAs. Экспрессия RIG-I, индуцированная бутиратом. Интраназальное введение ацетата мышам увеличивало экспрессию интерферон-стимулированного гена и IFN-1 во время инфекции RV и снижало вирусную нагрузку на легкие через 8 часов после заражения. Ацетат ослаблял вызванные вирусом провоспалительные реакции с ослаблением экспрессии легочного муцина и IL-6, наблюдаемых на 4-й и 6-й дни после заражения. Этот интерферон-усиливающий эффект ацетата был подтвержден на линиях клеток бронхиального и альвеолярного эпителия человека. В дифференцированных первичных бронхиальных эпителиальных клетках лечение бутиратом лучше модулировало экспрессию генов IFN-b и IFN-1 во время инфекции RV.
Выводы:
SCFAs усиливают противовирусный иммунитет и снижают вирусную нагрузку и провоспалительные реакции во время инфекции RV. (J Allergy Clin Immunol 2023;151:447-57.)
Резидентные сообщества бактерий, присутствующие на поверхности слизистых оболочек (микробиота), играют центральную роль в иммунном гомеостазе и определяют реакцию на воспалительные и инфекционные состояния, включая астму, колит, бактериальные и вирусные инфекции.1-5 Бактериальные метаболиты, такие как короткоцепочечные жирные кислоты (КЦЖК), в основном ацетат, бутират и пропионат, в настоящее время являются общепризнанным связующим звеном между кишечной микробиотой и клетками-хозяевами.6,7 Эти молекулы образуются в результате метаболизма пищевых волокон компонентами кишечной микробиоты. SCFAs имеют как местные, так и системные эффекты. Они модулируют активацию и функцию иммунных клеток с помощью механизмов, включающих активацию рецепторов, связанных с G-белком (например, Gpr41, Gpr43 или Gpr109a) и ингибирование деацетилаз гистонов, и было показано, что они способствуют гомеостазу слизистой оболочки и пероральной толерантности. Совсем недавно было описано существование микробиоты в нижних дыхательных путях, и новые данные указывают на то, что респираторные комменсалы также являются метаболически активными организмами, способными продуцировать метаболиты с иммуномодулирующей способностью, такие как SCFAs. Таким образом, SCFAs либо высвобождаются локально легочной микробиотой, либо полученные из кишечной микробиоты, могут играть важную роль в регуляции иммунитета. Однако противовирусный эффект SCFAs против риновирусов (RV) неизвестен.
РВ несут ответственность за огромное бремя инфекционных заболеваний во всем мире, вызывая легкие самоограничивающиеся простуды у здоровых людей и провоцируя обострения у людей с хроническими заболеваниями легких, такими как астма или хроническая обструктивная болезнь легких (ХОБЛ). Эти заболевания приводят к значительным экономическим затратам на инфраструктуру здравоохранения во всем мире. В настоящее время не существует эффективных методов лечения или лицензированных вакцин против РВ, поскольку большое разнообразие серотипов/штаммов создало серьезные проблемы для исследований.9 Таким образом, срочно необходима разработка новых профилактических и терапевтических подходов к РВ-инфекциям. Кишечный микробиом можно терапевтически манипулировать, чтобы обеспечить клинические преимущества при кишечных инфекционных заболеваниях (например, Clostridium difficile). Потенциал введения респираторных комменсалов или связанных с ними метаболитов для аналогичного усиления легочного антимикробного иммунитета остается неизученным.10
Ранее мы продемонстрировали, что введение диеты с высоким содержанием клетчатки или ацетата, бутирата и пропионата SCFA защищало мышей от инфекции респираторно-синцитиального вируса (RSV). ISGs) в легких при инфицировании РСВ. Кроме того, мы обнаружили, что ацетат, вводимый непосредственно в дыхательные пути, защищает от инфекции RSV за счет увеличения экспрессии ISG в легких. Поэтому мы предположили, что прямое введение ацетата в дыхательные пути для повышения концентрации местных микробных метаболитов будет иметь аналогичные защитные свойства. Влияние на РВ-инфекцию. Здесь мы показываем, что введение ацетата in vivo мышам увеличивает противовирусные интерфероны типа I и типа III (IFN), снижает репликацию RV и ослабляет вызванную вирусом иммунопатологию. При рассмотрении противовирусного ответа определенных типов клеток in vitro на более широкий спектр SCFA мы обнаружили, что эти соединения не влияют на IFN-ответ альвеолярных макрофагов и по-разному воздействуют на эпителий, с более выраженным противовирусным усиливающим эффектом, наблюдаемым у бутирата по сравнению с с другими SCFAs, предполагая, что эффекты in vivo могут быть связаны с более сложными межклеточными взаимодействиями. Эти данные свидетельствуют о том, что манипуляции со средой легочных микробных метаболитов могут представлять собой новый подход к профилактике или лечению респираторных вирусных инфекций.

МЕТОДЫ
Заявление об этике
Все эксперименты на животных проводились в соответствии с Законом о животных 1986 г. и рекомендациями «Исследования на животных: отчетность об экспериментах in vivo» (ARRIVE) в соответствии с протоколом, утвержденным руководящими принципами Министерства внутренних дел Великобритании (лицензия на проект PPL № P07D80C24).
Распространение RV и количественная оценка
Для исследований линий клеток мыши и человека малую группу RV серотипа A1 (RV-A1) выращивали в клетках Ohio HeLa (Европейская коллекция клеточных культур). Инфицированные клетки собирали через 24 часа, вирус концентрировали и очищали, после чего проводили анализ TCID50 (50-процентная инфекционная доза культуры ткани) для оценки титра вируса, как описано ранее.12 Для исследований первичных бронхиальных эпителиальных клеток (BEC) человека , RV-A1 размножали в ячейке RD-ICAM-1 из собственного запаса, выделенного из клинических образцов, и секвенировали для подтверждения идентичности. Титрование RV-A1 проводили путем инфицирования клеток RD-ICAM-1 последовательно разбавленным RV-A1 с последующим наблюдением за цитопатическими эффектами и анализом TCID50 для оценки вирусного титра.
Исследование мышей
Шестинедельных самок мышей BALB/c приобретали в Harlan Laboratories (Дерби, Великобритания) и содержали в особых условиях отсутствия патогенов в Имперском колледже Лондона (Великобритания). Мышей предварительно обрабатывали интраназально 50 мл ацетата натрия, бутирата или пропионата (Sigma-Aldrich, Сент-Луис, Миссури) под легкой изофлуорановой анестезией. В некоторых экспериментах мышей впоследствии инфицировали интраназально 50 мл RV (5 3 106 TCID50) через 24 часа. Доза лечения ацетатом составляла 20 мМ в соответствии с нашим предыдущим исследованием с использованием того же подхода.11 Лечение ацетатом вводили интраназально каждые 24 часа после заражения.
Количественная ПЦР в реальном времени
Тотальную РНК из легкого (100 мг легочной ткани) и клеточный лизат выделяли с помощью набора RNeasy Mini (Qiagen, Hilden, Germany) в соответствии с инструкциями производителя. кДНК синтезировали с использованием случайных гексамерных праймеров (набор OmniscriptRT, Qiagen). кДНК первой цепи использовали для количественного определения IFN-b, IFN-1, Viperin, MuC5AC (мышь и человек), OAS1, RIG-I (Ddx58), MAVS, MDA-5 (мышь) и копий RV с использованием Анализы TaqMan с праймерами и зондами, как сообщалось ранее.13 Для абсолютного количественного определения каждый ген нормализовали до уровня 18s рРНК, а точные копии интересующего гена рассчитывали с использованием стандартной кривой, полученной при амплификации плазмидной ДНК. В качестве альтернативы для расчета экспрессии генов использовали 2-DDCt (кратность изменения). Условия ПЦР соответствовали протоколам TaqMan Universal PCR Master Mix (Thermo Fisher Scientific, Waltham, Mass). Анализ экспрессии генов проводили с использованием StepOne (Applied Biosystems, Waltham, Mass).

бронхоальвеолярный лаваж
Мышей подвергали эвтаназии с внутрибрюшинным введением передозировки раствора пентобарбитона и канюлировали трахеи. Легкие промывали 3 раза стерильным PBS. Жидкость бронхоальвеолярного лаважа (БАЛ) центрифугировали, супернатант собирали для измерения двухцепочечной ДНК, а осадки суспендировали для общего и дифференциального подсчета клеток. Для дифференциального подсчета клеток цитоспиновые препараты окрашивали MayGrunwald-Giemsa, и процедура подсчета выполнялась опытным исследователем вслепую.
Измерение двухцепочечной ДНК
Двухцепочечную ДНК измеряли в жидкости БАЛ с использованием реагента для двухцепочечной ДНК Quant-iT PicoGreen (Invitrogen, Карлсбад, Калифорния) в соответствии с протоколом производителя.
Гистологический анализ
После БАЛ легкие перфузировали PBS через сердце и раздували 4-процентным параформальдегидом, а затем левое легкое фиксировали в 4-процентном параформальдегиде на 24 часа. Затем кусочки заливали в парафиновые блоки, разрезали на срезы 5- мм, окрашивали гематоксилином и эозином. Воспалительный инфильтрат измеряли в микрометрах и выполняли 10 измерений, начиная от конца бронхиального или сосудистого эпителия до конца воспалительного инфильтрата, с использованием программного обеспечения Olympus CellSens Standard (Olympus Corporation, Токио, Япония). Все подсчеты проводились вслепую по условиям эксперимента.
Проточной цитометрии
Клетки выделяли из легкого перфузией PBS, а затем расщепляли в среде RPMI 1640 с добавлением 1 мг/мл коллагеназы IV (Invitrogen-Gibco, Waltham, Mass). Клетки, выделенные из легкого и БАЛ, инкубировали с блоком мышиных Fc (#553141 BD Biosciences, Franklin Lakes, NJ) в течение 20 минут. Клетки промывали и окрашивали поверхностными антителами к CD45 (1:200, #557235, клон 30-F11, BD Biosciences). Для внутриклеточного окрашивания клетки фиксировали цитофиксом/цитоплазмой (BD Biosciences) и анти-RIG-I (1:50, #35H2L48, ThermoFisher Scientific, Waltham, Mass), а после инкубации клетки метили вторичным козьим антителом к кроличьему IgG. H&L Cy3-конъюгированный (1:1000, # ab97075, Abcam, Кембридж, Массачусетс). Образцы были получены на проточном цитометре BD FACS Canto-II (BD Biosciences). Данные анализировали в программном обеспечении FlowJo (версия 10, Tree Star, Inc, Ashland, VA).
Исследования in vitro на эпителиальных клеточных линиях
BEC человека (BEAS-2B) и клетки легочного эпителия человека (A549) были приобретены в ATCC (Манассас, Вирджиния) и культивированы, как описано ранее.13 Клетки высевали по отдельности в концентрации 1.5 3 105 клеток/мл в 12-луночных планшетах. Через двадцать четыре часа после посева клетки обрабатывали 400 мМ ацетата натрия (Sigma-Aldrich) в течение еще 24 часов. Затем клетки инфицировали RV-A1 (множественность инфекции [MOI] 2) в течение 1 часа, после чего вирус удаляли, клетки промывали и добавляли новую среду с добавлением 5% FBS. Дальнейшую обработку ацетатом (400 мМ) добавляли сразу после инфицирования и каждые 24 часа до сбора клеток.
Сбор первичных BEC и одобрение этики
BEC от здорового некурящего человека были собраны из бронхиальных смывов во время бронхоскопии с письменного информированного согласия. Все эксперименты были проведены Комитетом по этике службы здравоохранения района Хантер, Новая Англия (08.05.10.03.09) и Комитетом по безопасности Университета Ньюкасла (H-163-1205).
Условное перепрограммирование BEC и культур воздушно-жидкостного интерфейса
BEC были условно перепрограммированы с помощью ингибитора rho-ассоциированной протеинкиназы (конечная концентрация 10 мМ) и в сочетании с облученными фибробластами NIH-3T3 в монослойных культурах, как описано ранее.14,15 Условно перепрограммированные среды состояли из соотношение 1:2 среды Игла, модифицированной Дульбекко (с высоким содержанием глюкозы, 1 L-глютамина)/Ham's F12, дополненной 5% FCS, гидрокортизоном (400 нг/мл), инсулином (5 мг/мл), рекомбинантным эпителиальным фактором роста человека (10 нг /мл), холерный токсин (8,4 нг/мл), аденин (23,9 мг/мл) и 0,2% пенициллин-стрептомицин. }well полиэфирные мембраны Transwell и дифференцировались на границе воздух-жидкость (ALI) в течение 25 дней, как описано ранее.17 Эксперименты проводились с n 5 4 биотехническими повторами. Стандартный альциановый синий, pH 2,5 и периодическое окрашивание кислотой-Шиффом выполняли на срезах ALI толщиной 5- мм для визуализации псевдомногослойного эпителия (см. рис. E1 в онлайн-репозитории этой статьи на сайте www.jacionline.org).
Обработка SCFAs в культуре BEC
Перед инфицированием культуры ALI обрабатывали базально 100, 400 или 1600 мМ ацетата, бутирата или пропионат в течение 24 часов в конечной среде ALI объемом 6{{22}0 мл, состоящей из базовой среды бронхиального эпителия и среды Игла, модифицированной Дульбекко (соотношение 5{30}}:50), содержащей гидрокортизон (0,1 процента) , бычий инсулин (0,1 процента), адреналин (0,1 процента), трансферрин (0,1 процента), экстракт бычьего гипофиза (0,4 процента) и этаноламин (80 мМ), MgCl2 (0,3 мМ), MgSO4 (0,4 мМ), БСА (0,5 мг). /мл), амфотерицин B (250 мг/мл), полностью транс-ретиноевая кислота (30 нг/мл), пенициллин/стрептомицин (2 процента) и рекомбинантный эпителиальный фактор роста человека (0,5 нг/мл). В день заражения базовые среды заменяли новыми конечными средами ALI и обработкой SCFA, которую оставляли до анализа конечной точки.
РВ-инфекция и забор проб
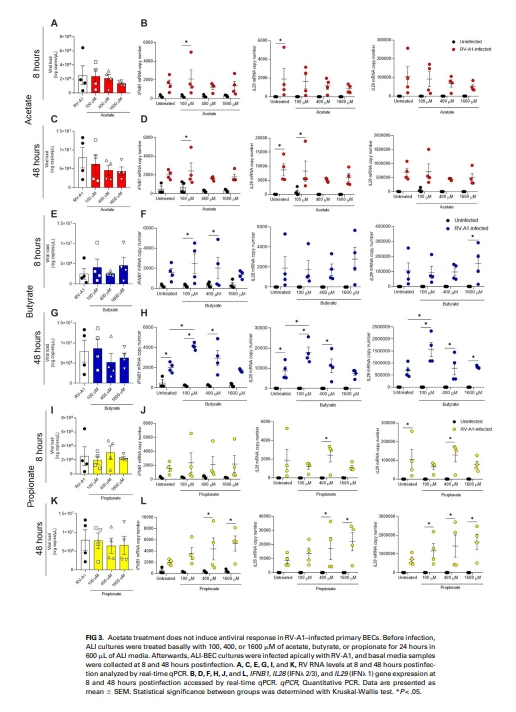
Культуры ALI-BEC инфицировали апикально RV-A1. Первоначально запас RV-A1 разводили для получения MOI 0,1 и добавляли к апикальной поверхности культур на 2 часа в 50 мл базисной среды бронхиального эпителия с добавками, 1 процент инсулина- трансферрин-селен и 0,5% линолевой кислоты. Затем инфекционную среду заменяли 500 мл свежей базовой среды бронхиального эпителия (с добавками) до конца эксперимента. Апикальный смыв (100 мл PBS) и образцы базальной среды собирали через 8- и 48- часов после инфицирования и хранили при 280°С. Клетки хранили в 350 мл RLT-буфера (Qiagen), содержащего 1 процент 2-меркаптоэтанола, при 280°C для анализа экспрессии генов с помощью ОТ-количественной ПЦР (рис. E2, C).
В соответствии с усиленными противовирусными иммунными эффектами ацетат имел тенденцию к снижению количества копий вирусной РНК (рис. E2, D) и снижению нагрузки живым вирусом (рис. E2, E) через 48 часов после заражения. В клетках BEAS2B, линии BEC, мы наблюдали, что обработка ацетатом увеличивала экспрессию мРНК IFNB1 через 8 часов после заражения и мРНК IFNL2 через 4 и 8 часов после заражения (рис. E2, F). Не было значительного влияния на экспрессию виперина (рис. E2, F). В отличие от воздействия на вирусную нагрузку, наблюдаемого в клетках A459, ацетат не влиял на количественную оценку вирусной РНК или TCID50 в клетках BEAS2B (рис. E2, G и H).
Влияние лечения SCFAs на противовирусный ответ в ALI-BEC-инфицированных культурах
Наблюдая усиливающий эффект ацетата в клеточных линиях легочного эпителия, мы затем попытались оценить эффекты в модели первичных эпителиальных клеток, дифференцированных в ALI (экспериментальная система, которая более точно воспроизводит клетки in vivo). Дифференциацию и морфологию клеток подтверждали образованием бокаловидных клеток (периодическое окрашивание кислотой по Шиффу) (рис. E1).
Ацетат значительно повышал IFNB1 и IFN12/3 (IL28) на инфицированных RV клетках BEC по сравнению с неинфицированными клетками (рис. 3, B и D), но не было никакой разницы по сравнению с необработанными инфицированными RV клетками. Ацетат имел тенденцию к снижению вирусной РНК либо через 8 часов, либо через 48 часов после заражения RV-A1 (рис. 3, A и B). Учитывая, что ацетат оказывает менее явное усиливающее действие на индукцию RV ответов IFN типа I в первично дифференцированных эпителиальных клетках, мы расширили наши исследования, чтобы определить, оказывают ли бутират или пропионат заметные эффекты. Бутират и пропионат также повышали экспрессию мРНК генов IFNb, IFN12/3 (IL28) и IFN11 (IL29) по сравнению с неинфицированными клетками (рис. 3, F, G, H и L). Обработка бутиратом увеличивала экспрессию IFNB1, IL28 и IL29 через 48 часов после инфицирования вирусом RV по сравнению с необработанными клетками, инфицированными RV, хотя этого эффекта было недостаточно, чтобы повлиять на вирусную нагрузку (рис. 3, I, J, K, и я). Мы не обнаружили супрессивного эффекта на экспрессию MUC5AC, индуцированную RV, при любой дозе лечения SCFAs (см. рис. E3, AC в онлайн-репозитории этой статьи на сайте www.jacionline.org). В совокупности эти данные показывают, что, в отличие от данных, полученных на мышах и клеточных линиях человека, SCFAs оказывают более ограниченное влияние на противовирусный иммунитет в дифференцированных первичных эпителиальных клетках.

Отсутствие влияния SCFAs на ответы IFN типа I в альвеолярных макрофагах
Чтобы выяснить, был ли противовирусный эффект ацетата и/или других SCFAs обусловлен модуляцией альвеолярных макрофагов (основной клетки, реагирующей на ранний ответ во время вирусных инфекций и ключевого источника IFN типа I), мы оценили влияние введения SCFAs на ex vivo. противовирусные ответы в макрофагах, стимулированных RVA1. Мы обнаружили, что введение SCFAs не оказало значительного влияния на индукцию Ifnb1, Viperin или OAS1 с помощью RV, что указывает на то, что иммуностимулирующие эффекты SCFAs не проявляются через воздействие на альвеолярные макрофаги (см. рис. E4, AC, в этой статье). Репозиторий на www.jacionline.org).
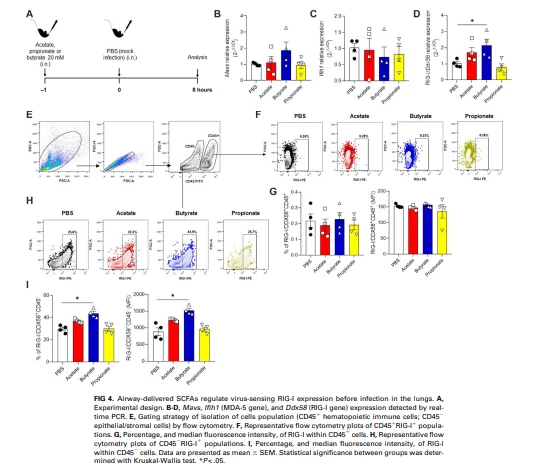
Доставляемые дыхательными путями SCFAs усиливали IFN-b и чувствительные к вирусу рецепторы до инфицирования вирусом RV
Чтобы получить дополнительное механистическое представление о противовирусных путях, участвующих в усилении IFN типа I с помощью SCFA, мы затем исследовали влияние этих соединений на гены, чувствительные к противовирусным путям. Мы снова интраназально вводили 3 SCFAs (ацетат, бутират и пропионат) в концентрации 20 мМ в течение 24 часов (рис. 4, A). Мы не обнаружили влияния какого-либо из SCFAs на экспрессию сенсора цитозольной вирусной РНК MDA5 или его адаптерной молекулы MAVS (рис. 4, B и C). Наоборот, введение бутирата (но не других SCFA) повышало экспрессию мРНК RIGI (рис. 4, D). Было обнаружено, что усиливающий эффект бутирата на экспрессию RIG-I проявляется именно в эпителиальных/стромальных клетках легких (CD452), при этом эффект не наблюдается в гемопоэтических иммунных клетках (CD451) (рис. 4, EI). В совокупности эти данные указывают на то, что различные SCFAs могут действовать через специфические противовирусные чувствительные пути для регуляции врожденного иммунитета.
ОБСУЖДЕНИЕ
Это исследование дает новое представление о потенциальной пользе введения микробных метаболитов непосредственно в дыхательные пути для повышения врожденного иммунитета легких. Пищевые волокна и короткоцепочечные жирные кислоты, полученные из кишечной микробиоты, уже давно ассоциируются с благотворным влиянием на здоровье легких. Рандомизированное плацебо-контролируемое исследование показало, что использование пребиотиков (клетчатки) у недоношенных детей предотвращает инфекцию РВ в течение первого года жизни.20 Пищевые волокна представляют собой неперевариваемые полисахариды, которые могут расщепляться до КЦЖК путем микробной ферментации. Исследования также показали, что SCFAs могут модулировать здоровую микробиоту кишечника. 21 Наше исследование подчеркивает, что введение SCFAs в дыхательные пути также может оказывать прямое локальное положительное влияние на реакцию хозяина. Мы идентифицировали отличный от диетического воздействия на микробиоту механизм, который включает прямую легочную стимуляцию врожденного противовирусного иммунитета с помощью SCFAs.
Наши данные показывают, что введение ацетата SCFA увеличивает базальную экспрессию противовирусных иммунных медиаторов в устойчивом состоянии. Концептуально это согласуется с ролью ацетата в подготовке легких к более сильному раннему высвобождению интерферонов. Это подтверждается нашими выводами о том, что введение ацетата также повышает индукцию IFN и ISG в ответ на инфекцию RV у мышей. Это было связано со снижением вирусной нагрузки и более поздним подавлением провоспалительных реакций и продукции слизи. Все эти эффекты считаются полезными в контексте острой вирусной инфекции. Наши данные согласуются с литературными данными, показывающими, что ацетат способствует широкому спектру преимуществ для здоровья, таких как улучшение сердечной функции, усиление выработки эритроцитов и формирование иммунной памяти.22 Более того, ацетат связан с модуляцией различных функции иммунного ответа23-25 и борьбы с респираторными заболеваниями.
Мы также изучили влияние введения ацетата на вирусную инфекцию эпителия, поскольку он является основным местом первоначальной репликации вируса. Мы обнаружили аналогичный противовирусный эффект ацетата в линиях клеток легких человека, при этом более сильные эффекты наблюдались в клетках A549, чем в клетках BEAS-2B (которые, как известно, экспрессируют более высокие базовые уровни IFN и ISG)27. ,28 Это может частично объяснить, почему обработка ацетатом оказывает меньшее влияние на BEAS-2B-клетки. Напротив, мы наблюдали, что в первично дифференцированных BEC человека (ALI-BEC) не было явного влияния ацетата на ответы IFN типа I на RV. Кроме того, мы также оценили способность ацетата и других SCFAs модулировать ответы IFN типа I в альвеолярных макрофагах, культивируемых ex vivo, и аналогичным образом не обнаружили эффекта. Это несоответствие между данными in vivo и in vitro может свидетельствовать о том, что множественные типы клеток и межклеточные связи могут быть ответственны за отчетливый фенотип, наблюдаемый in vivo, с менее мощным эффектом, наблюдаемым при обработке изолированных клеток SCFAs.
Хотя основное внимание в нашем исследовании было направлено на оценку воздействия SCFAs на врожденный противовирусный иммунитет, возможно, что могут иметь место побочные эффекты на адаптивные иммунные ответы, и будущие исследования могут быть сосредоточены на потенциальном воздействии на популяции и продукцию T- и B-лимфоцитов. нейтрализующих антител.
Следует также отметить, что в используемой нами мышиной модели происходит относительно ограниченная (~24-36 часов) репликация вируса, хотя все измеренные конечные точки зависят от репликации.12,29 Дальнейшие исследования с использованием штаммов вируса, адаптированных к мышам. там, где происходит более устойчивая репликация вируса, могут проявляться более глубокие и устойчивые эффекты. Кроме того, наши эксперименты проводились исключительно на самках мышей, и дальнейшие исследования должны подтвердить, возникают ли аналогичные эффекты у самцов.
Хотя ацетат имел ограниченные эффекты при ALI-BEC, мы наблюдали, что введение бутирата может усиливать индукцию RV ответов IFN I типа. Эти данные контрастируют с исследованием Chemudupati et al.,30 которое продемонстрировало супрессивный эффект бутирата на ответы IFN I типа. Однако в этом исследовании использовались гораздо более высокие концентрации бутирата, а также основное внимание уделялось различным респираторным вирусам.
Образование слизи в легких является характеристикой инфекции РВ, что приводит к усилению клинической тяжести и обострению астмы и ХОБЛ,31,32 в частности, за счет усиления MUC5AC воспаления дыхательных путей.33 Мы показали, что лечение ацетатом снижало экспрессию Muc5AC в легких на 4-й и 6 постинфекционный. Соответственно, было показано, что SCFAs ослабляют выработку слизи в легких при гриппозной инфекции34 и аллергическом воспалении дыхательных путей.34,35 Однако в клетках ALI-BEC ацетат не модулирует экспрессию гена Muc5AC, хотя следует отметить, что более поздние временные точки были изменены. не обследован. Наше наблюдение за снижением экспрессии муцина у мышей, получавших ацетат и инфицированных вирусом, согласуется с нашими предыдущими выводами о том, что IFN типа I отрицательно регулирует экспрессию Muc5ac муцина основных дыхательных путей во время вирусной инфекции.14 Молекулярные механизмы, посредством которых это происходит, неясны. , хотя предыдущие данные показывают, что воспаление типа 2, опосредованное IL -13, может играть важную роль в индукции MUC5AC.36,37 Дальнейшие исследования должны быть направлены на более полное понимание того, как ацетат может влиять на выработку слизи в дыхательных путях.

Чтобы изучить молекулярные механизмы, с помощью которых SCFAs индуцируют IFN, мы дополнительно измерили экспрессию генов, чувствительных к антивирусным путям. Мы наблюдали, что бутират и, в меньшей степени, ацетат могут индуцировать экспрессию RIG-I в эпителиальных клетках легких мышей, не подвергавшихся лечению. Наши данные свидетельствуют о том, что эти короткоцепочечные жирные кислоты усиливают чувствительность к вирусу, подготавливая легкие к усиленному врожденному ответу на вирусную инфекцию.
Нарушение продукции IFN типа I ex vivo при инфекции RV было показано в эпителиальных клетках дыхательных путей как при астме, так и при ХОБЛ.38,39 Предполагается, что этот дефект повышает восприимчивость к вирус-индуцированным обострениям у этих людей. Механизмы, вызывающие эти дефекты, неизвестны. Необходима дальнейшая работа с использованием животных моделей или систем культивирования больных клеток, чтобы определить, приводит ли микробный дисбиоз, наблюдаемый при астме и ХОБЛ, к относительному дефициту ацетата или других SCFAs, который можно скорректировать путем введения для восстановления нарушенного противовирусного иммунитета.
Таким образом, использование SCFAs для лечения инфекции RV связано с увеличением продукции IFN типа I и типа III, центральных компонентов легочного противовирусного иммунного ответа. Это исследование подчеркивает, что введение в дыхательные пути микробных метаболитов, таких как SCFAs, может оказывать благотворное влияние на противовирусный иммунитет и потенциально может уменьшить тяжесть респираторных вирусных заболеваний.
ИСПОЛЬЗОВАННАЯ ЛИТЕРАТУРА
1. Тромпетт А., Голлвитцер Э.С., Ядава К., Зихельштиль А.К., Шпренгер Н., Нгом-Брю С. и др. Метаболизм пищевых волокон микробиотой кишечника влияет на аллергические заболевания дыхательных путей и кроветворение. Nat Med 2014;20:159-66.
2. Thorburn AN, McKenzie CI, Shen S, Stanley D, Macia L, Mason LJ, et al. Доказательства того, что астма является заболеванием, связанным с развитием, на которое влияет диета матери и бактериальные метаболиты. Национальная коммуна 2015;6:7320.
3. Ривера-Чавес Ф., Чжан Л.Ф., Фабер Ф., Лопес К.А., Биндлосс М.Х., Олсан Э.Е. и соавт. Истощение клостридий, продуцирующих бутират, из микробиоты кишечника приводит к аэробной экспансии сальмонелл в просвете. Cell Host Microbe 2016;19:443-54.
4. Fachi JL, Secca C, Rodrigues PB, Mato FCP, Di Luccia B, Felipe JS и другие. Ацетат координирует ответы нейтрофилов и ILC3 против C. difficile посредством FFAR2. J Exp Med 2020;217:jem.20190489.
5. Antunes KH, Fachi JL, de Paula R, da Silva EF, Pral LP, Dos Santos AA, et al. Ацетат, полученный из микробиоты, защищает от инфекции респираторно-синцитиального вируса посредством реакции интерферона GPR43-типа 1. Национальная коммуна 2019;10:3273.
6. Корреа-Оливейра Р., Факи Дж. Л., Виейра А., Сато Ф. Т., Виноло М. А. Регуляция функции иммунных клеток короткоцепочечными жирными кислотами. Clin Transl Immunol 2016; 5:e73.
7. Koh A, De Vadder F, Kovatcheva-Datchary P, Backhed F. От пищевых волокон к физиологии хозяина: жирные кислоты с короткой цепью как ключевые бактериальные метаболиты. Ячейка 2016;165: 1332-45.
8. Сулейман И., Ву Б.Г., Ли Ю., Цай Дж.К., Саутхофф М., Скотт А.С. и др. Функциональное геномное профилирование микробиома нижних дыхательных путей для регистрации активного микробного метаболизма. Евро Респир J 2021;58:2003434.
9. Гланвилл Н., Джонстон С.Л. Проблемы разработки кросс-серотипной риновирусной вакцины. Curr Opin Virol 2015;11:83-8.
10. Spacova I, De Boeck I, Bron PA, Delputte P, Lebeer S. Местная микробная терапия против респираторных вирусных инфекций. Trends Mol Med 2021;27:538-53.
11. Antunes KH, Stein RT, Franceschina C, da Silva EF, de Freitas DN, Silveira J, et al. Ацетат короткоцепочечной жирной кислоты вызывает противовирусный ответ, опосредованный RIG-I, в клетках младенцев с респираторно-синцитиальным вирусным бронхиолитом. EBioMedicine 2022;77: 103891.
12. Бартлетт Н.В., Уолтон Р.П., Эдвардс М.Р., Анищенко Дж., Карамори Г., Чжу Дж. и соавт. Мышиные модели риновирусного заболевания и обострения аллергического воспаления дыхательных путей. Nat Med 2008;14:199-204.
13. Синганаягам А., Гланвилл Н., Гиркин Д.Л., Чинг Ю.М., Марчеллини А., Портер Д.Д. и соавт. Подавление противовирусного иммунитета кортикостероидами увеличивает бактериальную нагрузку и продукцию слизи при обострении ХОБЛ. Национальная коммуна 2018;9:2229.
14. Gentzsch M, Boyles SE, Cheluvaraju C, Chaudhry IG, Quinney NL, Cho C, et al. Фармакологическое спасение условно репрограммированных муковисцидозных эпителиальных клеток бронхов. Am J Respir Cell Mol Biol 2017;56:568-74.
15. Liu X, Ory V, Chapman S, Yuan H, Albanese C, Kallakury B, et al. Ингибитор ROCK и фидерные клетки индуцируют условное перепрограммирование эпителиальных клеток. Ам Дж. Патол 2012; 180: 599-607.
For more information:1950477648nn@gmail.com