Специфическая для алкоголя транскрипционная динамика реконсолидации и рецидива памяти. Часть 4.
Jan 29, 2024
Помимо Arc, мы обнаружили, что уровни мРНК Egr1, но не Bdnf, увеличивались в DH и mPFC при восстановлении памяти об алкоголе.
С течением времени люди постепенно обретают новое понимание тайны забвения. В этом процессе новая технология восстановления памяти постепенно стала горячей точкой исследований.
Так существует ли связь между восстановлением воспоминаний об алкоголе и работой памяти? Приходите посмотреть прямо сейчас! Прежде всего, нам нужно прояснить: восстановление воспоминаний об алкоголе — это не отдельная технология. Это технология, которая воздействует на нейроны мозга посредством алкоголя. Этот процесс может активировать некоторые «спящие» воспоминания в мозгу, позволяя нам Освежить эти воспоминания.
Во-вторых, нам нужно знать, что улучшение памяти не просто позволяет нам «запоминать» больше вещей, но представляет собой процесс извлечения и реконструкции воспоминаний различными способами. Этот процесс может помочь нам лучше закрепить и понять полученные знания, тем самым улучшая нашу память.
Таким образом, мы можем заключить, что существует взаимосвязь между восстановлением памяти об алкоголе и ее функционированием. Когда мы используем эту технологию для повторного извлечения предыдущих воспоминаний после употребления алкоголя, мы проходим процесс реконсолидации этих воспоминаний, тем самым в определенной степени улучшая нашу память.
Конечно, мы также должны отметить, что восстановление памяти с помощью алкоголя не является долговечным и надежным методом улучшения памяти. Если мы хотим иметь отличную память на долгое время, нам необходимо постоянно укреплять и улучшать нашу память посредством ежедневного обучения и жизни в сочетании с другими методами тренировки памяти.
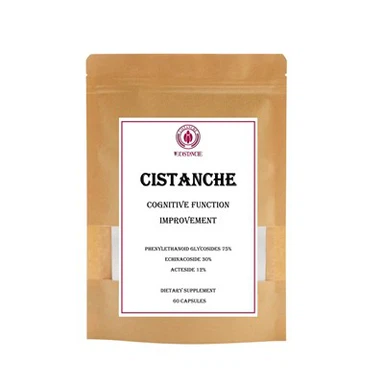
В этом процессе нам необходимо всегда сохранять оптимистический настрой, чтобы лучше стимулировать нашу мотивацию к обучению и потенциал памяти. Поэтому давайте активно заниматься тренировкой памяти, неустанно оставаться собой и смело двигаться вперед по пути постоянного улучшения памяти! Видно, что нам необходимо улучшить память, а Cistanche Deserticola может значительно улучшить память, поскольку Cistanche Deserticola также может регулировать баланс нейротрансмиттеров, например, повышая уровень ацетилхолина и факторов роста. Эти вещества очень важны для памяти и обучения. Кроме того, мясо также может улучшить кровоток и способствовать доставке кислорода, что может гарантировать, что мозг получает достаточное количество питательных веществ и энергии, тем самым повышая жизнеспособность и выносливость мозга.

Нажмите сейчас, чтобы улучшить кратковременную память
Повышенная экспрессия мРНК Egr1 ранее была вовлечена в реконсолидацию воспоминаний о страхе и наркотиках [19, 21, 48, 61], что повышает вероятность того, что этот транскрипционный фактор также играет роль в реконсолидации воспоминаний об алкоголе.
Хотя роль Bdnf в реконсолидации памяти остается спорной [19, 49], известно, что индукция Bdnf имеет решающее значение для приобретения памяти и обучения угашению [19, 62]. Таким образом, отсутствие изменений в экспрессии Bdnf в нашем исследовании может указывать на то, что наша процедура восстановления памяти не инициирует обучение угашению параллельно с восстановлением памяти.
Более того, мы недавно сообщили, что, хотя уровни мРНК Bdnf в DH сами по себе не увеличиваются при восстановлении памяти об алкоголе, экспрессия фактора роста повышалась, когда восстановление сопровождалось аверсивным контркондиционированием, предотвращающим рецидив [44], что указывает на сложную роль Bdnf. в динамике алкогольной памяти.
Наши результаты показывают, что увеличение экспрессии IEG связано не только с реконсолидацией воспоминаний, связанных с алкоголем.
Действительно, ARC и EGR1 ранее были вовлечены в реконсолидацию нескольких типов воспоминаний, включая воспоминания о страхе [19, 46, 47, 62], воспоминания об узнавании [21] и воспоминания, связанные со злоупотреблением различными наркотиками [20, 22, 61].
Однако появляется все больше свидетельств того, что некоторые механизмы, лежащие в основе стремления к алкоголю, могут отличаться от тех, которые контролируют естественный поиск вознаграждения [5, 27, 28, 63]. Кроме того, есть данные о том, что воспоминания о разных вознаграждениях (и, в частности, о разных наркотиках) обрабатываются по-разному [29–32]. Результаты нашего анализа RNAseq действительно выявили уникальную транскриптомную подпись, индуцированную восстановлением памяти об алкоголе.
В частности, мы обнаружили 44 гена в DH и другой набор из 9 генов в их PFC, которые показали значительные изменения после восстановления памяти об алкоголе. После дальнейшей проверки данных мы сосредоточились на одном гене mPFC (Fkbp5) и трех генах DH (Adcy8, Scl8a3 и Neto1) и обнаружили, что на их экспрессию не влияет восстановление памяти, связанной с сахарозой.
Это предполагает, что, в отличие от Arc и Egr1, эти четыре специфических гена, вероятно, не играют общей роли в обработке воспоминаний о вознаграждении, но могут, скорее, играть выборочную роль в обработке воспоминаний об алкоголе.
Интересно, что эти четыре гена ранее были вовлечены в расстройства, связанные с употреблением алкоголя, а также в расстройства обучения и памяти. Таким образом, Fkbp5 кодирует FK506-связывающий белок 5, регулятор нейроэндокринной системы стресса [64].
Варианты FKBP5 модулируют тяжесть синдрома отмены алкоголя [65] и предсказывают склонность к пьянству у людей [66–68]. Было показано, что удаление Fkbp5 увеличивает тяжесть абстиненции [65] и употребления алкоголя [67] у мышей, тогда как фармакологическое ингибирование белка снижает умеренное потребление алкоголя, а восстановление CPP у мышей [69] и снижает употребление алкоголя у крыс-самцов, находящихся в стрессе [70].

Уровни мРНК Adcy8, кодирующей аденилатциклазу 8 (AC8), которая катализирует образование цАМФ в ответ на приток кальция и недавно была отмечена как возможный регулятор потребления алкоголя [28, 71], были снижены в клетках крови у алкоголиков, длительно воздерживающихся от употребления алкоголя [72].
Ранее было показано, что удаление Adcy8 снижает употребление алкоголя и повышает чувствительность к седативному эффекту алкоголя у мышей [73]. Кроме того, хроническое воздействие алкоголя у крыс повышало экспрессию в мозгу семейства переносчиков растворенных веществ 8 (натрий/кальциевый обменник), члена 3 (NCX3), белка, кодируемого Scl8a3 [74, 75].
Потребление алкоголя у крыс также было связано со снижением экспрессии Neto1 в стволе мозга [76], кодирующего нейропилин-толлоид-подобный 1 (NRP1), компонента комплекса NMDA-рецептор [77].
Этот белок участвует в синаптической реорганизации и передаче в гиппокампе [78] и необходим для пространственного обучения и памяти [77].
Таким образом, наши результаты показывают, что простое восстановление алкогольных воспоминаний, даже без каких-либо фармакологических эффектов алкоголя, влияет на экспрессию этих генов. Однако их конкретная роль в реконсолидации и рецидивах алкогольной памяти еще предстоит проверить.
Ограничением настоящего исследования является то, что анализ RNA-seq проводился на массовых тканях mPFC и DH, а не на отдельных клетках, активированных путем восстановления памяти. В частности, недавние исследования показали, что воспоминания в целом [79, 80] и, в частности, воспоминания, связанные с алкоголем [32, 81, 82], кодируются посредством активации нейронных ансамблей, состоящих из небольшого числа нейронов, которые можно идентифицировать с помощью маркеров активации нейронов ( например, cFOS) [80].
Действительно, сходные паттерны активации IEG (cFOS) при восстановлении оперантно-обусловленных воспоминаний об алкоголе и сладком вознаграждении были обнаружены в mPFC и дополнительных мезолимбических областях мозга крыс [32, 81]. Таким образом, возможно, что избирательное проведение анализа RNA-seq на ансамбле нейронов, активированном восстановлением памяти, дало бы более точные результаты.
Таким образом, наши результаты показывают, что восстановление памяти об алкоголе вызывает две параллельные программы транскрипции. Одна программа, передаваемая через общие молекулярные механизмы обучения и памяти, включая IEG Arc и Egr1, занимается реконсолидацией воспоминаний в целом.
Другая программа транскрипции, запускаемая при восстановлении памяти об алкоголе, контролируется генами, которые специально способствуют поведению, связанному с алкоголем. Эта модель двойной обработки воспоминаний об алкоголе повышает вероятность того, что реконсолидация воспоминаний для разных воспоминаний может иметь схожие молекулярные механизмы двойной обработки, при этом некоторые компоненты являются общими для нескольких воспоминаний, а другие уникальны для каждого типа памяти.
Эту гипотетическую модель еще предстоит оценить, проверив, влияет ли манипулирование этими генами на реконсолидацию памяти об алкоголе и сахарозе по-разному. Если это так, то можно предположить, что можно нацелиться на молекулярные мишени, специфичные для вознаграждения, для лечения расстройств, связанных с патогенными воспоминаниями, таких как зависимость, а не разрушать основные молекулярные механизмы, необходимые для многих функций, помимо реконсолидации алкогольной памяти.
МАТЕРИАЛЫ И МЕТОДЫ
Подробную информацию об аппарате, лекарствах и реагентах, дизайне и приготовлении олигодезоксинуклеотидов (ODN), вестерн-блоттинге и qRT-PCR-анализе, а также подготовке библиотеки RNA-seq см. в дополнительной информации.
Животные
Мыши мужского и женского пола C57BL/JRccHsd (25–30 г), содержащиеся по 3–4 человека на клетку, были выведены в ветцентре Тель-Авивского университета (Израиль) и содержались при 12-часовом цикле света и темноты (свет включается в 7 часов утра). с едой и водой в свободном доступе.
В экспериментах с использованием сахарозы доступ к пище был ограничен за 6 часов до тренировки, чтобы повысить мотивацию мышей собирать гранулы сахарозы. Такая короткая продолжительность пищевой депривации основана на данных о том, что в дневное время 2–6-часовое голодание не влияет на пищевое поведение [83] и не вызывает значительного сдвига метаболических маркеров [84], тем самым сводя к минимуму эффекты ограничения пищи как такового. .
Мышей взвешивали два раза в неделю для контроля потери веса. Все экспериментальные протоколы были одобрены и соответствовали рекомендациям Институционального комитета по уходу и использованию животных Тель-Авивского университета, а также рекомендациям NIH (номер обеспечения благополучия животных A5010-01). Были предприняты все усилия, чтобы свести к минимуму количество используемых животных.
Поведенческие процедуры
Кондиционирование места
Предпочтение места, обусловленное алкоголем (CPP): Все мыши были приучены к ежедневным внутрибрюшинным инъекциям физиологического раствора в течение 3 дней.
Базовый тест (день 1): В первый день раздвижную дверцу убрали, и мышам разрешили свободно исследовать весь аппарат в течение 30 минут. Кондиционирование места с алкоголем (дни 2–9): Обучение началось через 24 часа после базового теста с одного сеанса. вводят ежедневно в течение 8 дней при закрытой дверце. На 3-й, 5-й, 7-й и 9-й день мышам вводили спирт (1,8 г/кг, 20% об./об.; внутрибрюшинно) и сразу же помещали в парный отсек на 5 мин.
Ранее было показано, что эта доза и продолжительность кондиционирования способствуют образованию ЦПД, индуцированного алкоголем [42, 85]. В чередующиеся дни (т.е. дни 2, 4, 6 и 8) мыши получали физиологический раствор и помещались в непарный отсек на ту же продолжительность, что и в день алкогольного кондиционирования.
Парные отсеки были уравновешены. Тест на предпочтение места 1 (день 10): Тестирование на предпочтение места проводилось, как описано для базового теста, и служило для индексации алкоголя-CPP [41]. Предпочтение определялось как увеличение процента времени, проведенного в отсеке с алкогольной парой во время теста предпочтения места 1 по сравнению с базовым тестом.
Восстановление памяти (день 11). Перед этим этапом мышей помещали в разные экспериментальные условия (совпадающие по показателям CPP и полу). Во время сеанса восстановления памяти мышей помещали в отсек с парами алкоголя на 3 минуты, а затем возвращали в свои домашние клетки. Контрольных мышей подвергали краткому обращению. Тест предпочтения места 2 (день 12): Мышей подвергали тесту предпочтения места, идентичному тесту предпочтения места 1.
Sucrose CPP: предварительная тренировка с сахарозой (дни 1–6): в дни 1–3 мышей приучали собирать 5–6 гранул сахарозы (45 мг, Dustless PrecisionPellets, Bio-Serv, Frenchtown, NJ, USA) в домашних клетках. . На дни 4–6 мышей обучали собирать по 3 гранулы в пустую коробку из плексигласа в течение 30-минутных сеансов. Мыши, которые собрали менее шести гранул (из девяти гранул за 3 дня) во время обучения сахарозе, были исключены из эксперимента (2 мыши из 32).
Исходный тест (день 7): На седьмой день раздвижную дверь в камере CPP убрали, и мышам разрешили исследовать весь аппарат в течение 30 минут. Здесь также был принят метод беспристрастного аппарата/несмещенного назначения, как описано в процедуре алкоголь-КПФ. дверь закрыта. На 9, 11, 13 и 15 дни мышей помещали в парное отделение, а через минуту на полу рассыпали три гранулы сахарозы.
Через 15 минут мышей вернули в их домашние клетки. В чередующиеся дни (т.е. дни 8, 10, 12 и 14) мышей помещали в непарный отсек на 15 минут без какого-либо вмешательства.

Парные отсеки были уравновешены. Тест на предпочтение места 1 (день 16): Тестирование на предпочтение места было таким, как описано для базового теста, и служило для индексации сахарозы-CPP. Предпочтение определялось как увеличение процента времени, проведенного в парном с сахарозой отсеке во время теста предпочтения места 1, по сравнению с базовым тестом. Восстановление памяти (дни 17): Процедура восстановления памяти с сахарозой была идентична процедуре восстановления памяти об алкоголе (см. выше). ).
Валидация олигодезоксинуклеотида (ОДН)
Конструкция дугового антисмыслового ODN (AS-ODN) и скремблированного ODN (SCR-ODN) (Sigma-Aldrich, Реховот, Израиль) следовала рекомендациям, описанным ранее [56, 86].
Функциональная проверка Arc AS-ODN. Arc AS-ODN (2 нмоль/мкл, 0,5 мкл, 0,25 мкл/мин) вводили в ДГ в одном полушарии, а SCR-ODN (2 нмоль/мкл, { {9}}.5 мкл, 0.25 мкл/мин) вводили в другое полушарие (стороны были уравновешены). Через два или четыре часа обработанные мыши исследовали незнакомый контекст (отделение CPP, см. описание устройства выше) в течение 5 минут, чтобы индуцировать зависимую от новизны экспрессию ARC. Мышей подвергали эвтаназии через час (т.е. через 3 или 5 часов после инфузии ODN), собирали ткани головного мозга и оценивали уровни белка ARC с помощью вестерн-блот-анализа (рис. S4).
Операция и внутригиппокампальная микроинфузия. Операцию и микроинфузию проводили, как описано ранее [42, 87].
Операция. Стереотаксические операции проводились под изофлурановым наркозом. Мышей помещали в стереотаксическую рамку (RWD Life Science, Шэньчжэнь, Китай), а двусторонние направляющие канюли (C235G-2.6, 26G; Plastics One Inc., Роанок, Вирджиния, США) направляли на ДГ на расстоянии следующие координаты (-2 мм кзади от брегмы, ±1,3 мм медиолатерально, -1,45 мм вентральнее поверхности черепа). Канюли фиксировали стоматологическим акрилом. Соответствующие канюли-пустышки (Plastics One Inc., Роанок, Вирджиния, США) были вставлены в направляющие канюли и закрыты пылезащитными колпачками, чтобы место инъекции было закрыто и очищено от мусора. Мышам давали возможность восстановиться в течение 7–10 дней перед тренировкой алкоголь-CPP.
Внутригиппокампальные инфузии. Актиномицин D (4 мкг/мкл, 0,5 мкл на сторону, 0,25 мкл/мин, в ДМСО) [19] или эквивалентный объем носителя микроинъецировали в ДГ сразу после восстановления памяти. . Было показано, что инфузия актиномицина D в гиппокамп в аналогичной концентрации нарушает реконсолидацию памяти [19]. Arc AS-ODN или контрольный SCR-ODN (2 нмоль/мкл, 0,5 мкл/сторона, 0,25 мкл/мин; в PBS) микроинъецировали в DH за 4 часа за 2 часа до или 4 часа после восстановления памяти.
После удаления пылесборника и пустых канюль в течение 2 минут проводили микроинфузию мышам, находящимся в состоянии бодрствования, используя инъекционные канюли (33 G; Plastics One Inc., Роанок, Вирджиния, США), выступающие на 0,5 мм за пределы направляющей. кончик канюли. Инъекционные канюли оставляли на месте еще на 2 мин. После инфузии в направляющие канюли вставляли фиктивные канюли, фиксировали пылезащитным колпачком, и животные возвращались в свои домашние клетки. Расположение канюль проверяли на корональных срезах ткани, фиксированной параформальдегидом, толщиной 30 мкм, окрашенной крезиловым фиолетовым.
Анализ данных
Place preference was assessed as the percentage of time spent in the alcohol/sucrose-paired compartment, relative to the total test time. Mice that spent >75% случаев в любом из отсеков во время базового теста были исключены из исследования (9 из 267). Установление ЦПД подтверждали путем сравнения показателей ЦПД между исходным уровнем и тестом ЦПД 1 и анализировали с помощью парного t-критерия. Поскольку экспрессия CPP (т.е. формирование памяти) необходима для восстановления памяти, данные мышей, у которых не было CPP (увеличение предпочтения минимум на 5% между исходным уровнем и тестом 1), были исключены из эксперимента (48 из 258).
Алкоголь-CPP после вмешательства в реконсолидацию памяти анализировали с помощью ANOVA смешанной модели с межсубъектным фактором лечения (актиномицин D или ODN) и внутрисубъектным фактором теста (CPP тест 1, CPP тест 2). Значимые взаимодействия были проанализированы с помощью апостериорного теста Стьюдента-Ньюмана-Кейлса. Плотности уровней иммунореактивного белка ARC вестерн-блоттинга нормализовали до значений GAPDH и анализировали с помощью однофакторного дисперсионного анализа с межсубъектным фактором лечения с последующим апостериорным тестом Даннетта. Данные по экспрессии мРНК qRT-PCR были нормализованы по Gapdh и выражались в процентах от экспрессии контрольной группы.
Данные всех генов для каждой области мозга были проанализированы с помощью однофакторного дисперсионного анализа с межсубъектным фактором лечения с последующим тестом Даннетта для каждого гена для сравнения с данными, полученными от контрольной группы (без извлечения). Для секвенирования РНК мы объединили ткани от 3 животных для каждого повтора и приготовили следующее количество повторов: 3 для дорсального гиппокампа (DH) - без извлечения, 2 для DH - извлечения, 3 для префронтальной коры (PFC) - без извлечения и 2 для ( PFC)-поиск. После выделения тотальной РНК с помощью Trizol библиотеки секвенирования были созданы с использованием разработанного нами метода [88].
Библиотеки были подвергнуты одноконцевому секвенированию длиной 50 пар оснований с помощью IlluminaHiseq 2000. После подтверждения качества данных секвенирования с помощью FastQC чтения были картированы на эталонный геном mm9 с использованием Bowtie2 [89] и аннотированы с помощью Tophat2 [90].
Считывания, сопоставленные с генами, были количественно оценены с помощью FeatureCounts [91]. Мы исключили Rn45s, Lars2, Rn4.5s, Cdk8, Zc3h7a и темитохондриальную хромосому, чтобы избежать количества чрезмерно амплифицированных генов, которые могли бы исказить нормализацию библиотеки, как описано ранее [92]. DESeq2 [58] использовался для идентификации дифференциально экспрессируемых генов (DEG) в группе извлечения по сравнению с контрольной группой без извлечения, с значением p, скорректированным с учетом пороговой значимости (p(adj) <0,05).

ДОСТУПНОСТЬ ДАННЫХ Данные RNA-seq доступны в NCBI Gene Expression Omnibus по адресу https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi (GSE205586) с токеном рецензента: knyfwwiorbutvuv.
ИСПОЛЬЗОВАННАЯ ЛИТЕРАТУРА
1. Коллинз П.Ю., Патель В., Йостл С.С., Марч Д., Инсел Т.Р., Даар А.С. и др. Грандиозные проблемы в глобальном психическом здоровье. Природа. 2011;475:27–30.
2. Хейлиг М., Эгли М. Фармакологическое лечение алкогольной зависимости: целевые симптомы и целевые механизмы. Фармакотерапия. 2006;111:855–76.
3. Синха Р. Новые данные о биологических факторах, предсказывающих уязвимость к рецидиву зависимости. Республика Карр Психиатрия 2011; 13: 398.
4. Литт М.Д., Куни Н.Л., Морс П. Реакция на стимулы, связанные с алкоголем, в лаборатории и в полевых условиях: предикторы тяги к алкоголю у пролеченных алкоголиков. Наркомания.2000;95:889–900.
5. Барак С., Лю Ф., Бен Хамида С., Йоуэлл К.В., Неаста Дж., Харазия В. и др. Нарушение воспоминаний, связанных с алкоголем, путем ингибирования mTORC1 предотвращает рецидив. Nat Neurosci.2013;16:1111–7.
6. Милтон А.Л. Выпивка, наркотики и разрушение: манипуляции с памятью для лечения зависимости. Курр Опин Нейробиол. 2013;23:706–12.
7. Надер К., Хардт О. Единый стандарт памяти: аргументы в пользу реконсолидации. NatRev Неврология. 2009;10:224–34.
8. Дудай Ю. Реконсолидация: преимущество переориентации. Курр Опин Нейробиол. 2006;16:174–8.
9. Пшибыславски Дж, Сара СДж. Реконсолидация памяти после ее реактивации. Behav.Brain Res. 1997;84:241–6.
10. Надер К., Шафе Г.Е., Ле Ду Ж.Э. Воспоминания о страхе требуют синтеза белка в миндалевидном теле для их повторной консолидации после извлечения. Природа. 2000;406:722–6.
For more information:1950477648nn@gmail.com