Расшифровка роли эндолизосомальных каналов Ca2 plus в иммунитете
Mar 08, 2023
Роль эндолизосомной передачи сигналов Ca2 plus в иммунитете в последние годы вызывает повышенный интерес. Здесь мы обсуждаем развивающиеся знания, касающиеся вклада эндолизосомных каналов Ca2 plus, которые включают TPC, TRPML и P2X4R, в физиологических процессах, связанных с врожденным и адаптивным иммунитетом, включая фагоцитоз, воспаление, высвобождение цитокинов / хемокинов, дендритные, естественные киллеры и T активация и миграция клеток, и мы подчеркиваем недостаток клинических исследований в этой области. Новые биомедицинские и трансляционные данные привели к новому пониманию важной роли этих каналов в функционировании иммунных клеток и регуляции врожденных и адаптивных иммунных ответов.
Развивающееся иммунологическое значение передачи сигналов эндолизосомального Ca2 plus требует дальнейших исследований, чтобы лучше охарактеризовать роль этих каналов в иммунитете, чтобы расширить наши знания о патологии воспалительных и аутоиммунных заболеваний и разработать эндолизосомальные Ca2 plus каналы как жизнеспособные биомаркеры и терапевтические и профилактические мишени для ремоделирования. иммунный ответ.
Кроме того, человеческий организм должен иметь крепкую иммунную систему, чтобы противостоять вторжению различных патогенов. Иммунитет человеческого тела в основном зависит от генетики, но большое влияние также оказывает окружающая среда, такая как диета, сон, физические упражнения, стресс и т. д. Регулирование изнутри наружу — это самый идеальный способ улучшить иммунитет человека. Помимо управления своими повседневными привычками, вы также можете есть цистанхе, здоровую пищу, которая может укрепить вашу иммунную систему.
Современные исследования показывают, что Цистанхе содержит более 10 видов витаминов, 15 видов аминокислот, более 20 видов микроэлементов, более 20 видов алкалоидов, более 300 видов минералов и множество видов кристаллических щелочных веществ. Полисахариды цистанхе пустынной, эхинакозид и вербаскозид являются наиболее эффективными ингредиентами для снятия физической усталости и повышения иммунитета.
Нажмите, где купить продукт цистанхе
ВВЕДЕНИЕ
Врожденный и адаптивный иммунитет являются двумя фундаментальными компонентами иммунной системы. Взаимодействие между врожденными и адаптивными реакциями важно для поддержания функциональной иммунной системы для защиты человека от чужеродных веществ, таких как аллергены, токсины, опухолевые клетки, бактерии и вирусы. Врожденная иммунная система включает моноциты, макрофаги, дендритные клетки, тучные клетки, базофилы, нейтрофилы, эозинофилы и естественные клетки-киллеры; тогда как адаптивная иммунная система состоит из В-клеток и Т-клеток. Несколько исследований показали, что внутриклеточная передача сигналов Са2+ имеет решающее значение для поддержания различных функций иммунных клеток (1–3), и связывают развитие множественных аутоиммунных и воспалительных заболеваний с нарушениями регуляции Са2++ (4, 5).
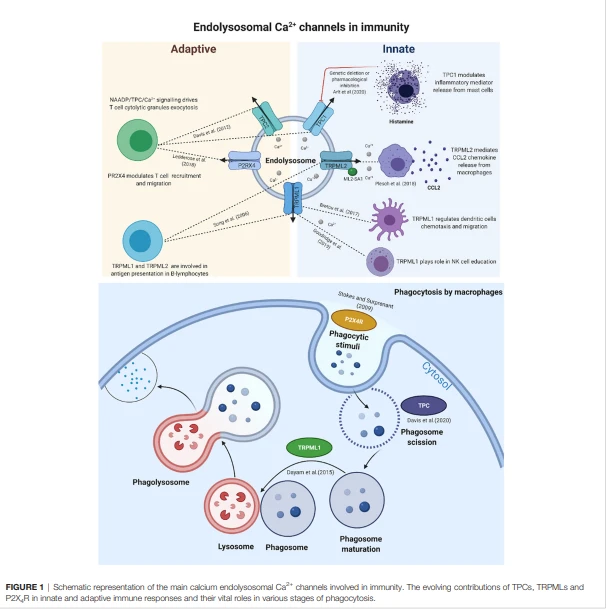
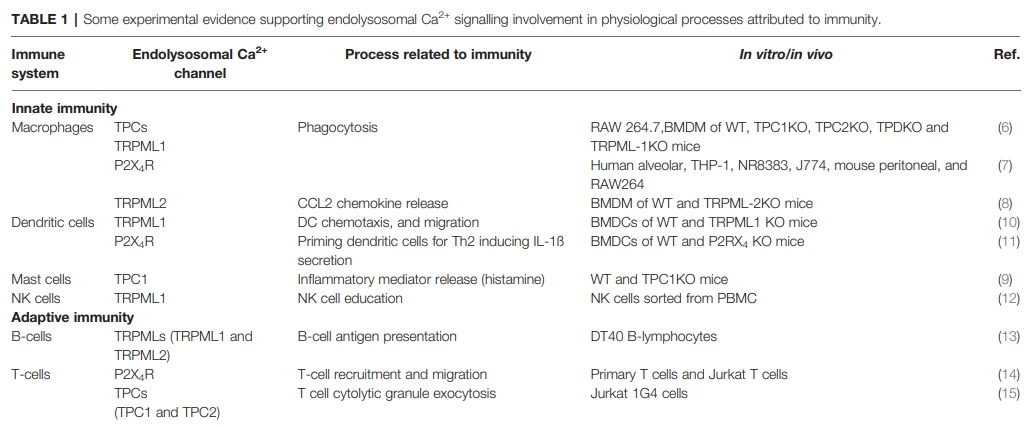
Передача сигналов Ca2 plus, опосредованная эндолизосомными каналами, становится участником процессов, связанных с функциями иммунных клеток, таких как фагоцитоз; высвобождение медиаторов воспаления; презентация антигена; воспаление; сотовая торговля; и миграция Т-клеток. Эндолизосомальные Са2 плюс каналы локализованы в ранних, поздних и рециклирующих эндосомах, лизосомах и аутофагосомах. Они состоят из двухпоровых каналов (TPC, также известных как TPCN); переходный рецепторный потенциал катионных каналов; муколипины (TRPML); и катионный канал, активируемый АТФ P2X4. Значительный вклад эндолизосомной передачи сигналов Ca2 plus был продемонстрирован в фагоцитозе, который является жизненно важным физиологическим процессом клеточного иммунитета, опосредованным TPC, TRPML1 и P2X4R (6, 7). TRPML2 представляет собой эндолизосомальный Ca2 плюс канал, который, как было показано, играет непосредственную роль в высвобождении хемокина/цитокина (8).
Кроме того, TPC1 является эндолизосомальным Ca2 плюс каналом, который, как сообщается, участвует в развитии иммунного ответа и высвобождении медиаторов воспаления (9). Хотя стало ясно, что эндолизосомальные сигналы Ca2 plus играют ключевую роль в здоровье и заболевании, сложная динамика, лежащая в основе регуляции передачи сигналов Ca2 plus через эндолизосомные каналы и их участие в физиологических процессах, связанных с иммунитетом, остается неясной. Здесь мы подчеркиваем новые роли эндолизосомальных каналов Ca2 plus в различных физиологических процессах, связанных с иммунитетом (как показано на рисунке 1 и в таблице 1). Мы намерены раскрыть их потенциал в качестве ключевых частей головоломки, которая поможет лучше понять патофизиологию аутоиммунных и воспалительных заболеваний и разработать эндолизосомальные каналы Ca2 plus в качестве мишеней для будущей иммунотерапии.
TPCS ПРИ ФАГОЗИТОЗЕ, ВОСПАЛИТЕЛЬНОЙ РЕАКЦИИ И ПЕРЕНОСЕ ВИРУСОВ
Двухпоровые каналы (TPC) присутствуют у млекопитающих в виде двух изоформ — TPC1 и TPC2. Продолжаются споры о том, являются ли TPC в первую очередь Ca2+ или Na+ каналами (16). Данные нескольких исследований показывают, что TPC ведут себя по-разному в разных биологических контекстах. Они могут запускать высвобождение Ca2 plus или Na plus при связывании со вторичными мессенджерами: никотиновая кислота, адениндинуклеотидфосфат (NAADP), действует прямо или косвенно на высвобождение Ca2 plus и фосфатидилинозитол-3,5-бисфосфат [PI (3,5) P2] для высвобождения Na plus (17–20). Фагоцитоз макрофагами является физиологическим процессом, инициируемым нашей врожденной иммунной системой как первой линией защиты как от патогенов (бактерий, токсинов, вирусов), так и от опухолевых клеток. Лизосомы являются многофункциональными органеллами и играют жизненно важную роль в фагоцитозе, особенно на поздних стадиях созревания фагосом (21).
Недавнее исследование Suresh et al. (22) раскрыли роль тубулярного состояния лизосом в фагоцитозе, который, как известно, модулирует процессы, связанные с иммунитетом, такие как презентация антигена. Исследование показало, что состояния лизосомных канальцев опосредуют фагоцитоз и усиленное слияние фагосом-лизосом в клетках RAW 264.7 (модель мышиных макрофагов in vitro) (22). Другое недавнее исследование Freeman et al. предположили возможность того, что TPC2 действует как регулятор процесса тубулирования лизосом (23). Исследование показало, что сверхэкспрессия TPC2 управляет тубулированием лизосом по механизму, включающему активацию фосфатидилинозитол-3,5-бифосфата (23). Кроме того, было обнаружено, что экспрессия TPC1 и TPC2 на уровне мРНК значительно повышается в макрофагах, происходящих из костного мозга, по сравнению с эмбриональными фибробластами мыши (23). Участие эндолизосомального Ca2 plus-опосредованного слияния фагосомы и лизосомы было вовлечено в созревание фазы фагосомы, где фагосома сливалась с лизосомой, в конечном итоге становясь фаголизосомой, что является фундаментальным этапом фагоцитоза.
Недавно Дэвис и соавт. (6) определили роль NAADP-вызванного TPC-эндолизосомального Ca2 plus передачи сигналов от нанодоменов, включающих активность кальциневрина и активацию динамита 2 в макрофагах при отделении фагосом от стадии плазматической мембраны фагоцитоза для мелких и крупных частиц (6), что предполагает, что TPC1 или TPC2 могут действовать как последующие регуляторы фагоцитоза в макрофагах.
Ранее Дэвис и соавт. расшифровали биологическое значение NAADP/TPC/Ca2 плюс передача сигналов в биологии Т-клеток. Они обнаружили, что NAADP-опосредованное высвобождение Ca2 plus является важным путем, который запускает экзоцитоз цитолитических гранул Т-клеток (15). Недавно Элизабет и др. (2020) впервые сообщили, что эндолизосомальные сигналы Ca2 plus через TPC1 опосредуют развитие иммунного ответа, вызывая высвобождение медиаторов воспаления в механизме, включающем перекрестные взаимодействия Ca2 plus между TPC 1-опосредованными и эндоплазматическим ретикулумом ( ER) запасы Ca2 плюс (9).
В мышиной модели TPC1KO in vivo системная анафилаксия была преувеличена, проявляясь глубоким падением температуры тела по сравнению с мышами дикого типа (9). Исследование также показало, что модуляция TPC1 либо путем генетической делеции, либо путем фармакологического ингибирования транс-Ned-19 усиливала дегрануляцию тучных клеток и вызывала высвобождение медиаторов воспаления (гистамина) из тучных клеток (9), которые являются резидентными в тканях. клетки иммунной системы, играющие роль в воспалительных и аллергических реакциях. Количество и размер мастоцитов были значительно уменьшены в мышиной модели с 1-дефицитом TPC по сравнению с контрольной группой дикого типа (9). Клеточные механизмы, лежащие в основе регуляции TPC1-опосредованных эндолизосомальных сигналов Ca2 plus при развитии воспалительных и аллергических реакций, требуют дальнейшего изучения, чтобы помочь в разработке новых лекарств для лечения анафилаксии и аллергической гиперчувствительности.
Было показано, что сигнальный путь NAADP/TPC/Ca2 plus играет важную роль в транспортировке вирусов. Гунаратне и др. показали, что нокдаун TPC (TPC1 и TPC2) препятствует инфицированию коронавирусом ближневосточного респираторного синдрома (MERS-CoV) в клетках эмбриональной почки человека 293 (HEK293) (24). Ca2 плюс передача сигналов через TPC (включая TPC1 и TPC2) регулирует проникновение вируса Эбола и играет важную биологическую роль в переносе вируса и предотвращении инфекции (25). Фармакологическое ингибирование или генетический нокаут TPC снижает способность вируса Эбола инфицировать клетки в моделях in vitro или in vivo (25). Кандидатуру этих каналов в качестве мишеней для будущей противовирусной терапии подтверждает наличие одобренных FDA препаратов, таких как антагонисты дофамина (например, флуфеназин и пимозид) и селективные модуляторы рецепторов эстрогена (включая ралоксифен, кломифен и тамоксифен), которые ингибируют TPC функционируют и препятствуют проникновению вирусоподобных частиц Эбола в клетки HeLa Kyoto in vitro (26).
Функциональная характеристика флуфеназина и ралоксифена показала, что они блокируют активность TPC2, уменьшая время открытия канала (26). Вспышка SARS-CoV2 привела к пересмотру роли эндолизосомальной передачи сигналов Ca2 plus, особенно через TPC, в переносе вируса и инфекционности. Недавние данные показали, что TPC2, фосфатидилинозитол 3-фосфат 5-киназа (PIKfyve) и катепсин L регулируют проникновение SARS-CoV-2 в модели in vitro (клетки HEK 293/hACE2) ( 27). Точно так же Клементи и соавт. обнаружили, что ингибирование функции TPC2 с помощью фармакологических средств нарингенином или нокдаун с помощью siRNA ослабляло инфекцию SARS-CoV2 in vitro (28).
Несмотря на растущее количество доказательств, связывающих передачу сигналов TPC/Ca2 plus с физиологическими процессами, связанными с иммунитетом, исследования в этой области все еще находятся в зачаточном состоянии. Дальнейшие исследования с использованием биомедицинских (in vitro и in vivo) и клинических моделей расшифруют роль передачи сигналов TPC/Ca2 plus в иммунитете и будут способствовать расширению наших знаний о роли этого сигнального пути в патогенезе заболеваний иммунной системы и могут привести к к разработке терапевтических агентов для лечения или профилактики заболеваний, связанных с иммунным ответом.

TRPMLS ПРИ ФАГОЗИТОЗЕ, ПРЕЗЕНТАЦИИ АНТИГЕНА И ВЫБРОСЕ ХЕМОКИНОВ/ЦИТОКИНОВ
Катионные каналы временного рецепторного потенциала (TRPML; муколипины) представляют собой подсемейство семейства каналов TRP и состоят из TRPML1, TRPML2 и TRPML3 у млекопитающих; они локализованы в эндолизосомальных компартментах (29). TRPMLs играют важную роль в эндолизосомной биологии, особенно в эндолизосомном переносе, который приводит к аутофагии (30). Примечательно, что роли TRPML (особенно TRPML1 и TRPML2) в физиологических процессах, связанных с функциями иммунных клеток, постоянно развиваются (31, 32), что подчеркивает важность полной характеристики биологических и клинических функций этих каналов в иммунной системе. Сонг и др. (33) сообщили о первых доказательствах взаимосвязи между TRPML (TRPML1 и TRPML2) и презентацией В-клеточного антигена у позвоночных (33). TRPML 1-опосредуемый сигнальный путь Ca2 plus участвует в фагоцитозе (6, 13, 34). TRPML1 действует как регулятор созревания фагосомы, FYVE finger-содержащая фосфоинозитидкиназа (PIKfyve) и (PI(3,5)P2)-опосредованная Ca2 плюс сигналы через TRPML1- запускают слияние фагосомы-лизосомы (13).Предыдущее исследование показало, что (PI(3,5)P2)/TRPML1/Ca2 плюс передача сигналов является модулятором фагоцитоза путем регуляции фокального экзоцитоза, что важно для биогенеза фагосом (34).
Недавно было показано, что нокаут TRPML1 ослабляет фагоцитоз крупных частиц в мышиных макрофагах, происходящих из костного мозга (BMDM), указывая на то, что лизосомальный Ca2 плюс высвобождение через TRPML1 необходим для фагоцитоза крупных мишеней (6). Передача сигналов TRPML1/Ca2 plus участвует в тубулировании лизосом (35); этот процесс играет роль в фагоцитозе и презентации антигена. Недавно Гудридж и соавт. (36) определили ключевую роль лизосомального высвобождения Са2 плюс через TRPML1 в качестве медиатора функции естественных клеток-киллеров (NK) (36). Предыдущие исследования показали, что лизосомальные сигналы Ca2 plus TRPML1 участвуют в транспорте дендритной РНК посредством модуляции передачи сигналов Toll-подобного рецептора 7 (TLR7) (12).
Кроме того, передача сигналов Ca2 plus опосредованас помощью TRPML1 регулирует две важные функции дендритных клеток, включая миграцию и хемотаксис (37). Эти результаты подчеркивают эволюцию TRPML1 как модулятора функций врожденных и адаптивных иммунных клеток; таким образом, это требует дальнейших исследований для выявления молекулярных механизмов TRPML1 в иммунитете с помощью моделей in vitro и vivo. TRPML2/Ca2 плюс передача сигналов модулирует высвобождение хемокинового (мотив CC) лиганда 2 (CCL2; также известного как хемоаттрактантный белок моноцитов 1 (MCP1)) из макрофагов (8) и действует как ключевой регулятор инфильтрации и миграции моноцитов и макрофагов (10).
Следовательно, передача сигналов Ca2 плюс через TRPML2 модулирует воспаление, регулируя высвобождение CCL2; это может служить жизнеспособной терапевтической мишенью для пациентов с воспалительными заболеваниями. В дополнение к участию TRPML2 в высвобождении хемокинов было показано, что TRPML 2-вызванный эндолизосомной передачей сигналов Ca2 плюс играет роль в переносе вирусов (38). Насколько нам известно, отсутствуют молекулярные доказательства, характеризующие роль TRPML3 в иммунитете. Хотя появляющиеся данные подчеркивают, что эндолизосомальные сигналы Ca2 plus, опосредованные TRPML, играют важную роль во врожденном и адаптивном иммунитете, необходимы дальнейшие исследования для расшифровки точных механизмов, лежащих в основе физиологических процессов этих каналов в иммунитете, от высвобождения хемокинов/цитокинов до антигена. презентация.
P2X4 R В ФАГОТОЗЕ, ВОСПАЛЕНИИ, ВЫБРОСЕ ЦИТОКИНОВ И УЧАСТИИ В Т-КЛЕТОЧНОЙ МИГРАЦИИ
Рецептор P2X4 принадлежит к семейству пуринергических рецепторов, участвует в вызванном АТФ высвобождении Са2+ и локализован в эндолизосомной системе (39). P2X4R-опосредованная передача сигналов Ca2 plus признана ключевым медиатором воспаления и невропатической боли (40–42). Недавние исследования продолжали проливать свет на роль P2X4R в физиологических процессах, связанных с иммунитетом. Активация экспрессии белка P2X4R наблюдалась на ранних стадиях фагоцитоза (с начальными фагоцитарными стимулами) в альвеолярных макрофагах (7), что предполагает участие P2X4R в фагоцитозе. Как обсуждалось ранее относительно роли TPCs и TRPMLs в фагоцитозе, мы предполагаем, что эндолизосомальные ионные каналы динамически взаимодействуют на молекулярном уровне, чтобы в конечном итоге опосредовать фагоцитоз; кроме того, эти каналы играют различные роли на разных этапах этого процесса. P2X4R опосредует вызванное аллергеном воспаление дыхательных путей посредством регуляции праймирования дендритных клеток для T-хелпера 2 (Th2), индуцируя секрецию IL-1ß (интерлейкин 1 бета) (43).
Точно так же было обнаружено, что P2X4R модулирует опосредованное рецептором P2X7 высвобождение двух провоспалительных цитокинов, IL-1β и IL18 (интерлейкин-18), которые опосредуют воспаление в дендритных клетках мышиного костного мозга (BMDC). (11). Мыши с дефицитом P2X4R проявляли защитные эффекты против острого ишемического повреждения почек по сравнению с мышами дикого типа; этот эффект был изучен на молекулярном уровне и связан с P2X4 Raugmented ишемическим острым повреждением почек посредством механизма, включающего активацию NLRP3 (пириновый домен семейства NLR, содержащий 3) в передаче сигналов воспаления (44). Инфламмасома представляет собой мультипротеиновый комплекс, который играет фундаментальную роль в воспалении клеток врожденного иммунитета посредством активации каспазы 1, которая отвечает за расщепление форм-предшественников двух важных медиаторов воспаления, IL-1β и IL18, в биологически активные цитокины (44).
Необходимы дальнейшие исследования для определения сложного взаимодействия между P2RX4, инфламмасомой и высвобождением IL-1ß и IL18. Фармакологическое ингибирование P2RX4 с помощью 5-BDBD (5-(3- бромфенил)-1,3-дигидро-2H-бензофуро[3,{{ 14}}e]-1,4-диазепин-2-1) препятствовали миграции Т-клеток (45). Миграция Т-клеток является важным шагом в функционировании Т-клеток. Кроме того, Ledderose et al. (44) представили существенные дополнительные доказательства, подтверждающие этот вывод. На мышиной модели in vivo они обнаружили, что фармакологическая модуляция P2X4R с помощью 5-BDBD приводила к отторжению трансплантатов легких за счет нарушения рекрутирования Т-клеток в ткани аллотрансплантата (45). Сверхэкспрессия P2X4R была обнаружена в CD4 плюс Т-клетках периферической крови и жировой ткани у здоровых людей с ожирением, что указывает на возможную роль P2X4R в хроническом воспалении, связанном с ожирением (46).
В целом, эти результаты подчеркивают иммунологическое значение P2X4R для врожденного и адаптивного иммунитета и требуют дальнейших исследований для биологической и клинической характеристики многофункциональной роли P2X4R в иммунитете. Это может способствовать развитию иммуномодуляторов для лечения воспалительных заболеваний и предотвращения отторжения трансплантата и осложнений трансплантации.
КЛИНИЧЕСКИЕ ИССЛЕДОВАНИЯ ЭНДОЛИЗОСОМНЫХ КАНАЛОВ CA2 plus ПРИ ЗАБОЛЕВАНИЯХ, СВЯЗАННЫХ С ИММУННОЙ СИСТЕМОЙ
Несмотря на растущий научный интерес к роли эндолизосомальных каналов Са2+ в иммунитете, исследований, в которых эти каналы классифицируются клинически, недостаточно. Недавнее исследование ассоциации генома в популяции китайцев хань идентифицировало TPCN2 как одну из четырех генных сигнатур, связанных с предрасположенностью к системной красной волчанке (СКВ), которая характеризуется как хроническое аутоиммунное заболевание (14).
Значительно сверхэкспрессированный P2X4 на уровне белка был обнаружен в тканях пациентов с гепатоцеллюлярной карциномой, индуцированной вирусом гепатита С, по сравнению с гепатоцеллюлярной карциномой, не индуцированной вирусом гепатита С (47). Это открытие поднимает клинический вопрос относительно возможности нацеливания на P2X4 для модуляции иммунного ответа, который способствует гепатоцеллюлярной карциноме, индуцированной вирусом гепатита С, что требует дальнейшего изучения, чтобы понять роль P2X4 в патологии гепатоцеллюлярной карциномы, индуцированной вирусом гепатита С.

ЗАКЛЮЧИТЕЛЬНЫЕ ЗАМЕЧАНИЯ И ПЕРСПЕКТИВЫ НА БУДУЩЕЕ
Растущий объем данных продолжает раскрывать функцию эндолизосомального Ca2 plus передачи сигналов в реакциях врожденных и адаптивных иммунных клеток. Стало ясно, что эндолизосомальные Ca2 плюс каналы, в основном TPC2 и TRPML-1, играют критическую роль в фагоцитозе на глобальном уровне, с различными ролями на разных стадиях фагоцитарного процесса. Важно отметить, что TRPML-2 и P2X4R участвуют в модулировании высвобождения хемокинов и цитокинов и, следовательно, в их влиянии на воспаление; однако точные механизмы, лежащие в основе действия этих каналов, остаются неясными и требуют дальнейшего изучения для определения специфической мишени выше или ниже по течению, чтобы преодолеть проблемы, связанные с повсеместным распространением сигналов Ca2 plus в наших клетках, и для модуляции врожденного иммунного ответа.
Недавние исследования проливают свет на роль TRPML-1 и P2X4 в функции адаптивных иммунных клеток и поднимают вопросы относительно их кандидатуры в качестве ценных мишеней для модуляции адаптивных иммунных ответов. Несмотря на нехватку клинических данных, GWAS выявил потенциальное применение TPC2 в качестве биомаркера для определения предрасположенности к СКВ в китайской популяции и требует проверки в проспективных когортах разнообразной популяции. Несмотря на исследовательский характер данных, подчеркивающих роль эндолизосомной передачи сигналов Са2 плюс в различных процессах, связанных с иммунитетом, этот мини-обзор предлагает некоторое понимание ключевой роли этих каналов в конкретных механизмах врожденного и адаптивного иммунитета, которые приводят к воспалению и расстройства, связанные с иммунной системой. Кроме того, возникают вопросы относительно клинической полезности этих каналов в качестве биомаркеров или мишеней иммунотерапии для модуляции врожденных и адаптивных иммунных ответов.
АВТОРСКИЙ ВКЛАД
А.А. внес свой вклад в вопрос мини-обзора исследования, сбор данных и интерпретацию, а также написал рукопись. JP пересмотрел рукопись. Все авторы внесли свой вклад в статью и одобрили представленную версию.
БЛАГОДАРНОСТИ
AA получает стипендию Министерства образования Саудовской Аравии. Кроме того, Министерство образования Саудовской Аравии поддержало обучение АА в аспирантуре. Фигура была создана с помощью BioRender.com.

ИСПОЛЬЗОВАННАЯ ЛИТЕРАТУРА
1. Рао А., Хоган П.Г. Сигнализация кальция в клетках иммунной и кроветворной систем. Immunol Rev (2009) 231(1):5–9. doi: 10.1111/j.1600-065X.2009.00823.x
2. Требак М., Кинет Дж. П. Передача сигналов кальция в Т-клетках. Nat Rev Immunol (2019) 19 (3): 154–69. дои: 10.1038/с41577-018-0110-7
3. Hann J, Bueb JL, Tolle F, Bréchard S. Передача сигналов кальция и регуляция функций нейтрофилов: еще долгий путь. J Leukocyte Biol (2020) 107 (2): 285–97. doi: 10.1002/JLB.3RU0719-241R
4. Пак Ю.Дж., Ю С.А., Ким М., Ким У. Роль сигнального пути кальций-кальциневрин-NFAT в здоровье и аутоиммунных заболеваниях. Фронт Иммунол (2020) 11:195. doi: 10.3389/femme.2020.00195
5. Вайднер Х.Э., Фаррингтон Дж., Барнард С., Пичелл П.Т., Шнакенберг К.Г., Марино Дж.П. Orai и характеристика канала TRPC в опосредованной Fcϵri передаче сигналов кальция и секреции медиатора в тучных клетках человека. Physiol Rep (2017) 5(5):e13166. дои: 10.14814/phy2.13166
6. Davis LC, Morgan AJ, Galione A. NAADP-регулируемые двухпоровые каналы управляют фагоцитозом посредством эндолизосомального Ca2 плюс нанодомены, кальцинейрин и динамин. EMBO J (2020) 8: e104058. дои: 10.15252/bj.2019104058
7. Стокс Л., Сурпренант А. Динамическая регуляция рецептора P2X4 в альвеолярных макрофагах путем фагоцитоза и классической активации. Eur J Immunol (2009) 39(4):986–95. дои: 10.1002/emoji.200838818
8. Plesch E, Chen CC, Butz E, Rosato AS, Krogsaeter EK, Yinan H, et al. Селективный агонист TRPML2 раскрывает прямую роль в высвобождении хемокинов из клеток врожденного иммунитета. Элиф (2018) 7:e39720. doi: 10.7554/eLife.39720
9. Arlt E, Fraticelli M, Tsvilovskyy V, Nadolni W, Breit A, O'Neill TJ, et al. Дефицит или блокада TPC1 усиливает системную анафилаксию и активность тучных клеток. Proc Natl Acad Sci (2020) 117 (30): 18068–78. doi: 10.1073/pnas.1920122117
10. Дешмане С.Л., Кремлев С., Амини С., Савайя Б.Е. Белок-хемоаттрактант моноцитов-1 (MCP-1): обзор. J Interferon Cytokine Res (2009) 29(6):313–26. doi: 10.1089/jr.2008.0027
11. Сакаки Х., Фудзиваки Т., Цукимото М., Кавано А., Харада Х., Кодзима С. Рецептор P2X4 регулирует зависимый от рецептора P2X7 высвобождение IL-1b и IL-18 в дендритных клетках костного мозга мыши. . Biochem Biophys Res Commun (2013) 432(3):406–11. doi: 10.1016/j.bbrc.2013.01.135
12. Li X, Saitoh SI, Shibata T, Tanimura N, Fukui R, Miyake K. Муколипин 1 положительно регулирует ответы TLR7 в дендритных клетках, облегчая транспорт РНК в лизосомы. Int Immunol (2015) 27(2):83–94. дои: 10.1093/intimm/dxu086
13. Даям Р.М., Сарич А., Шиллидей Р.Э., Ботелхо Р.Дж. Фосфоинозитид-управляемый лизосомальный Ca2 плюс канал, TRPML1, необходим для созревания фагосом. Трафик (2015) 16 (9): 1010–26. дои: 10.1111/tra.12303
14. Вэнь Л., Чжу С., Чжу З., Ян С., Чжэн С., Лю Л. и др. Исследование ассоциации Exome-Wide идентифицирует четыре новых локуса для системной красной волчанки в популяции ханьцев. Энн Реум Дис (2018) 77 (3): 417.
15. Davis LC, Morgan AJ, Chen JL, Snead CM, Bloor-Young D, Shenderov E, et al. NAADP активирует двухпоровые каналы на цитолитических гранулах Т-клеток, чтобы стимулировать экзоцитоз и уничтожение. Curr Biol (2012) 22 (24): 2331–7. doi: 10.1016/j.cub.2012.10.035
16. Морган А.Дж., Галионе А. Двухпоровые каналы (TPCs): текущие споры. Bioessays (2014) 36 (2): 173–83. doi: 10.1002/bies.201300118
17. Wang X, Zhang X, Dong XP, Samie M, Li X, Cheng X и др. Белки TPC представляют собой активируемые фосфоинозитидом селективные к натрию ионные каналы в эндосомах и лизосомах. Ячейка (2012) 151: 372–83: 2. doi: 10.1016/j.cell.2012.08.036
18. Brailoiu E, Churamani D, Cai X, Schrlau MG, Brailoiu GC, Gao X, et al. Основное требование для двухпорового канала 1 в NAADP-опосредованной передаче сигналов кальция. J Cell Biol (2009) 186: 201–9: 2. DOI: 10.1083/jcb.200904073
19. Zong X, Schieder M, Cuny H, Fenske S, Gruner C, Rötzer K, et al. Канал TwoPore TPCN2 опосредует NAADP-зависимое высвобождение Ca 2 plus из лизосомальных запасов. Pflügers Archiv-Eur J Physiol (2009) 458.5:891–9. doi: 10.1007/s00424-009-0690-год
20. Calcraft PJ, Ruas M, Pan Z, Cheng X, Arredouani A, Hao X и другие. NAADP мобилизует кальций из кислых органелл через двухпоровые каналы. Природа (2009) 459.7246: 596–600. дои: 10.1038/nature08030
21. Вестман Дж., Фримен С.А., Гринштейн С. Нетрадиционная роль лизосом в фагоцитозе. Клеточный кальций (2020) 91:102269. doi: 10.1016/j.ceca.2020.102269
22. Суреш Б., Сваминатан А., Чакраборти К., Куи С., Беккер Л., Кришнан Ю. Трубчатые лизосомы содержат градиенты активных ионов и макрофаги для фагоцитоза. биоРксив (2020). дои: 10.1101/2020.12.05.413229
23. Фриман С.А., Удерхардт С., Сарич А., Коллинз Р.Ф., Бакли С.М., Милваганам С. и соавт. Липидзависимые потоки моновалентных ионов регулируют эндоцитарный трафик и поддерживают иммунный надзор. Наука (2020) 367 (6475): 301–5. doi: 10.1126/science.aaw9544
24. Гунаратне Г.С., Ян Ю., Ли Ф., Уолсет Т.Ф., Маршан Дж.С. NAADP-зависимая передача сигналов Ca2 plus регулирует транслокацию псевдовируса Ближневосточного респираторного синдрома и коронавируса через эндолизосомальную систему. Клеточный кальций (2018) 75:30–41. doi: 10.1016/j.ceca.2018.08.003
25. Сакураи Ю., Колокольцов А.А., Чен С.С., Тидвелл М.В., Баута В.Е., Клугбауэр Н. и соавт. Каналы с двумя порами контролируют проникновение вируса Эбола в клетки-хозяева и являются мишенями для лекарств при лечении заболеваний. Наука (2015) 347 (6225): 995–8. дои: 10.1126/наука.1258758
26. Пенни С.Дж., Васильева К., Джа А., Юань Ю., Чи Х., Йейтс Э. и др. Добыча ингибиторов проникновения вируса Эбола идентифицирует одобренные лекарства как блокаторы пор с двумя порами. Biochim Et Biophys Acta (BBA)-Mol Cell Res (2019) 1866(7):1151–61. doi: 10.1016/j.bbamcr.2018.10.022
27. Ou X, Liu Y, Lei X, Li P, Mi D, Ren L, et al. Характеристика спайкового гликопротеина SARS-CoV-2 на проникновение вируса и его иммунную перекрестную реактивность с SARSCov. Nat Commun (2020) 11 (1): 1–2. doi: 10.1038/s41467-020-15562-9'
28. Клементи Н., Сканьолари С., Д'Аморе А., Паломби Ф., Крискуоло Э., Фраска Ф. и другие. Нарингенин является мощным ингибитором инфекции SARS-CoV-2 in vitro. Фармакол Рез (2020). doi: 10.1016/j.phrs.2020.105255
29. Розато А.С., Танг Р., Гримм С. Двухпоровые и TRPML-катионные каналы: регуляторы фагоцитоза, аутофагии и лизосомального экзоцитоза. Pharmacol Ther (2020) 220:107713. doi: 10.1016/j.pharmthera.2020.107713
30. Венкатачалам К., Вонг К.О., Чжу М.Х. Роль TRPML в эндолизосомном трафике и функциях. Клеточный кальций (2015) 58 (1): 48–56. doi: 10.1016/j.ceca.2014.10.008
31. Spix B, Chao YK, Abrahamian C, Chen CC, Grimm C. Катионные каналы TRPML при воспалении и иммунитете. Фронт Иммунол (2020) 11:225. doi: 10.3389/femme.2020.00225
32. Сантони Г., Морелли М.Б., Амантини С., Сантони М., Набисси М., Маринелли О. и соавт. «Ионные каналы иммунотранзиентного рецептора»: роль в воспалительных реакциях, опосредованных моноцитами и макрофагами. Фронт Иммунол (2018) 9:1273. doi: 10.3389/fimmu.2018.01273
33. Песня Ю., Даялу Р., Мэтьюз С.А., Шаренберг А.М. Катионные каналы TRPML регулируют специализированный лизосомальный отдел В-лимфоцитов позвоночных. Eur J Cell Biol (2006) 85(12):1253–64. doi: 10.1016/j.ejcb.2006.08.004
34. Samie M, Wang X, Zhang X, Goschka A, Li X, Cheng X, et al. Канал TRP в лизосоме регулирует фагоцитоз крупных частиц посредством очагового экзоцитоза. Dev Cell (2013) 26 (5): 511–24. doi: 10.1016/j.devcel.2013.08.003
35. Li X, Rydzewski N, Hider A, Zhang X, Yang J, Wang W, et al. Молекулярный механизм регуляции подвижности лизосом для позиционирования лизосом и трубчатости. Nat Cell Biol (2016) 18(4):404–17. дои: 10.1038/ncb3324
36. Goodridge JP, Jacobs B, Saetersmoen ML, Clement D, Hammer Q, Clancy T, et al. Ремоделирование секреторных лизосом во время образования настраивает функциональный потенциал NK-клеток. Nat Commun (2019) 10 (1): 1–5. doi: 10,1038/с41467- 019-08384-x
37. Брету М., Саес П.Дж., Сансо Д., Морин М., Ланкар Д., Шабо М. и др. Передача сигналов лизосом контролирует миграцию дендритных клеток. Научный иммунолог (2017) 2 (16). doi: 10.1126/sciimmunol.aak9573
38. Ринкенбергер Н., Шоггинс Дж.В. Катионный канал Mucolipin-2 повышает эффективность переноса эндоцитированных вирусов. МБио (2018) 9 (1). doi: 10.1128/mBio.02314-17
39. Murrell-Lagnado RD, Frick M. P2X4 и слияние лизосом. Curr Opin Pharmacol (2019) 47:126–32. doi: 10.1016/j.coph.2019.03.002
40. Суурвяли Дж., Будино П., Канеллопулос Дж., Будино С.Р. P2x4: быстрый и чувствительный пуринергический рецептор. Биомед J (2017) 40 (5): 245–56. doi: 10.1016/j.bj.2017.06.010
41. Транг Т., Солтер М.В. Пуринорецептор P2X4, сигнализирующий при хронической боли. Пуринергическая сигнализация (2012) 8(3):621–8. doi: 10.1007/с11302-012-9306-7
42. Kang L, Yayi H, Fang Z, Bo Z, Zhongyuan X. Дексмедетомидин ослабляет экспрессию P2X4 и NLRP3 в позвоночнике крыс с диабетической невропатической болью. Бюстгальтеры Acta Ciurg (2019) 34 (11). дои: 10.1590/с0102-865020190110000005
43. Zech A, Wiesler B, Ayata CK, Schlaich T, Dürk T, Hoßfeld M, et al. Дефицит P2rx4 у мышей облегчает вызванное аллергеном воспаление дыхательных путей. Онкотаргет (2016) 7(49):80288. doi: 10.18632/oncotarget.13375
44. Хан С.Дж., Ловази М., Ким М., Д'Агати В., Хаско Г., Ли Х.Т. Рецептор P2X4 усугубляет ишемическое ОПП и индуцирует сигнализацию воспаления NLRP3 в проксимальных канальцах почек. FASEB J (2020) 34 (4): 5465–82. дои: 10.1096/fj.201903287R
45. Ledderose C, Liu K, Kondo Y, Slubowski CJ, Dertnig T, Denicoló S, et al. Пуринергические рецепторы P2X4 и продукция митохондриального АТФ регулируют миграцию Т-клеток. J Clin Invest (2018) 128 (8): 3583–94. дои: 10.1172/JCI120972
46. Руис-Родригес В.М., Кортес-Гаркья Х.Д., де Хесус Брионес-Эспиноза М., Родригес-Варела Э., Вега-Катарденас М., Гомес-Отеро А. и др. Рецептор P2X4 как модулятор функции рецептора P2X в CD4 плюс Т-клетках периферической крови и жировой ткани. Мол Иммунол (2019) 112: 369–77. doi: 10.1016/j.molimm.2019.06.009
47. Халид М., Манзур С., Ахмад Х., Асиф А., Бангаш Т.А., Латиф А. и др. Экспрессия пуринорецепторов при гепатоцеллюлярной карциноме, индуцированной гепатоцеллюлярным вирусом (ВГС), и гепатоцеллюлярной карциноме, не связанной с ВГС: понимание провирусной роли рецептора P2X4. Мол Биол Реп (2018) 45(6):2625–30. doi: 10.1007/с11033-018-4432-0

Конфликт интересов:
Авторы заявляют, что исследование проводилось при отсутствии каких-либо коммерческих или финансовых отношений, которые могли бы быть истолкованы как потенциальный конфликт интересов.
Copyright © 2021 Альхарби и Паррингтон. Это статья с открытым доступом, распространяемая на условиях лицензии Creative Commons Attribution License (CC BY). Использование, распространение или воспроизведение на других форумах разрешено при условии, что в соответствии с общепринятой академической практикой указан первоначальный автор(ы) и владелец(и) авторских прав и цитируется оригинальная публикация в этом журнале. Запрещается использование, распространение или воспроизведение без соблюдения этих условий.
For more information:1950477648nn@gmail.com