Использование фенольных соединений из оливковой растительности в воде цыплят-бройлеров: влияние на микробиоту кишечника и срок годности филе грудки, часть 3
Mar 12, 2022
Пожалуйста свяжитесьoscar.xiao@wecistanche.comЧтобы получить больше информации
2.7. Окисление липидов
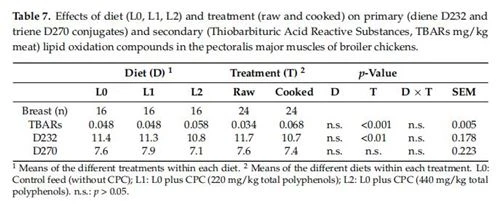
Окисление липидов изучали посредством измерения вторичного (TBAR) и первичного (D232 и D270)окислениесоединений (табл. 7). Достоверных различий между тремя опытными группами отмечено не было, хотя стоит отметить незначительное увеличение значений TBARs у цыплят в группе L2 по отношению к таковым в группах L1 и L0, тогда как D232 показал обратную тенденцию. Эти два аналитических показателя были значительно коррелированы (TBAR против D232 r=-0.5,p<0.001 and="" tbars="" vs.="" d270r=""><0.05). the="" cooking="" treatment="" caused="" decreases="" in="" the="" primary="" oxidation="" products=""><0.01), which="" were="" followed="" by="" increases="" in="" the="" secondary="" ones="" (p=""><0.001). no="" interactions="" between="" diet="" and="" cooking="" were="" observed.="" on="" the="" contrary,="" [31]and="" [45]="" observed="" a="" significant="" reduction="" in="" tbars="" in="" the="" breasts="" from="" chickens="" whose="" diets="" were="" supplemented="" with="" either="" olive="" cake="" or="" omww.="" similarly,="" [46]="" observed="" a="" reduction="" in="" tbars="" in="" the="" quadriceps="" femoris="" of="" chickens="" whose="" diets="" were="" enriched="" with="" omww="" permeate="" and="" the="">
Пожалуйста, нажмите здесь, чтобы узнать больше
Оке и др. [16] добавляли различные объемы экстракта листьев оливы (5, 10 и 15 мл/л) в питьевую воду, подаваемую бройлерам линии Abor acre, наблюдая значительное влияние на снижение уровня малонового диальдегида (МДА) в крови. Ибрагим и др. [42] наблюдали значительное снижение концентрации МДА в куриной грудке, полученной при добавлении в рацион повышенных уровней ферментированных или ферментативно ферментированных сушеных оливковых жмыхов. В отличие от других исследований, в настоящем исследовании не наблюдалось защитного эффекта против окисления мышечного жира в мышечной ткани. Есть много факторов, которые вызывают изменчивость и различия между исследованиями. Помимо породы животных и продолжительности периода откорма, другие факторы, такие как питательный состав рациона, потребление корма, температура окружающей среды вместе с другими стрессовыми условиями, могут привести к очень разным результатам, которые часто трудно сравнивать. Не последний тип матрицы, с которой диета обогащается фенолами (оливковый жмых, оливковый жмых, экстракт листьев оливы, растительный водный экстракт, и это лишь некоторые из них) благодаря концентрации активных соединений и присутствию дополнительных веществ. с синергетическим или защитным действием, присутствующим в одной и той же матрице, могут значительно влиять на антиоксидантное действие как в естественных условиях, так и в мясных тканях после убоя [47]. Потенциальная польза для здоровья от включения антиоксидантных добавок в свежее мясо и мясные продукты не всегда доказана [48]. Напротив, многие первичные и вторичные соединения окисления липидов и белков, такие какгидропероксидыэпоксиды,4-гидроксиноненаль, малоновый альдегидпризнаны потенциальными канцерогенами или могут влиять на передачу клеточного сигнала, как в случае с карбонильными соединениями [49]. В случае свежего мяса возможность повышения антиоксидантного потенциала за счет нормирования животных является весьма многообещающей перспективой, особенно при использовании натуральных, а не синтетических веществ. На самом деле, в отличие от мясных продуктов, где технология предлагает различные возможности для повышения антиоксидантного потенциала, в свежем мясе единственная альтернатива вмешательству через рацион животных – это обработка, направленная на поверхность продукта, которая, однако, должна быть обработана. соответствует действующему законодательству. Остаточное количество фенолов, измеренное в грудном мясе в настоящем исследовании, вряд ли принесет прямую пользу для здоровья, но косвенно может принести пользу. Приготовление мяса, например, вызывает чистую потерю антиоксидантной защиты тканей, поэтому обогащение мясной ткани соединениями, которые остаются активными даже после термической обработки, как в случае сфенолы, представляет большой прикладной интерес ввиду увеличения срока годности и безопасности самого продукта. Причина, по которой ни в видео, ни в экс видео эффекты не наблюдались в результате пробного кормления с CPC, заслуживает дальнейших экспериментальных исследований, особенно в отношении взаимодействия междудиетические полифенолыи кишечная микробиота курицы, на которую она оказывает значительную часть потенциальных биохимических эффектов фенолов [9,10].
3. Материалы и методы 3.1. Экспериментальные объекты
Испытание проводилось в птичнике Экспериментальной фермы Падуанского университета (Леньяро, Падуя, Италия) после 6 месяцев простоя. Птичник был оборудован системой охлаждения, принудительной вентиляцией, лучистым отоплением и системами регулируемого освещения. Всего было использовано 12 станков с проволочной сеткой (2,5×2,4 м; 6 м2), каждый из которых был оборудован пятью ниппельными поилками (расстояние: 20 см) и круглой кормушкой (диаметр: 30 см) для ручной раздачи корма. В каждом загоне был бетонный пол, покрытый древесно-стружечной подстилкой (толщиной 5 см, 2,5 кг/м).
Свет давали 24 часа в сутки в течение первых 2 дней после прибытия цыплят в птичник. Затем количество световых часов постепенно уменьшали до тех пор, пока не был достигнут фотопериод 18L:6D, который затем поддерживался с 12-дневного возраста.
Цистанхе может улучшить иммунитет
3.2. Животные, экспериментальные группы и записи in vivo
Исследование было одобрено Комитетом по этике экспериментов на животных (Organismo per la Protezione del Benessere Animale; OPBA) Университета Падуи (проект 17/2016; № 154392 от 10 мая 2016 г.). Со всеми животными обращались в соответствии с принципами Директивы 2010/63/ЕС[50] о защите животных, используемых в экспериментальных и других научных целях. Исследователи, занимающиеся обращением с животными, были либо специалистами по животным (доктор философии или степень магистра в области зоотехники), либо практикующими ветеринарами.
Всего 144 1-суточных цыплят (Ross 308) было доставлено коммерческим грузовиком в соответствии с Постановлением Совета (ЕС) № 1/2005 [51] на экспериментальные объекты Университета. Все цыплята были вакцинированы против болезни Марека, инфекционного бронхита и болезни Ньюкасла в инкубаторе. Цыплят индивидуально взвешивали в день прибытия, идентифицировали по отметке на ноге, случайным образом распределяли по 12 загонам (12 голов в загоне и 10 голов/м²).),а затем взвешивали один раз в неделю для измерения их живой массы до коммерческого убоя. Потребление корма в загоне измеряли ежедневно во время испытания. Во время испытания применялись три коммерческих рациона в виде крошки (Martini SpA Longiano, Forli-Cesena, Италия): рацион P1 с 0до 23 дней, рацион P2 с 24 до 37 дня и рацион P3 с 38 дня до убой в 48 дней (см. дополнительные материалы для аналитических данных, таблица S1). Сырой фенольный концентрат (ФК) получали по методике [12], вкратце, ОВВ обрабатывали ферментами с пектиназной и гемицеллюлозной активностью, а затем подвергали микрофильтрации, ультрафильтрации и обратному осмосу. КФК добавляли в рационы следующим образом: i) L0 Контрольный рацион (P3), (ii) L1 Контрольный рацион плюс CPC (220 мг/кг корма в расчете на общее количество фенолов), (i) L2 Контрольный рацион плюс CPC (440 мг/кг корма в расчете на теоретическое значение) общие фенолы). Фактическое содержание отдельных фенольных соединений в CPC и в рационах указано в Таблице S2. Каждый рацион был воспроизведен в четырех станках (однородных по исходной живой массе и изменчивости). CPC поставляли с 24-дневного возраста (d) до коммерческого убоя в возрасте 48 дней (см. Дополнительный материал о фенольном составе CPC). Всех животных кормили вволю на протяжении всего испытания, и еженедельно готовили рационы с добавками.
Для определения состава кишечного микробного сообщества брали клоакальные мазки (4 животных/загон) в возрасте 23, 34 и 44 дня, всего у 12 животных (по 4 на каждом рационе), которых тестировали три раза (36 мазков). образцы собраны в целом).
3.3. Коммерческий убой и учет качества туш и мяса
В 48-дневном возрасте после прекращения кормления и воды (через 7 и 2 ч соответственно) всех цыплят забили на промышленной бойне. Цыплят индивидуально взвешивали перед помещением в ящики. Всех цыплят из загона загружали в транспортную клетку (высота 62,5 см × 160 см × 25,0 см; площадь пола, 1 m²). Загрузка и транспортировка из экспериментальных помещений на коммерческую бойню и предубойное содержание перед убоем заняли примерно 3 часа. Цыплят забивали в соответствии со стандартной практикой коммерческой бойни. Туши извлекали после 2-часового охлаждения при 2 градусах и индивидуально взвешивали для измерения процента убойной разделки [52].
Через 24 часа после убоя туши вскрывали, чтобы отделить большие грудные мышцы от грудок [53].
Во время испытания была зарегистрирована потеря 17,4% (25 цыплят) из-за падежа. Из 119 тушек 72 были подвергнуты микробиологическому анализу в течение срока годности (в разделе 2.4 поясняется определение состава микробиоты груди культурально-зависимыми и независимыми методами), а остальные 47 были заморожены (-40 степени) и впоследствии использовались для оценки приблизительного состава и скорости окисления липидов сырого и приготовленного мяса (параграф 3.5).
3.4.Оценка срока годности
3.4.1.Приготовление упакованной куриной грудки
Большие мышцы P были индивидуально упакованы в лотки из полиэтилена низкой плотности, обернутые пленкой ПВХ толщиной 12 мкм.(Вейгель,KOEX412,Группа Фаббри,Виньола,Модена,Италия) и хранили при температуре 4 ± 1 градус в холодильной камере (Majolo Plus 1 00 Seasoning Controller, Majolo, Кадонеге, Падуя, Италия). Воздействие света фиксировали от 8:00 до 20:00 с использованием люминесцентной лампы мощностью 36 Вт [54]. Параметры хранения были разработаны с целью имитировать условия охлаждения во время продажи. Упаковки были отобраны случайным образом через 24, 72, 120, 180, 216 и 264 ч после дата убоя
3.4.2. Сенсорный анализ
Органолептическая оценка свежих грудок проводилась в соответствии с [37] с использованием системы 3-оценки недостатков (1=неприемлемо,2=приемлемо, 3=хорошее качество). Синтетический органолептический индекс (SI) рассчитывали как [(2×показатель запаха плюс 2×показатель цвета плюс 1×показатель текстуры)/5], при этом показатель 1,8 действовал как порог для определения испорченных образцов. Органолептический анализ проводили восемь обученных экспертов.
3.4.3.Микробиологический анализ грудки в течение срока годности
Микробиологические анализы проводили по методикам, описанным в [38]. Большие грудные мышцы (около 2 см в длину, 1 см в глубину и 2 см в ширину) вырезали в асептических условиях вдоль каждой груди, чтобы получить репрезентативную выборку из 25 мышц на грудь. Образцы смешивали в мешке для желудка с 225 мл забуференной пептонной воды и анализировали после соответствующих разбавлений. Для выделения ДНК 1 мл каждого гомогената собирали в пробирки Эппендорфа объемом 2 мл и центрифугировали при 13 500×g в течение 1 мин (центрифуга Eppendorf 5425, Гамбург, Германия). Затем супернатант отбрасывали, а осадок замораживали при -80 градусах. Было исследовано несколько микробных мишеней, чтобы описать динамику микробной популяции в течение срока годности следующим образом: общее количество жизнеспособных организмов (TVC) и общее число психротрофов (TPC) оценивали на агаре для подсчета чашек (Biokar Diagnostics, Бове, Франция). и планшеты инкубировали при 30°С в течение 72 часов или при 4°С в течение 10 дней. Энтеробактерии подсчитывали на глюкозном агаре с фиолетово-красной желчью (Biokar Diagnostics, Бове, Франция) при 37°С в течение 24 часов. Молочнокислые бактерии (МКБ) анализировали на агаре Де Мана, Рогозы и Шарпа (Biokar Diagnostics, Бове, Франция) в анаэробных условиях при 30°С в течение 48 часов. Pseudomonas spp. подсчет оценивали на основе агара Pseudomonas с добавлением цетримида, фуцидина и цефалоридина при 25°С в течение 48 ч (Oxoid Ltd., Basingstoke, Hampshire, UK). Подсчет H2S-продуцирующих бактерий (предположительно Shewanella spp.) проводили на железосодержащем агаре (Lyngby, Laboratorios Conda, Torrejon de Ardoz, Испания) при 25°С в течение 48 часов. Результаты представлены в виде log10 КОЕ/г мяса.
3.4.4.pH и потеря влаги
Измеритель рН (Portamess 910, Knick, Берлин, Германия), снабженный специальным электродом (Mettler Toledo, Милан, Италия), использовали для измерения значений рН путем введения в большие грудные мышцы в трех экземплярах на их вентральной стороне. Потеря стекания оценивалась в соответствии с методом, представленным в [55], с использованием мешкового метода. Срезы приблизительно 2,5 см, отрезанные от поверхности спинной части груди, помещали в полиэтиленовые пакеты и подвешивали на ночь при температуре 2±1°C. Потерю стекания (в процентах) рассчитывали по следующему уравнению: [(начальный вес - конечный вес)/начальный вес ].
3.4.5. Концентрация фенола в рационе и в грудной мышце
Экстракцию фенолов проводили на 5 г образца измельченного корма, смешанного с 50 мл раствора метанол/вода (80/20(о/о)), содержащего 20 мг/л бутилированного гидрокситолуола (БГТ), смесь гомогенизировали с использованием стержневого диспергатора (IKA, T50 Ultra-Turrax, Werke, Staufen, Germany) в течение 1 мин при 7000 об/мин, центрифугировали при 9327×g в течение 10 мин и извлекали надосадочную жидкость.Процедуру повторяли дважды, и собранный экстракт затем концентрировали с помощью роторного испарителя (Buchi Rotavapor, R-210, Швейцария) до достижения конечного объема 20 мл. Картриджи для ТФЭ Bond Elut Jr-C, 18 г (Agilent Technologies, Санта-Клара, Калифорния, США) ), предварительно активированный 10 мл метанола и 10 мл воды, загружали 1 мл водного экстракта элюирование проводили 50 мл метанола После удаления растворителя в вакууме фенольный экстракт солюбилизировали в 1 мл раствора состоит из метанола/воды (50:50 по объему) и фильтруется через шприцевой фильтр из поливинилиденфторида (ПВДФ) (0,2 мм). качественный и количественный анализ фенольных соединений экстракта проводили согласно [31] методом
ВЭЖХ (Mod. 1100 Agilent Technologies, Санта-Клара, Калифорния, США), оснащенная колонкой C18 (Spherisorb ODS-1(250 мм × 4,6 мм) с размером частиц 5 мкм, поставляемая Waters SpA (Милан, Италия) . Фенольные соединения определяли с использованием набора DAD при 280 нм. Количественное определение полифенолов определяли с использованием отдельных калибровочных кривых для каждого соединения, и результаты выражали в мг/кг-1. Гидрокситирозол (3,{{ 10}}DHPEA) был получен от Cabru SpA (Милан, Италия), тирозол p-HPEA был приобретен у Merck Life Science Srl (Милан, Италия), а вербаскозид был получен от Extrasynthese (Genay, Франция). агликон де-карбоксиметилолеуропеина (3,4-DHPEA-EDA) экстрагировали из оливкового масла первого отжима в соответствии с процедурой, описанной в [56].
В общей сложности 10 граммов мяса смешали с 50 мл метанола и воды.(80/20,o/ø)содержащий муравьиную кислоту {{0}},2 процента и 20 мг/л BHT. Раствор гомогенизировали с использованием стержневого диспергатора (IKA, T50 Ultra-Turrax, Werke, Staufen, Germany) в течение 1 мин при 7000 об/мин, центрифугировали при 4146×g в течение 10 мин и извлекали надосадочную жидкость. Операцию повторяли дважды, собирали две аликвоты экстракта и удаляли метанол с помощью роторного испарителя (Buchi Rotavapor, R-210, Швейцария). Двадцать мл водного экстракта загружали в картриджи SPE Bond Elut HF Mega BE-C18,5g (Agilent Technologies, Санта-Клара, Калифорния, США), предварительно активированные 20 мл метанола и 20 мл воды; элюцию проводили 50 мл метанола. После удаления растворителя в вакууме фенольный экстракт восстанавливали 0,5 мл раствора, состоящего из метанола/воды.(50∶50 o/ø)и фильтруют через поливинилиденфторид(ПВДФ)шприцевой фильтр (0,2 мм). ВЭЖХ-анализ фенольных экстрактов проводили в соответствии с [56] на том же оборудовании, о котором сообщалось выше. Гидрокситирозол обнаруживали с помощью флуоресцентного детектора (FLD), работающего при длине волны возбуждения 280 нм и эмиссии 313 нм. Количественное определение гидрокситирозола проводили с использованием калибровочной кривой, и результаты выражали в мкг/кг.
3.5. Приблизительный состав, потери при кулинарной обработке и анализ жирных кислот
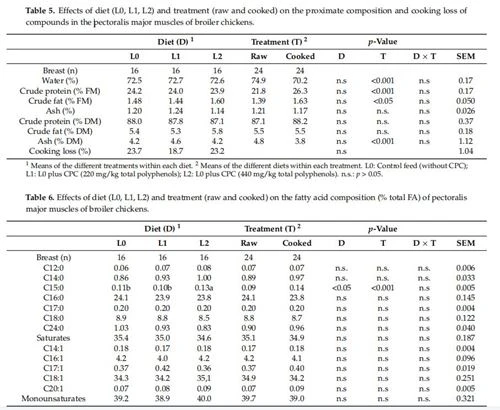
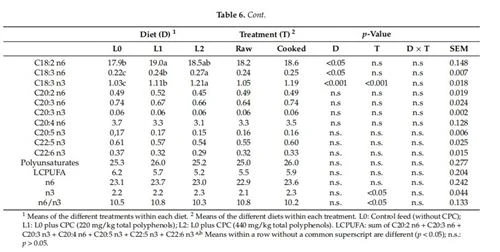
Примерный состав, профиль жирных кислот и устойчивость к окислению оценивали как на сырых (правая сторона P. major), так и на приготовленных (левая сторона P. maijor) образцах. После оттаивания потери при варке оценивали согласно [53] со следующими изменениями: левую половину каждой грудки взвешивали, упаковывали в вакуум и готовили на водяной бане при 80 градусах в течение 45 мин. После этого грудки подвергали шоковой заморозке до 4 градусов и хранили в холодильнике (4 градуса) в течение 72 часов, после чего распаковывали и снова взвешивали для расчета потерь при тепловой обработке как [(вес сырого мяса - вес приготовленного мяса)/вес сырого мяса ]×100). Мышцы, как сырые, так и приготовленные, были тонко измельчены (дважды 2500 об/мин × 10 с, Retsch, Дюссельдорф, Германия) и подвергнуты анализу влажности, сырого белка и золы [57], а содержание сырого жира определялось с использованием представленного метода. по [58]. Вкратце, 200 мл смеси дихлорметан/метанол 1:1 добавляли к 5 г образца, гомогенизировали при 11 000/мин в течение 1 мин (Ultraturrax T25 Basic, Ika Werke, Штауфен, Германия) и инкубировали при 60 C в печи (система PID, M120-VF, инструменты MPN, Bernaggio, MB, Италия) в течение 20 мин. Затем добавляли еще 100 мл дихлорметана и после гомогенизации (11 000/мин в течение 1 мин) образец фильтровали (бумажный фильтр быстрого действия) и к пермеату добавляли 100 мл KCl 1 М. После центрифугирования (AvantiJ-E, Beckman Coulter, Бреа, Калифорния, США) при 1000×g в течение 30 минут при 4 градусах надосадочную жидкость сливали, а органический экстракт фильтровали через безводный сульфат натрия. Аликвоту (около 10 г) использовали для гравиметрического определения процентного содержания жира, остаток перегоняли (Rotavapor"R-210, Büchi, Эссен, Германия), а безводный жир использовали для дальнейшего анализа. Жирная кислота метиловые эфиры (МЭЖК) получали путем отвешивания 0,015 г безводного жира в стеклянную пробирку с завинчивающейся крышкой [39], которую солюбилизировали 1 мл 3 М метанольного раствора HCl (Sigma-Aldrich, Сент-Луис, Миссури, США). и инкубировали 2 ч при 60°С, затем добавляли 1 мл деионизированной воды и,после смешивания,МЭЖК извлекали в 1 мл н-гексана. FAME(1 μL)были проанализированы с помощью газового хроматографа (Shimadzu Italia Srl, модель 2014, Милан, Италия), оснащенного пламенно-ионизационным детектором (установленным на 250 градусов) и раздельным инжектором (установленным на 280 градусов). Термокамера, в которой находилась капиллярная колонка (Supelco SP-2560; 100 м × 0,25 мм × 0,2 мкм), выдерживалась при температуре 60 градусов в течение 8 минут. Затем температуру повышали до 120° в течение 1 мин со скоростью 10°/мин, а затем от 120 до 240° со скоростью 2,5°С/мин. Конечную изотерму выдерживали при 240°С в течение 20 мин. Жирные кислоты идентифицировали с помощью смеси внешних стандартов (37 Component FAME Mix, Supelco, Германия). Анализы сдавали дважды.
3.6. Окисление липидов
Соединения первичного окисления определяли в виде сопряженных диенов спектрофотометрическим анализом в ультрафиолетовой области с использованием модифицированного варианта метода, указанного в приложении Совета Рег. ЕС/2015/1833 [59]. Вкратце,0.01±0,001 г безводного жира отвешивают в градуированную колбу на 10 мл и растворяют в циклогексане для спектрофотометрии до метки. Спектрофотометр UV/Vis (мод. 7800 Jasco UV/VIS, Оклахома-Сити, Оклахома, США) использовали для определения удельных значений экстинкции при 232 (сопряженные диены) и 270 нм (сопряженные триены) с использованием того же растворителя, что и ссылка. Вторичные продукты окисления липидов определяли по методике [60] с модификациями: в центрифужную пробирку добавляли 8 мл водного раствора 5-процентной (масс./об.) трихлоруксусной кислоты и 5 мл н-гексана. добавляли приблизительно к 2 г гомогенизированного образца. После гомогенизации с Ultraturrax в течение 30 с на высокой скорости. образец центрифугировали в течение 3 мин при 3000×g при 4°С (Eppendorf 5810R; Eppendorf, Гамбург, Германия) и удаляли супернатант. Пробу фильтровали через скоростной бумажный фильтр, 2,5 мл фильтрата добавляли к 2,5 мл водного раствора 0,02 М тиобарбитуровой кислоты и инкубировали 35 мин при 95°С в термостатируемой бане (рабочая ЭД{{31} }; Зеельбах, Баден-Вюртемберг, Германия). После охлаждения измеряли оптическую плотность с помощью спектрофотометра, настроенного на длину волны 532 нм. Данные выражены в миллиграммах малонового диальдегида на килограмм мяса. Измерения проводились в двух повторностях как на приготовленной, так и на сырой куриной грудке.
3.7. Извлечение ДНК и подготовка библиотеки NGS
ДНК экстрагировали с использованием набора для выделения ДНК DNeasy PowerSoil (Qiagen, Hilden, Germany). Гранулы гомогената грудки размораживали с помощью 600 мкл лизирующего буфера, входящего в комплект. Клоакальные тампоны вырезали стерильными ножницами, помещали в микропробирку, содержащую 600 мкл лизирующего буфера и 6 мкл 2-меркаптоэтанола (Sigma-Aldrich, Сент-Луис, Миссури, США). Пробирки хорошо перемешивали с помощью вортекса в течение 5 минут и удаляли тампоны. Как для образцов клоаки, так и для гранул грудки было добавлено в общей сложности 100 мг стерильных гранул размером 0,1 мм (BioSpec, Бартлсвилл, Оклахома, США) и была использована бисерная мельница (TissueLyser, Qiagen, Hilden, Германия) для проведения разрушения. шаги высокоскоростного встряхивания (2×30 с при 30 Гц). Всего добавляли 40 мкл протеиназы К (Qiagen, Hilden, Germany) и инкубировали при 56°С в течение 90 мин. После этого шага следовали инструкциям производителя набора для изоляции DNeasy PowerSoil9DNA. Концентрацию и чистоту ДНК анализировали с помощью спектрофотометра (NanoDrop ND -1000, Thermo Scientific, Уолтем, Массачусетс, США).
Для создания библиотеки ДНК 16S использовали двухэтапный подход амплификации. Образцы амплифицировали в реакциях 20-мкл.,каждый состоит из 5 мкл разведенной ДНК,{{0}},4 мкМ каждого праймера (таблица 1), 0,25 мМ дезоксинуклеотида (dNTP), 1× буфер Phusion HF и 1 ед. ДНК-полимеразы Phusion High-Fidelity (New England BioLabs, Inc., Ипсвич , Массачусетс, США). ПЦР проводили в термоциклере 2720 (Applied Biosystems, Фостер-Сити, Калифорния, США) с 25 циклами: 95°С в течение 30 с, 60° или 49°С в течение 30 с, 72°С в течение 45 с. 7 мин при 72 градусах. Для каждого образца проводили три повторения ПЦР.
Продукты очищали с использованием набора SPRIselect Purification Kit (Beckman Coulter Life Sciences, Индианаполис, Индиана, США), и после очистки на гранулах целевую полосу подтверждали с использованием 1,8% агарозного геля. Штрих-коды вводили посредством второго ПЦР-анализа с праймерами, несущими штрих-коды, специфичными для платформы. Каждая 50-мкл реакции ПЦР содержала продукт ПЦР, 0.2 мкМ каждого праймера(Таблица 1),0.3 мМдНТП,1 × буфер Phusion HF,и ДНК-полимераза высокой точности 1UPhusion. Было проведено десять циклов описанного выше профиля ПЦР.
Продукты ПЦР очищали с использованием набора для очистки SPRIselect (Beckman Coulter Life Sciences, Индианаполис, Индиана, США). После окончательной очистки каждый образец был количественно определен с использованием флуорометра Qubit 2.0 (Invitrogen, Life Technologies, Монца, Италия). Качество библиотеки ампликонов проверяли с использованием биоанализатора Agilent 2100 (Agilent Technologies, Пало-Альто, Калифорния, США). Библиотеки секвенировали с использованием платформы Illumina MiSeq с циклом парного конца 300- (Macrogen Inc., Сеул, Корея).
4. Выводы
Обогащение рационов цыплят фенолами, полученными путем фильтрации и концентрирования растительной воды маслобойни в течение 24 дней, не было связано с различиями в росте животных, коэффициенте конверсии корма или выходе туши. Изучение кишечной микробиоты показало значительное влияние времени кормления, но не диеты как таковой, на чередование микробных групп. С другой стороны, состав микробиоты мяса в течение срока годности показал больший рост Pseudomonas в образцах цыплят, потреблявших корма, обогащенные фенолами. Наконец, не наблюдалось различий между рационами в отношении аналитических маркеров (TBAR и конъюгатных диенов) процесса окисления липидов. Вместо этого гидрокситирозол был идентифицирован в мышечной ткани образцов цыплят, которые потребляли корм с добавлением фенолов, демонстрируя дозозависимую кишечную абсорбцию. Поскольку окислительный процесс в основном происходит в мембранной структуре мышечных клеток, необходимы дальнейшие исследования, чтобы лучше понять распределение ГТ в клеточном и внеклеточном компартментах.
Эта статья взята из Molecules 2021, 26, 4307. https://doi.org/10.3390/molecules26144307 https://www.mdpi.com/journal/molecules