Экстракты Cistanche Deserticola могут препятствовать иммунологическому старению и увеличивать продолжительность жизни у мышей, склонных к старению 8 (SAM-P8)
Mar 07, 2022
Пожалуйста свяжитесьoscar.xiao@wecistanche.comЧтобы получить больше информации
Склонные к ускоренному старению 8 подштаммов мышей (SAM-P8), широко признанные в качестве модели животных для изучения старения и антивозрастных препаратов, использовались для изучения эффектов пищевых добавок с экстрактами Cistanche Deserticola (ECD), которые широко использовались в традиционная китайская медицина из-за ее предполагаемой способности стимулировать иммунную функцию у пожилых людей. Восьмимесячных самцов мышей SAM-P8 лечили ECD путем ежедневного перорального введения в течение 4 недель. Результаты показали, что пищевые добавки 150 мг/кг и 450 мг/кг ECD могут увеличить продолжительность жизни, измеренную с помощью анализа выживаемости Каплана-Мейера, в зависимости от дозы. Было показано, что диетическое добавление мышей SAM-P8 в течение 4 недель с 100 500 и 2500 мг / кг ECD приводит к значительному увеличению как наивных Т, так и естественных клеток-киллеров в популяциях клеток крови и селезенки. Напротив, количество Т-клеток периферической памяти и провоспалительного цитокина, ИЛ -6 в сыворотке крови, было значительно снижено у мышей, которые ежедневно принимали 100 и 500 мг/кг ЭЦД. Кроме того, Sca-1 положительные клетки, признанные предшественникипериферийный наивныйТ-клетки восстанавливались параллельно. Наши результаты обеспечивают четкую экспериментальную поддержку длительных клинических обсервационных исследований, показывающих, чтоЦистанхеDeserticola оказывает значительное влияние на увеличение продолжительности жизни и предполагает, что это достигается за счет антагонизмастарение иммунитета.
Пожалуйста, нажмите здесь, чтобы узнать больше
1. Введение
Цистанхепустыня, одно из самых популярных традиционных китайских травяных лекарств / продуктов для здоровья, было описано в ряде исторических китайских травяных фармакопей как обладающее антивозрастными свойствами. Следовательно, он широко используется в Китае для лечения различных возрастных заболеваний, включая старческое слабоумие, импотенцию, бесплодие, хронические инфекции и нарушения кроветворения у пожилых людей [1]. Современные химические подходы позволили выделить два основных типа соединений, фенилэтаноидные гликозиды и олигосахариды, в качестве основных активных ингредиентов цистанхе пустынной [1]. В последнее десятилетие цистанхе пустынная и ее экстракты интенсивно изучались, и было показано, что они способны защищать нейроны от повреждения, вызванного нейротоксинами [2], ингибируя индуцированные четыреххлористым углеродом клетки.гепатотоксичность[2] и способствуя восстановлению клеток костного мозга после радиационного повреждения, вызванного Co60 [3]. Также было показано, что он обладает противовоспалительным, антиоксидантным и омолаживающим действием [4]. Однако вопрос о том, может ли Cistanche Deserticola увеличивать продолжительность жизни и каковы основные молекулярные механизмы [3], связанные с его антивозрастными свойствами, тщательно не тестировался.
Иммуностарение, то есть изменение иммунной системы с возрастом, формирует фон, на котором отмечается повышенная восприимчивость к инфекциям, раку, нейродегенеративным заболеваниям и аутоиммунным заболеваниям в пожилом возрасте [5]. Сообщалось, что терапевтические вмешательства, такие как ограничение калорий [6] и добавление витамина Е, эффективно замедляют прогрессирование иммуностарения и, следовательно, снижают заболеваемость некоторыми возрастными заболеваниями, а также продлевают продолжительность жизни как людей, так и грызунов. [7, 8]. Однако исследования в этой области осложняются тем, что старение связано с парадоксом одновременного иммунодефицита и хронического воспаления [9]. Это означает, что простая стимуляция пролиферации лимфоцитов или противовоспалительное действие не являются идеальными терапевтическими вмешательствами в борьбе со старением и возрастными состояниями [10]. Следовательно, при поиске медицинских вмешательств, способных предотвратить или облегчить возрастные состояния, включая инфекции, рак, аутоиммунные заболевания, атеросклероз и нейродегенеративные заболевания, которые являются ведущими причинами смерти и инвалидности, а также восстановление дефектов иммунной системы должно сопровождаться ингибированием воспалительные реакции. Мышь с ускоренным старением [11] представляет собой инбредную модель мыши, полученную из штамма AKR/J, которая широко используется в исследованиях старения. Сублиния P8 (SAM-P8) этих мышей имеет заметно более короткую продолжительность жизни по сравнению с сублинии R1 (SAM-R1), которая также демонстрирует более медленный процесс старения [12]. Параллельно с их преждевременным старением у мышей SAM-P8 также наблюдается повышенное неврологическое старение, иммунологическое старение и возрастные изменения.кроветворныйдефициты, которые близко имитируют типичные характеристики старения человека [13, 14]. Анализ основных механизмов, ответственных за ускоренный процесс старения и связанные с возрастом расстройства, указывает на то, что, по-видимому, задействованы митохондриальная дисфункция [15], окислительный стресс и повышенная скорость мутаций соматической ДНК [16, 17]. Таким образом, эта мышиная система с ее однородным генетическим фоном представляет собой превосходную экспериментальную модель для изучения терапии старения и антивозрастной терапии [12]. Это исследование было сосредоточено на изучении того, способны ли экстракты цистанхе пустынного увеличить продолжительность жизни мышей SAM-P8 и обратить вспять их статус иммунного старения.

Цистанхе может улучшить иммунитет и снять усталость
2. Материалы и методы
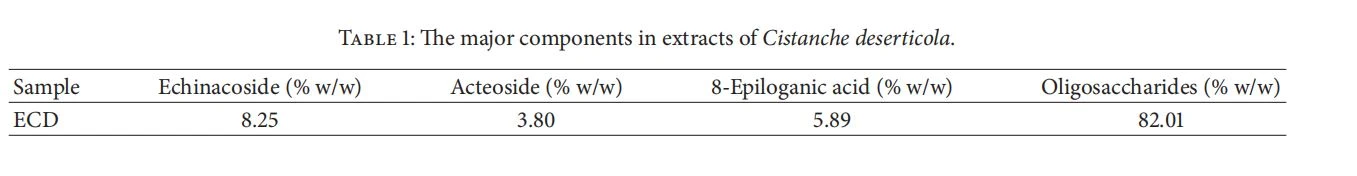
2.1. Материалы. Свежий Cistanche Deserticola YC MA был собран в различных районах на северо-западе Китая, включая автономные районы Синьцзян, Нэймэнгу и Нинся. Образцы, использованные для приготовления экстрактов, были подтверждены профессором Пэнфэй Ту, специалистом по фармакогнозии кафедры натуральных лекарственных средств Школы фармацевтических наук Пекинского университета. Используемый ваучерный образец Cistanche Deserticola (номер CD-2007-03-08) был депонирован в гербарии Школы фармацевтических наук Пекинского университета, Китай. 2.2. Приготовление экстрактов цистанхе пустынного (ECD) и анализ ВЭЖХ. Высушенный на воздухе и нарезанный цистанхе пустынной (2,0 кг) измельчали в порошок и дважды экстрагировали 70% этанолом в течение 1 часа. Используемые соотношения растение/этанол составляли 1/6 (масса/масса) при первой экстракции и 1/4 (масса/масса) во второй. Два экстракта объединяли и фильтровали перед концентрацией до относительной плотности 1,10–1,15 при пониженном давлении при 60°C. Затем этот концентрат сушили в вакууме, и полученный порошок представлял собой экстракт Cistanche Deserticola (ECD), используемого на протяжении всего исследования. Компоненты ЭЗД анализировали с помощью ВЭЖХ, как описано ранее [1]. Вкратце, 100 мг порошка ДЗЭ растворяли в 10,0 мл H2O и после фильтрации вводили в ВЭЖХ. ВЭЖХ-анализ проводили на жидкостной хроматографической системе Agilent 1100 (Agilent Co., США). Подвижная фаза состояла из смеси метанола (А) и 0,10%-ной метановой кислоты (Б). Использовали программу градиентной хроматографии; это было 26,5% (А) и 73,5% (В) за 0–7 мин, 26,5–29,5% (А) и 73,5–70,5% (В) за 8–10 мин и 29,5% (А) и 70,5% (В). ) через 20–27 мин. Скорость потока поддерживали постоянной на уровне 1,0 мл/мин, вводимый объем составлял 10 мл, а температуру колонки поддерживали на уровне 25°С. УФ-детектор, настроенный на 330 нм, использовали для контроля потока из колонки и получения хроматограмм. Фенилэтаноидные гликозиды и олигосахариды идентифицировали по времени их удерживания и спектрам поглощения. Количественную оценку проводили по калибровочным кривым внешнего стандарта. Выход экстрактов цистанхе пустынной (ECD) составил около 3,33%, а содержание фенилэтаноидов - 17,94%. Актеозид и эхинакозид были двумя основными составляющими этой фракции, их содержание составляло 3,80% и 8,25% соответственно. Олигосахариды составляют 82 процента от общего количества ECD. Концентрации основных активных компонентов ЭЗД приведены в таблице 1. 2.3. Анализ продолжительности жизни животных. Самцы мышей SAM-P8 и контрольные мыши SAM-R1 были приобретены в Центре разведения и исследований лабораторных животных Центра медицинских наук Пекинского университета (Пекин, Китай). Это исследование было одобрено Комитетом по исследованию животных Пекинского университета и проводилось в соответствии с рекомендациями по уходу и использованию лабораторных животных Пекинского университета. Сертификационный номер этих мышей был SCXK2001-2008. Мышей содержали в стандартных метаболических клетках в контролируемых условиях окружающей среды (22 ± 2 ∘ C, влажность 45–60 % и 12-часовой цикл свет/темнота) со свободным доступом к пище и воде. Через 2 недели акклиматизации животных разделили на пять групп: 3 группы лечения ECD, контрольную группу SAM-R1 и контрольную группу SAM-P8 без лечения. Рацион 3 лечебных групп был дополнен диетой, смешанной с
разные концентрации ЭЗД: выход низких (5{66}} мг/кг), средних (15{123}} мг/кг) и высоких (45{125}} мг/кг) средних доз ЭЗД повседневная. Контрольные группы SAM-R1 и SAM-P8 без лечения получали ту же диету без ECD. Измерение потребления пищи всеми животными проводили каждые три дня на протяжении всего эксперимента. Мониторинг артериального давления и частоты сердечных сокращений проводился неинвазивно каждые три месяца в течение всего эксперимента для определения состояния здоровья мышей. Регистрировали продолжительность жизни каждой мыши до гибели всех животных. 2.4. Анализ наивных Т-клеток, Т-клеток памяти, NK-клеток и Sca-1-положительных клеток в популяциях клеток периферической крови и селезенки с помощью проточной цитометрии. Восьмимесячные самцы мышей SAM-P8 и контрольные мыши SAM-R1 были разделены на 5 групп: 3 группы лечения ECD мышей SAM-P8, контрольная группа SAM-P8 без лечения и контрольная группа SAM-R1. Рацион 3 экспериментальных групп дополнялся ежедневным введением через зонд ECD в дозах 100 мг/кг, 500 мг/кг или 2500 мг/кг. Через 4 недели лечения животных привязывали на 12 часов, а затем анестезировали раствором пентобарбитала натрия (50 мг/кг, перитонеальная инъекция, внутрибрюшинно), собирали кровь и обрабатывали антикоагулянтом, цитратом натрия (2 мг/мл). ). Лимфоциты крови собирали и анализировали. Затем мышей обтирали 75-процентным спиртом и вскрывали брюшную полость в сверхчистом шкафу (вытяжном шкафу). Селезенки промывали PBS; затем измельчали и фильтровали через клеточный фильтр (70 мкм). Полученную суспензию клеток селезенки промывали и ресуспендировали в среде PRMI 1640 в концентрации 2 × 10⁶/мл. Клетки селезенки от каждой мыши разделяли на аликвоты в 6 пробирок для анализа методом проточной цитометрии. Конечная концентрация суспензии клеток селезенки в каждой пробирке составляла 2 × 10⁵/100 мкл. Лимфоциты периферической крови и лимфоциты селезенки инкубировали отдельно с FITC-CD4, PerceCD3, Perce-CD8a, PC-CD28, PE-CD44, FITC-CD45RB, PE CD49b/pink и FITC-ly-6A/E ( Sca-1) (все приобретены у BD Biosciences, Сан-Диего, Калифорния, США) моноклональные антитела при комнатной температуре в течение 30 мин. Лизирующий раствор, который специально предназначен для лизиса эритроцитов при сохранении лейкоцитов, что исключает клетки, мешающие анализу методом проточной цитометрии, инкубировали с кровью в темноте при комнатной температуре в течение 5 мин. После центрифугирования при 500×g в течение 5 мин супернатант декантировали. Затем осажденные клетки промывали 3 раза PBS, ресуспендировали в охлажденном льдом фосфатно-солевом буфере (PBS, pH 7,4), содержащем 0,01% азида натрия, и подвергали FCM. анализ. Субпопуляции лимфоцитов анализировали с помощью проточной цитометрии с использованием проточного цитометра FACS Calibur (BD Biosciences, Сан-Диего, Калифорния, США) и программного обеспечения для анализа BD CellQuest. 2.5. Оценка клеточной жизнеспособности периферических Т-лимфоцитов с помощью аннексина V-FITC и двойного окрашивания PI и анализа FACS. После добавления в рацион мышей SAM P8 трех доз ECD в течение 4 недель животных привязывали на 12 часов, а затем анестезировали, собирали и анализировали кровь. Жизнеспособные апоптотические и некротические лимфоциты количественно определяли с использованием набора Annexin V-FITC (Beijing Biosea Biotechnology Co., Ltd., Пекин, Китай). Лимфоциты подвергали двойному окрашиванию флуоресцеинизотиоцианатным конъюгатом, меченым аннексином V (аннексин V-FITC) и йодидом пропидия (PI). Вкратце, суспензии лимфоцитов, содержащие примерно 106 клеток/мл, дважды промывали PBS и суспендировали в 200 мкл связывающего буфера (10 мМ HEPES/NaOH, pH 7,4, 140 мМ NaCl, 2,5 мМ CaCl2) и 10 мкл аннексина V-FITC. добавляли к клеточной суспензии. После 15 мин инкубации в темноте при комнатной температуре добавляли еще 300 мкл буфера для связывания и 5 мкл ИП. Сразу же после дополнительных 5 минут инкубации в темноте образцы дважды окрашенных лимфоцитов анализировали с использованием проточного цитометра FACS Calibur (BD Biosciences, Сан-Диего, Калифорния, США). 2.6. Определение цитокинов плазмы с помощью иммуноанализа на цитометрической матрице шариков (CBA). Уровни цитокинов в плазме количественно определяли с использованием набора для анализа цитометрических шариков (CBA) (BD Biosciences, Сан-Диего, Калифорния, США), способного одновременно обнаруживать IFN-𝛾, TNF-𝛼, IL-6, IL{{96 }}, IL-10, GM-CSF и IL-3 в одном образце. Таким образом, этот мультиплексный иммуноанализ позволил обнаружить иммуностимулирующие цитокины (ИЛ-2), провоспалительные цитокины (ИФН-𝛾, ФНО-𝛼 и ИЛ-6), воспалительные ингибирующие цитокины (ИЛ{{105}). }}) и гемопоэтические цитокины (IL-3 и GM-CSF). Вкратце, 50 мкл плазмы смешивали с 50 мкл PE-конъюгированных гранул для захвата цитокинов, которые были покрыты захватывающими антителами, специфичными для IFN-𝛾, TNF-𝛼, IL-6, IL-2, IL белки -10, GM-CSF и IL-3. После 2 часов инкубации при комнатной температуре образцы промывали ледяным фосфатно-солевым буфером (PBS, pH 7,4), содержащим 0,01% азида натрия, затем фиксировали в 0,5 мл 1% параформальдегида в PBS и хранили при 4°C в темноту до анализа, а затем анализировали с помощью проточного цитометра FACS Calibur (BD Biosciences, Сан-Диего, Калифорния, США). 2.7. Статистический анализ. Данные представлены в виде средних значений ± стандартное отклонение. Сравнения между различными группами были выполнены с помощью однофакторного ANOVA с апостериорным тестом. В исследовании продолжительности жизни данные подвергались анализу выживаемости Каплана-Мейера, который включал использование как критерия логарифмического ранга (Мантела-Кокса), так и теста Гехана-Бреслоу Вилкоксона. Статистический анализ проводился с использованием статистического пакета для социальных наук для Windows (SPSS, Чикаго, Иллинойс), и значение 𝑃 менее 0,05 считалось значимым.

3. Результаты
3.1. Анализ потенциальных активных компонентов в экстрактах цистанхе пустынной (ECD). Как показано в таблице 1, ECD состоит в основном из двух типов соединений: фенилэтаноидных гликозидов и олигосахаридов. В фенилэтаноидных гликозидах были идентифицированы эхинакозид, ацетонид и 8-эпилогановая кислота, тогда как в олигосахаридах был идентифицирован только галактитол.
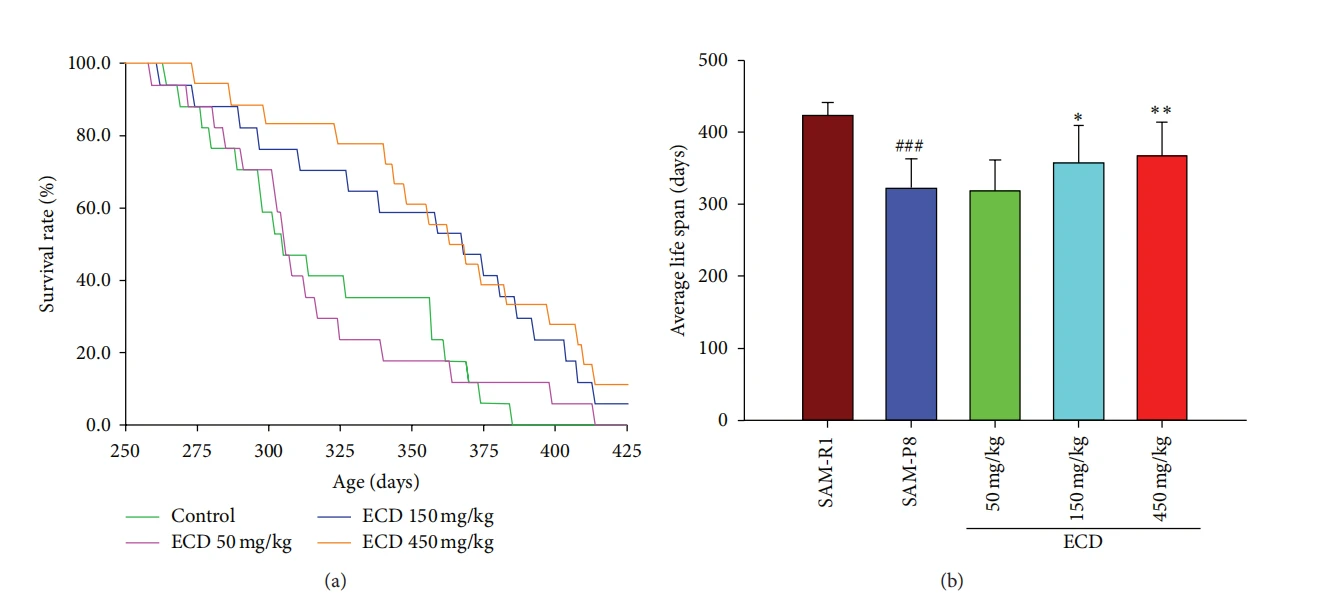
Рисунок 1: Влияние экстрактов цистанхе пустынной (ECD) на продолжительность жизни мышей SAM-P8. Восьмимесячных самцов мышей с ускоренным старением/предрасположенных к старению 8 (SAM-P8) мышей случайным образом разделили на 4 группы (в каждой группе 𝑛 {{10}}): 3 группы лечения и -лечебная контрольная группа. В качестве экспериментального контроля использовали нестареющую сублинию мышей (SAM-R1). Потребление пищи всеми животными контролировали на протяжении всего эксперимента с интервалом в 3-дней. 3 экспериментальные группы получали вволю диеты с добавлением низких (5{35}} мг/кг), средних (15{39}} мг/кг) и высоких (450 мг/кг) доз Cistanche Deserticola. экстракт (ECD). Две контрольные группы животных получали одинаковую диету без добавок ECD. ( а ) Кривые выживаемости Каплана-Мейера мышей SAM-P8, получавших контрольную диету ECD или носитель. Анализ выживаемости Каплана-Мейера проводился с использованием критерия логарифмического ранга (Мантела-Кокса) и теста Гехана-Бреслоу-Уилкоксона. (б) Гистограмма средней продолжительности жизни групп мышей. Столбики погрешностей показывают, что стандартное отклонение от среднего и статистическая значимость были получены с использованием анализа ANOVA с последующим апостериорным 𝑡-тестом. ###𝑃 < 0,001="" sam-p8="" по="" сравнению="" с="" sam-r1;="" ∗∗𝑃=""><0,01 группа,="" получавшая="" высокие="" дозы,="" по="" сравнению="" с="" sam-p8;="" ∗𝑃=""><0,05 группа,="" получавшая="" среднюю="" дозу,="" по="" сравнению="" с="" sam-p8="" (в="" каждой="" группе,="" 𝑛="">

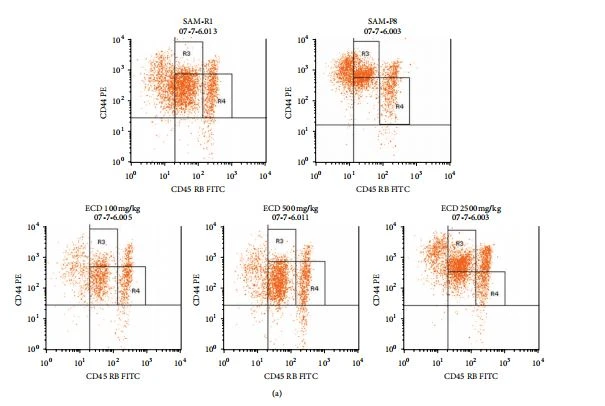
3.2.Влияние экстрактов Cistanche Deserticola на среднюю продолжительность жизни мышей SAM-P8. Для этого и последующих исследований восьмимесячных самцов мышей SAM-P8 разделили на 4 группы. Среди них одна группа мышей получала обычную диету без ЭЦП, а остальные 3 группы получали отдельно рационы, содержащие различные пропорции ЭЦП. В качестве контрольной группы во всех экспериментах использовали мышей сублинии SAM-R1, имеющих нормальный процесс старения и продолжительность жизни. По сравнению с контрольной группой SAM-R1 средняя продолжительность жизни мышей SAM-P8 была значительно сокращена (рис. 1(а); 𝑃 < 0.001).="" хотя="" добавление="" в="" рацион="" низкой="" дозы="" (50="" мг/кг)="" ecd="" не="" привело="" к="" значительному="" увеличению="" продолжительности="" жизни="" мышей="" sam-p8,="" при="" средней="" (150="" мг/кг)="" и="" высокой="" (450="" мг/мл)="" дозе="" доз="" наблюдалось="" дозозависимое="" увеличение="" продолжительности="" жизни="" (рис.="" 1(а)="" и="" 1(б);="" 𝑃="">< 0,05–0,01),="" что="" было="" подтверждено="" анализом="" выживаемости="" каплана-мейера,="" включавшим="" использование="" как="" логарифмического="" ранга="" (="" мантеля-кокса)="" и="" gehan-breslow-wilcoxon.="" 3.3.="" обращение="" иммунного="" старения="" у="" мышей="" sam-p8="" с="" помощью="" экстрактов="" cistanche="" deserticola="" (ecd).="" снижение="" периферических="" наивных="" т-лимфоцитов="" и="" сопутствующее="" увеличение="" периферических="" т-лимфоцитов="" памяти="" являются="" характерными="" признаками="" иммуносенесценции,="" которые="" широко="" рассматриваются="" как="" основные="" причины="" возрастных="" иммунологических="" нарушений.="" это="" иммунное="" старение="" в="" sam-p8="" по="" сравнению="" с="" животными="" sam-r1="" было="" ясно="" видно,="" когда="" анализ="" facs="" использовался="" для="" подсчета="" (cd3="" плюс="" cd44low="" cd45rbhigh)="" лимфоцитов="" в="" качестве="" индикатора="" наивных="" т-клеток="" и="" (cd3="" плюс="" cd44high="" cd45brlow)="" лимфоцитов="" в="" качестве="" индикатора="" t="" памяти.="" клетки.="" таким="" образом,="" как="" в="" периферической="" крови="" (рис.="" 2),="" так="" и="" в="" популяциях="" клеток="" селезенки="" (рис.="" 3)="" у="" мышей="" sam-p8="" наблюдались="" сниженные="" уровни="" наивных="" т-клеток="" и="" повышенные="" уровни="" т-клеток="" памяти.="" было="" обнаружено,="" что="" добавление="" в="" рацион="" мышей="" sam-p8="" с="" ecd="" способно="" обратить="" вспять="" эти="" показатели="" иммуностарения="" дозозависимым="" образом="" как="" в="" популяциях="" периферической="" крови="" (рис.="" 2),="" так="" и="" в="" клетках="" селезенки="" (рис.="" 3).="" в="" качестве="" дополнительного="" индикатора="" обращения="" вспять="" иммунного="" старения="" путем="" добавления="" ecd="" в="" рацион="" был="" проанализирован="" уровень="" естественных="" клеток-киллеров="" [18],="" основного="" клеточного="" маркера="" врожденной="" иммунной="" системы.="" это="" показало,="" что="" добавки="" в="" рацион="" ecd="" приводили="" к="" дозозависимому="" увеличению="" количества="" nk="" (cd3="" плюс="" cd49="" плюс="" )="" клеток="" как="" в="" периферической="" крови="" (рис.="" 4),="" так="" и="" в="" популяциях="" клеток="" селезенки="" (рис.="" 5).="" 3.4.="" экстракты="" цистанхе="" пустынного="" усиливают="" относительную="" интенсивность="" флуоресценции="" sca-1="" положительных="" клеток="" у="" мышей="" sam-p8.="" антиген="" стволовых="" клеток-1="" (sca-1)="" является="" одним="" из="" наиболее="" известных="" биомаркеров="" гемопоэтических="" стволовых="" клеток="" (гск)="" в="" популяциях="" клеток="" костного="" мозга.="" sca-1="" положительные="" клетки="" также="" представляют="" собой="" предшественников="" лимфоцитов,="" недавно="" экспортированных="" из="" костного="" мозга="" в="" периферическую="" кровь,="" где="" они="">
4. Дискуссия
Иммунная защита от новых инвазивных микроорганизмов или эндогенных опухолевых клеток зависит от разнообразия репертуара Т-клеток, который, в свою очередь, зависит от образования и поддержания наивных Т-клеток [19]. Было показано, что в процессе старения разнообразие репертуара Т-клеток резко сокращается из-за прогрессирующего истощения наивных Т-клеток в периферическом резервном пуле. Считается, что именно эта нехватка чувствительных наивных Т-клеток ответственна за восприимчивость пожилых людей к инфекциям, раку и плохим результатам после вакцинации [20]. Различные вмешательства, в том числе ограничение калорий [7], физические упражнения [21] и добавки витамина Е [8], использовались для успешного восполнения наивных Т-клеток и, таким образом, увеличения продолжительности жизни и уменьшения возникновения инфекций и рака среди пожилых людей. В этом исследовании мы продемонстрировали, что ECD способен повышать уровень наивных Т-клеток в периферическом пуле, и наблюдалось сопутствующее увеличение продолжительности жизни и снижение частоты образования опухолей у мышей с ускоренным старением (терапевтическая группа ECD по сравнению с SAM-P8, 0 против 1/6). Таким образом, кажется разумным заключить, что способность ECD обращать вспять возрастное истощение периферических наивных Т-клеток может способствовать его известным эффектам в снижении возрастных заболеваний, которые вытекают из долгосрочных клинических наблюдений.
5. Материалы и методы
5.1. Материалы. При нормальном иммунном ответе после сдерживания и элиминации чужеродного антигена большая часть клонально размноженных Т-клеток подвергается апоптозу, и лишь небольшая их часть остается в виде Т-клеток памяти. Следовательно, по мере старения иммунокомпетентного организма периферические Т-клетки памяти накапливаются в результате пожизненного воздействия чужеродных антигенов, превращая наивные Т-клетки в клетки памяти [22, 23]. Ряд исследований показал, что дефекты апоптоза лимфоцитов у пожилых животных и человека также способствуют увеличению компартмента Т-клеток памяти [24, 25]. Кроме того, недавнее исследование показало, что избыток Т-клеток периферической памяти может ингибировать гомеостатическую пролиферацию наивных Т-клеток [26]. Эти недавние исследования также показали, что Т-клетки памяти могут секретировать высокие уровни провоспалительных цитокинов, которые могут способствовать стойким воспалениям в различных тканях пожилых людей. Следовательно, снижение уровня Т-клеток памяти должно быть полезным как для гомеостатической пролиферации наивных Т-клеток, так и для облегчения избыточного воспалительного состояния, наблюдаемого у старых организмов. В этом исследовании было показано, что пищевые добавки с ECD способны снижать уровень Т-клеток периферической памяти и повышать уровень наивных Т-клеток. Кроме того, добавки ECD увеличивали апоптоз в популяциях периферических лимфоцитов, потенциально освобождая место для новых наивных лимфоцитов. Некроз в периферических лимфоцитах, который в основном индуцируется окислительным стрессом у животных старческого возраста, также подавлялся. Существуют обширные данные, указывающие на то, что старение в организме характеризуется не только иммунодефицитом, но и усилением хронического воспаления [27]. Провоспалительный статус наиболее ярко проявляется в повышенных уровнях провоспалительных цитокинов, в том числе IL-6, TNF-𝛼 и IL-1𝛽, в циркуляции в сочетании с увеличением частоты хронических воспалительных заболеваний, связанных со старением, таких как Болезнь Альцгеймера, болезнь Паркинсона и атеросклероз. Один из наиболее заметных воспалительных цитокинезов IL-6, и его концентрация в плазме увеличивается с возрастом и возрастными заболеваниями [18, 28, 29], а эпидемиологические исследования показывают, что IL-6 является хорошим биомаркером долголетия, поскольку он тесно связана со смертностью в когортах пожилых пациентов [30, 31]. В соответствии с этим ряд терапевтических вмешательств, снижающих концентрацию IL-6, способен облегчать возрастные заболевания [18]. На этом фоне важно, что в этом исследовании пищевые добавки с ECD были способны снижать периферические концентрации IL-6, что подразумевает, что этот эффект может способствовать основным механизмам снижения частоты возрастных заболеваний, которые были получены благодаря длительному использованию ECD в клинической практике. Наряду с изменениями адаптивного иммунного ответа, происходящими с возрастом, по мере старения организма происходят также серьезные изменения врожденного иммунитета. Среди них изменения в естественных клетках-киллерах [18], первой линии клеточных компонентов, обеспечивающих прямой цитотоксический лизис опухолевых клеток и инфицированных вирусом клеток, были обширными, поскольку пожилые люди проявляют повышенную восприимчивость как к развитию опухоли, так и к вирусным инфекциям. 32]. Это исследование показало, что CD3 плюс Ly49 плюс NK-клетки присутствовали на значительно более низких уровнях у старческих мышей SAM P8 по сравнению с контрольными животными SAM-R1, что может быть еще одним основным фактором, объясняющим повышенную восприимчивость пожилых мышей к раку и вирусной инфекции. Таким образом, увеличение уровня NK-клеток, наблюдаемое в этом исследовании после пищевых добавок с ECD, может быть полезным для пожилых организмов с точки зрения повышения устойчивости к развитию опухолей и вирусной инфекции. Однако необходимы дальнейшие исследования для выяснения роли действия ECD на NK-клетки в стареющих организмах. В заключение, это исследование показало, что обработка ECD подштамма мышей, склонных к ускоренному старению, SAM P8, может вызвать значительное обращение вспять возрастных изменений иммунного старения. Дефицит как периферических, так и селезеночных популяций наивных Т-клеток и NK-клеток был уменьшен, в то время как уровни избыточных Т-клеток памяти также были снижены. Кроме того, пищевые добавки с ECD были способны подавлять как некрозы в периферических лимфоцитах, так и уровни провоспалительного цитокина IL-6. Наконец, в дополнение к изменениям в старческой иммунной системе, пищевые добавки ECD значительно увеличили продолжительность жизни старческих мышей SAM-P8.
использованная литература
[1] Ю. Цзян и П.-Ф. Ту, «Анализ химических компонентов видов Cistanche», Journal of Chromatography A, vol. 1216, вып. 11, стр. 1970–1979, 2009.
[2] Q. Xiong, K. Hase, Y. Tezuka, T. Tani, T. Namba и S. Kadota, «Гепатопротекторная активность фенилэтаноидов из Cistanche Deserticola», Planta Medica, vol. 64, нет. 2, стр. 120–125, 1998.
[3] «Иммунология и старение в Европе. Материалы 2-й конференции по фундаментальной биологии и клиническому влиянию иммуностарения. Март 22-26, 2001 г., Кордова, Испания», Experimental Gerontology, vol. 37, нет. 2-3, стр. 183–473, 2002 г.
[4] Г.-Д. Сюань и К.-К. Лю, «Исследование влияния фенилэтаноидных гликозидов (ПЭГ) цистанхе пустынного на замедление старения у старых мышей, вызванное D-галактозой», Журнал китайских медицинских материалов, том. 31, нет. 9, стр. 1385–1388, 2008.
[5] D. Aw, AB Silva и DB Palmer, «Иммунологическое старение: новые проблемы для стареющего населения», Immunology, vol. 120, нет. 4, стр. 435–446, 2007.
[6] М. Ализаде, Х. Пола, А. Ребайн и Г. Павелец, «Долговременная культура моноклональных Т-лимфоцитов человека: модели иммуностарения?» Механизмы старения и развития, том. 83, нет. 3, стр. 171–183, 1995.
[7] Э. Х. Грили, Э. Спицнагель, Д. Ф. Лоулер, Р. Д. Кили и М. Сегре, «Модуляция собачьего иммунологического старения пожизненным ограничением калорий», «Ветеринарная иммунология и иммунопатология», том. 111, стр. 287–299, 2006.
[8] С. Н. Мейдани, С. Н. Хан и Д. Ву, «Витамин Е и иммунный ответ в пожилом возрасте: молекулярные механизмы и клинические последствия», Immunological Reviews, vol. 205, стр. 269–284, 2005.
[9] Дикс С.Г., «ВИЧ-инфекция, воспаление, старение иммунитета и старение», Ежегодный обзор медицины, том. 62, стр. 141–155, 2011.
[10] М. Капри, Д. Монти, С. Сальвиоли и др., «Сложность стратегий борьбы с иммунологическим старением у людей», Искусственные органы, том. 30, нет. 10, стр. 730–742, 2006.