Изоастилбин ингибирует апоптоз нейронов и окислительный стресс в модели Арата с ишемически-реперфузионным повреждением головного мозга: участие SIRT1/3/6
Feb 23, 2022
Для получения дополнительной информации по электронной почтеtina.xiang@wecistanche.com
Абстрактный
Фон.Было показано, что изоастилбин (IAB)антиоксиданти антиапоптотические функции. Недавнее исследование показало, что IAB может уменьшитьокислительныйстресс при болезни Альцгеймера. Однако остается неизвестным, является ли антиоксидантная функция ИАБ защитной и при других заболеваниях головного мозга.
Цели.Исследовать роль и лежащие в основе механизмов ВАБ при реперфузии окклюзии средней мозговой артерии (MCAO/R) у крыс.
Материалы и методы.Самцов крыс Wistar случайным образом разделили на 5 групп: группу имитации, группу MCAO/R и 3 группы MCAO/R, которым вводили IAB (20 мг/кг, 40 мг/кг или 80 мг/кг) один раз в день в течение 3 дней. Размер инфаркта, модифицированная шкала неврологической тяжести (mNSS),окислительныйстрессмаркеры и маркеры апоптоза нейронов использовали для анализа функции IAB.
Полученные результаты.По сравнению с группой MCAO/R введение IAB уменьшало размер инфаркта и показатели mNSS у крыс MCAO/R. Изоастилбин также снижал уровень малонового диальдегида (МДА) и повышал активность каталазы (КАТ), супероксиддисмутазы (СОД) и глутатионпероксидазы (ГШ-ПХ). Лечение изоастилбином ослабляло MCAO/R-индуцированную нейрональнуюапоптозпо сравнению с группой MCAO/R, на что указывают результаты опосредованного терминальной дезоксинуклеотидтрансферазой ник-конца X-dUTP (TUNEL) и вестерн-блоттинга. Изоастилбин также обращал вспять индуцированное MCAO/R подавление экспрессии белка SIRT1/3/6.
Выводы.Эти наблюдения позволяют предположить, что IAB защищает отокислительныйстресс и апоптоз нейронов у крыс после церебральной ишемии-реперфузии (И/Р) через активацию SIRT1/3/6, что указывает на то, что ИАБ может быть многообещающим терапевтическим средством при церебральном И/Р повреждении.
Ключевые слова:апоптоз, оксидативный стресс, изоастильбин, очаговое ишемически-реперфузионное повреждение головного мозга
Фон
Ишемический и геморрагический инсульт являются одними из основных причин инвалидности и смерти во всем мире. восстановить кровоснабжение, тромболитическая терапия может увеличить размер инфаркта и усугубить ишемически-реперфузионное (И/Р) повреждение головного мозга.1,4 Поэтому существует острая необходимость в разработке новых препаратов для лечения церебрального И/Р повреждения.
Ишемически-реперфузионное повреждение головного мозга включает сложную патофизиологию, включающую возникновениеокислительныйстресс, апоптоз и истощение аденозинтрифосфата (АТФ), все из которых могут привести к повреждению нейронов.апоптози неврологическая дисфункция.6 В частности, НАДФН-оксидазы генерируют АФК во время повреждения И/Р, что вызываетокислительныйстресс. Этот стресс характеризуется усилением перекисного окисления липидов, снижением активности каталазы (КАТ) и супероксиддисмутазы (СОД), а также снижением уровня глутатиона (GSH).7–11 Высокие уровни АФК иокислительныйстрессв свою очередь, вызовет гибель клеток через митохондриальный путь апоптоза после церебрального И/Р-повреждения.12 Переходные поры митохондриальной проницаемости могут открываться как следствие избыточного накопления АФК, что приводит к снижению митохондриального трансмембранного потенциала и увеличению продукции активаторов каспаз, таких как как цитохром с, что в конечном итоге инициирует каспазный каскад и приводит к гибели клеток.12 Geng et al. предположили, что апоптоз нейрональных клеток, по крайней мере, частично опосредуется путем митохондриального апоптоза при церебральном И/Р повреждении. 13 Следовательно, ингибирование или обращение вспять окислительного стресса и апоптоза нейронов являются многообещающими новыми методами ослабления церебрального И/Р повреждения.
Чтобы изучить механизм, с помощью которого IAB ослабляет повреждения, вызванные I / R, мы сосредоточились на сигнальном каскаде SIRT. Недавние исследования показали защитную роль SIRT1/3/6 при различных заболеваниях, включая дегенерацию нейронов в головном мозге, воспаление кровеносных сосудов и накопление жировых отложений. Действительно, мы обнаружили, что лечение IAB увеличивает уровень экспрессии SIRT во время повреждения I/R, указывая на то, что IAB может защищать от клеточногоапоптозповышая экспрессию SIRT. Взятые вместе, наши результаты показывают, что ВАБ является потенциально полезным методом лечения клинической церебральной И/Р-травмы.
Цели
Наша общая цель состояла в том, чтобы изучить эффекты и лежащие в основе механизмов IAB при травме I / R с использованием модели животных MCAO / R.
материалы и методы
Животные
Самцов крыс Wistar приобретали у Шанхайской компании лабораторных животных (Шанхай, Китай). Крыс в возрасте 60–90 дней с нормальной массой тела (200–250 г) кормили вволю пищей и водой и содержали в постоянной окружающей среде (25 ± 2 градуса, относительная влажность 40 ± 10 процентов и 12-часовой цикл свет/темнота). . С животными обращались в соответствии с рекомендациями по уходу и использованию лабораторных животных Колледжа Цзямусы Хэйлунцзянского университета традиционной китайской медицины, Китай. Институциональный комитет по уходу за животными и их использованию Колледжа Цзямусы Хэйлунцзянского университета китайской медицины одобрил процедуры для животных (утверждение № 20190815).
Установление травмы MCAO/R и лечение ВБК
Токсичность IAB определяли, как описано ранее.15 Изоастилбин (Chengdu Purechem-Standard Co., Ltd., Чэнду, Китай) разбавляли до конечных концентраций 20 мг/кг, 40 мг/кг и 80 мг/кг в фосфате. -буферный раствор (PBS). Животные были рандомизированы на 5 групп: 1. имитация; 2. МКАО/Р; 3. MCAO/R с последующим введением 20 мг/кг IAB; 4. MCAO/R с последующим введением 40 мг/кг IAB; и 5. MCAO/R с последующим введением 80 мг/кг IAB.
Крыс анестезировали с помощью внутрибрюшинной (внутрибрюшинной) инъекции 50 мг/кг пентобарбитала натрия (Sinopharm Chemical Reagent, Пекин, Китай). Для введения MCAO/R мы обнажали сонные артерии, а именно наружную сонную артерию (ECA), правую общую сонную артерию (CCA) и внутреннюю сонную артерию (ICA). ECA и CCA лигировали проксимально. ВСА лигировали с помощью монофиламентной нити 0,285 мм, введенной в просвет ВСА примерно на 18 мм через культю ВСА, чтобы закупорить среднюю мозговую артерию (СМА). ЛазерДопплерографию (USCN KIT INC., Ухань, Китай) использовали для подтверждения того, что кровоток снизился до уровня менее 20 процентов от нормального уровня. Фальшивая группа подверглась той же операции; однако артерии не были перевязаны. После 2 ч окклюзии перевязанные артерии реперфузировали, а затем крысам вводили через зонд IAB (20 мг/кг, 40 мг/кг или 80 мг/кг) или PBS ежедневно в течение 3 дней подряд. Наконец, через 72 ч после MCAO/R оценивали неврологический потенциал крыс.
Оценка объема инфаркта головного мозга крысы
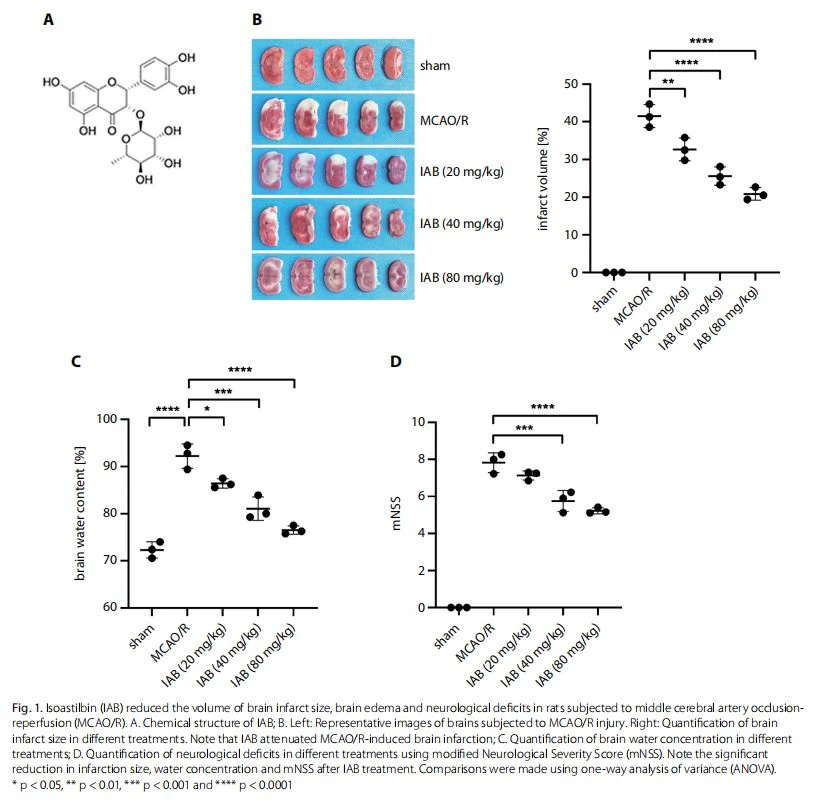
После обработки IAB мозг быстро взвешивали для измерения сырого веса. Затем мозг обезвоживали при 100°С в течение 24 ч для оценки его сухой массы. Концентрацию воды в мозге рассчитывали как ((влажный вес - сухой вес)/влажный вес) × 100 процентов.
Модифицированная шкала неврологической тяжести (mNSS)
Сенсорные, моторные, балансовые и рефлекторные неврологические функции оценивались через 72 ч после операции MCAO с использованием mNSS. нервная система.
Измерение супероксиддисмутазы (SOD), малонового диальдегида (MDA), каталазы (CAT) и глутатионпероксидазы (GSH-PX)
После лечения ИАБ определяли содержание белка в тканях головного мозга. Концентрацию белка в гомогенатах коры определяли с использованием наборов BCA (Beyotime, Шанхай, Китай). SOD, MDA, CAT и GSH-PX определяли с помощью соответствующих наборов (каталожные № A003-1, A001-3, A007 и A005; Nanjing Jiancheng Bioengineering Institute, Нанкин, Китай). Вкратце, собирали супернатант гомогената коры головного мозга. Для СОД образцы инкубировали с рабочим раствором WST-8/фермент при 37°С в течение 30 мин. Поглощение измеряли при длине волны 450 нм. Одна единица ферментативной активности SOD (U) определялась как количество образца, необходимое для достижения 50-процентной степени ингибирования формазанового красителя WST-8. Для МДА образцы смешивали с рабочим раствором и нагревали при 100°С в течение 15 мин. Поглощение супернатанта измеряли при длине волны 532 нм. Для CAT образцы смешивали с буфером для обнаружения CAT и раствором перекиси водорода, а затем инкубировали при 25 градусах в течение 5 минут. Поглощение регистрировали при длине волны 520 нм. Для GSH-PX образцы смешивали с GSH при 37 градусах в течение 5 минут. Поглощение супернатанта измеряли при длине волны 412 нм. Одну единицу (U) ферментативной активности определяли как количество GSH-PX в 1 мг белка, которое катализировало потребление 1 мкмоль/л GSH за вычетом эффекта неферментативной реакции.
Окрашивание терминальной дезоксинуклеотидилтрансферазой dUTP с мечением концов (TUNEL)
Ткани головного мозга ипсилатерального полушария выделяли, фиксировали в 4% параформальдегиде и заливали в парафин. Затем ткани разрезали на срезы размером 5- мкм и подвергали воздействию антигена после 10-минутного микроволнового нагрева в цитратном буфере. Апоптоз нейронов оценивали с помощью анализа TUNEL (набор для обнаружения гибели клеток in situ; Roche, Penzberg, Germany) в соответствии с инструкциями производителя. Вкратце, срезы мозга помещали в ледяной 4-процентный параформальдегид на 30 минут, а затем инкубировали в темноте с реакционной смесью TUNEL при 37 градусах в течение 1 часа. Затем ядра окрашивали 6-диамидино-2-фенилиндолом (DAPI; Sigma-Aldrich). Образцы визуализировали, и индекс апоптоза рассчитывали как количество TUNEL-положительных клеток, деленное на общее количество клеток.
Вестерн-блот
Ткани головного мозга крыс лизировали с использованием буфера для радиоиммунопреципитации (RIPA) (Beyotime, Далянь, Китай). Белки подвергали электрофорезу в полиакриламидном геле с 12–15% додецилсульфатом натрия (SDS-PAGE), а затем переносили на поливинилиденфторидные (PVDF) мембраны (Millipore, Billerica, USA). Мембраны блокировали 5-процентным обезжиренным молоком и инкубировали с первичными антителами при 4 градусах в течение ночи. Затем вторичные антитела, конъюгированные с пероксидазой хрена (HRP), инкубировали при комнатной температуре в течение 2 часов. Специфические сигналы меченых белков регистрировали с помощью хемилюминесцентной системы. -актин использовали для нормализации уровней экспрессии белка Bcl-2, Bax и сиртуина (SIRT1/3/6). Изображения анализировали с помощью программного обеспечения ImageJ.
Статистический анализ
Данные представлены как среднее ± стандартное отклонение (SD) из 3 независимых экспериментов. Было подтверждено, что данные каждой группы соответствуют нормальному распределению с использованием теста Шапиро-Уилка. Различия между группами анализировали с помощью одностороннего дисперсионного анализа (ANOVA) с последующим апостериорным тестом Тьюки с использованием программного обеспечения Prism v. 8 (GraphPad Software, Сан-Диего, США). Значение р< 0.05 indicated="" statistical="" significance.="" a post="" hoc="" power="" analysis="" was="" performed="" using="" g*power="" 3.1.9.7="" software="" (heinrich="" heine="" university,="" düsseldorf,="">
Полученные результаты
Изоастилбин защищает нейроны от повреждений, вызванных MCAO/R
Чтобы выяснить, защищают ли ИАБ нейроны, подвергнутые церебральной И/Р, анализировали концентрацию воды в мозге и объем инфаркта. У контрольных животных инфаркта не было, а концентрация воды была относительно низкой (рис. 1В, С; ложная группа). После операции MCAO/R мы наблюдали значительное увеличение размера инфаркта и концентрации воды (рис. 1Б, С). Инфаркт и ишемический отек указывают на то, что наш подход успешно сгенерировал модель I/R у крыс. Интересно, что при применении различных концентраций ИАБ (20 мг/кг, 40 мг/кг и 80 мг/кг) сразу после травмы наблюдалось дозозависимое восстановление инфаркта и ишемического отека головного мозга (рис. 1Б,В). Этот результат свидетельствует о том, что IAB защищает от повреждения головного мозга, вызванного ишемией. Далее мы рассмотрели ячейкуапоптозс помощью анализа mNSS. Как показано на рис. 1D, у ложнооперированных крыс не было явного неврологического дефицита, тогда как у крыс MCAO/R были значительно повышены показатели mNSS. В соответствии с морфологическими изменениями, показанными на рис. 1B и рис. 1C, лечение IAB значительно снизило показатель mNSS у крыс MCAO/R (рис. 1D). Взятые вместе, эти результаты свидетельствуют о том, что IAB обладает нейропротекторной функцией в модели грызунов Vivo с повреждением головного мозга I / R. Учитывая, что более высокая концентрация IAB давала лучший защитный эффект без явных побочных эффектов, мы использовали 80 мг/кг для следующих экспериментов.
Изоастилбин ослабляет окислительный стресс у крыс MCAO/R
Чтобы оценить влияние IAB наокислительный стресс, уровни GHS-PX, MDA, SOD и CAT оценивали после лечения IAB. Из-за усиления окислительного стресса у крыс, подвергшихся MCAO/R, был более высокий уровень MDA по сравнению с ложными крысами. Этот эффект ослаблялся при лечении ИАБ (рис. 2А). Кроме того, уровни CAT, SOD и GHS-PX снизились у крыс MCAO / R по сравнению с ложными крысами (рис. 2B, D). Лечение IAB повысило уровни CAT, SOD и GHS-PX у крыс MCAO/R (рис. 2B, D), предполагая, что IAB защищал от церебрального I/R повреждения путем ослабления окислительного стресса.
Изоастилбин ингибирует апоптоз нейронов у крыс MCAO/R
Затем мы использовали анализ TUNEL для оценки нейронов.апоптозпосле церебральной И/Р травмы. Как показано на рис. 3А, у крыс MCAO/R наблюдалось увеличение числа TUNEL-позитивных клеток, которое уменьшалось при лечении IAB (рис. 3А). Чтобы изучить основные механизмы защиты от IAB, мы исследовали экспрессию белков апоптоза Bax и Bcl-2 с помощью вестерн-блоттинга. У крыс, подвергшихся MCAO/R, экспрессия Bax (проапоптотический маркер) повышалась, а экспрессия Bcl-2 (антиапоптотический маркер) снижалась по сравнению с фиктивной группой (рис. 3B, C). ). Однако лечение ИАБ предотвратило изменения, вызванные MCAO/R (рис. 3Б, В). Эти результаты свидетельствуют о том, что IAB ингибирует апоптоз нейронов у крыс MCAO/R.
Изоастилбин повышает экспрессию SIRT
Затем мы попытались изучить, как IAB защищает нейроны отокислительный стресс. Было обнаружено, что SIRT, NAD+-зависимая деацетилаза, главным образом локализованная в митохондриях, связана с выживаемостью и апоптозом клеток, клеточным метаболизмом и реакцией на стресс. SIRT может активировать митохондриальные сигналы и пути, чтобы способствовать пролиферации митохондрий и образованию АТФ. Он также участвует в воспалении таким образом, что снижение SIRT приводит к увеличению факторов хронического воспаления, таких как активность NFκB и RelA/p65. стресс в патофизиологии церебральной И/Р-травмы. 21 Здесь мы исследовали экспрессию SIRT1/3/6 в головном мозге у крыс, подвергшихся MCAO/R. Мы обнаружили, что повреждение MCAO/R снижало уровни белка SIRT1/3/6, в то время как лечение IAB ослабляло эти эффекты (рис. 4A-D). Эти данные свидетельствуют о том, что IAB может оказывать защитное действие у крыс MCAO/R, повышая экспрессию SIRT1/3/6 для защиты от окислительного стресса.

Обсуждение
Концентрация АФК возрастает до пика, что потенциально может вызвать апоптоз или некроз клеток.25-28 Существует несколько хорошо известных маркеров окислительного стресса. Например, MDA, цитотоксическое соединение, образующееся в результате перекисного окисления липидов,29 увеличивается в кардиомиоцитах крыс после повреждения I/R.30 Антиоксидантные ферменты SOD, CAT и GHS-PX играют важную роль в удалении супероксидов и предотвращении окислительного повреждения.31, 32 Более того, изменения активности этих ферментов также связаны с окислительным стрессом. Ослабление окислительного стресса является потенциальным способом защиты тканей от И/Р-повреждения.
Недавнее исследование показало, что нейропротекторный эффект IAB может быть связан с модуляцией окислительного стресса. В частности, исследование показало, что IAB ингибирует образование ROS и индуцирует SOD и GSH-PX для улучшения окислительного повреждения в модели AD у мышей. 15 Однако, защищает ли IAB от I/R повреждения головного мозга и каким образом, пока неизвестно. В настоящем исследовании мы продемонстрировали, что ВАБ успешно ослабляет церебральное И/Р повреждение за счет уменьшения объема инфаркта и неврологического дефицита после повреждения MCAO/R. Чтобы проверить, связаны ли эффекты IAB с ослаблением видов ROS, мы измерили несколько маркеров окислительного стресса. Было обнаружено, что лечение изоастилбином после MCAO / R снижает уровни MDA, но увеличивает активность CAT, SOD и GSH-PX. Эти результаты свидетельствуют о том, что основной механизм IAB-опосредованной нейропротекции против I / R повреждения заключается в снижении окислительного стресса.
Действительно, церебральный I/R способен индуцировать апоптоз нейронов.33,34 Активация проапоптотических белков (Bax и Bak) и параллельная инактивация антиапоптотических белков (таких как Bcl-2) происходили во время церебрального И/Р травма. И Bcl-2, и Bax обнаруживаются во внешней части митохондриальной мембраны и участвуют в модуляции клеточного апоптоза.35–37 Предыдущие исследования показали, что сверхэкспрессия Bcl-2 блокирует гибель нейронов in vitro и in vivo.38 Erfani et al. обнаружили, что отношение Bax/Bcl-2 было увеличено во время церебрального повреждения I/R, способствуя апоптозу нейронов. 39 Более того, в мозге мышей, подвергшихся MCAO/R, была обнаружена активация Bax и подавление Bcl-2. 40 Кроме того, было обнаружено, что IAB модулирует уровни экспрессии белка как Bcl-2, так и Bax, чтобы улучшить окислительно-восстановительную систему у мышей с AD, что указывает на антиапоптотическую роль IAB в этом состоянии.15 В настоящее время В исследовании мы показали, что введение IAB снижает апоптоз нейронов, индуцированный I/R, in vivo путем подавления Bax и повышения Bcl-2. Эти данные означают, что нейропротекторная способность IAB зависит от его антиапоптотической активности у крыс. Однако И/Р может также приводить к некрозу, который не опосредуется окислительным стрессом.25-28 Представляет большой интерес изучить, может ли ИАБ также действовать путем ингибирования некроза для ослабления И/Р повреждения.

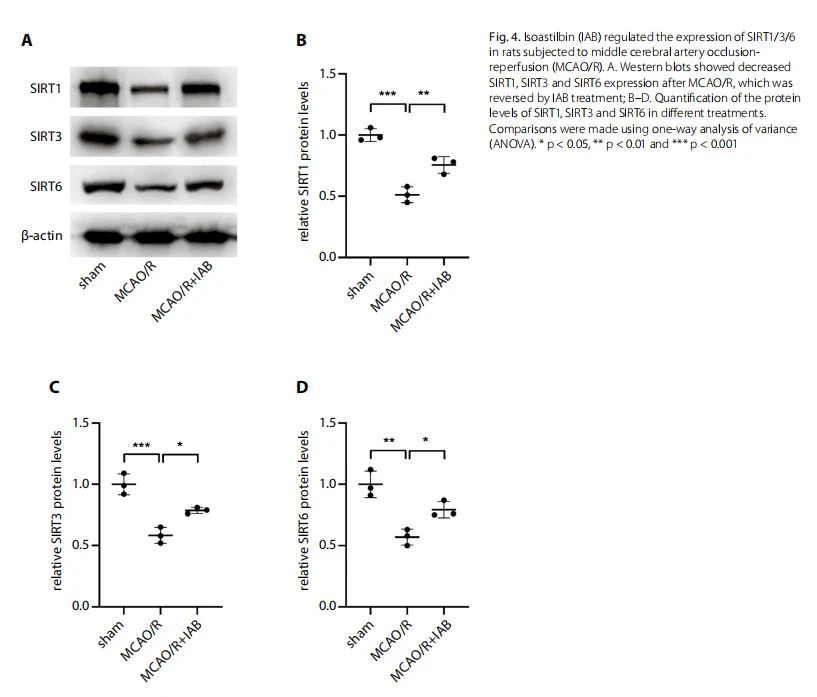
Чтобы изучить механизм, с помощью которого IAB ослабляет окислительный стресс, мы сосредоточились на белках SIRT. В предыдущем отчете было обнаружено, что сверхэкспрессия SIRT3 ингибирует деление митохондрий для защиты от церебрального повреждения I/R. Более того, SIRT6 может защищать мозг от повреждения I/R посредством подавления окислительного стресса. Здесь мы обнаружили, что SIRT1/3/ 6 был значительно снижен у крыс MCAO/R, тогда как введение IAB увеличивало экспрессию SIRT1/3/6. Насколько нам известно, это исследование является первым, демонстрирующим, что IAB может увеличивать экспрессию белка SIRT1/3/6 для ослабления окислительного стресса и апоптоза нейронов, вызванных церебральным I/R повреждением.
Ограничения
Существует множество различных защитных путей против окислительного стресса. Здесь мы продемонстрировали, что сигнальный механизм защиты IAB осуществляется через SIRT 1/3/6. Тем не менее, другие механизмы против окислительного стресса или церебрального И/Р-повреждения требуют дальнейшего изучения. Во время I / R повреждения участвуют как апоптоз, так и некроз; однако мы сосредоточились только на апоптозе. Таким образом, необходимы дальнейшие исследования роли ВАБ в некрозе, чтобы полностью объяснить защитную функцию ВБК при И/Р-повреждении.
Выводы
Здесь мы продемонстрировали, что IAB может облегчить окислительный стресс и апоптоз нейронов у крыс, подвергшихся церебральному I/R. Более того, антиоксидантный стресс и антиапоптотические функции IAB могут возникать посредством регуляции экспрессии SIRT1/3/6. В совокупности наши данные позволяют предположить, что ВАБ является кандидатом на лечение церебральной И/Р-травмы.
ORCID iDs Lifeng An https://orcid.org/0000-0002-4835-1817 Дандан Чжу https://orcid.org/0000-0001-9119-9956 Синь Чжан https://orcid.org/0000-0002-9496-1691 Цзинвэнь Хуан https://orcid.org/0000-0001-6449-5362 Гуанбао Лу https://orcid.org/0000-0002-2465-8996
Лайфэн Ан1,B,D, Дандан Чжу2,B, Синь Чжан2,C, Цзинвэнь Хуан1,C, Гуанбао Лу1,A,F
1 Колледж Цзямусы, Хэйлунцзянский университет китайской медицины, Китай
2 Аспирантура, Хэйлунцзянский университет китайской медицины, Цзямусы, Китай
А – концепция и дизайн исследования; B – сбор и/или сборка данных; C – анализ и интерпретация данных;
Д – написание статьи; E – критическая доработка статьи; F – окончательное утверждение статьи
использованная литература
1. Rossi DJ, Brady JD, Mohr C. Метаболизм астроцитов и передача сигналов при ишемии головного мозга. Нат Нейроски. 2007;10(11):1377–1386. doi:10.1038/nn2004
2. Ribeiro PW, Cola PC, Gatto AR, et al. Взаимосвязь между дисфагией, оценкой по шкале инсульта Национального института здравоохранения и предикторами пневмонии после ишемического инсульта. J Инсульт Цереброваскулярная дис. 2015 г.; 24(9):2088–2094. doi:10.1016/j.jstrokecerebrovasdis.2015.05.009
3. Hu X, De Silva TM, Chen J, Faraci FM. Церебральное сосудистое заболевание и сосудисто-нервное повреждение при ишемическом инсульте. Цирк рез. 2017;120(3):449–471. doi:10.1161/circresaha.116.308427
4. Табассум Р., Вайбхав К., Шривастава П. и др. Периллиловый спирт улучшает функциональные и гистологические исходы при ишемически-реперфузионном повреждении за счет ослабления окислительного стресса и подавления ЦОГ-2, NOS-2 и NF-κB у крыс с окклюзией средней мозговой артерии. Евр Дж Фармакол. 2015; 747:190–199. doi:10.1016/j.ejphar.2014.09.015
5. Вудрафф ТМ, Тандиил Дж., Танг С.К., Соби К.Г., Тейлор С.М., Арумугам Т.В. Патофизиология, лечение, животные и клеточные модели ишемического инсульта человека. Мол Нейродегенер. 2011;6(1):11. дои: 10.1186/1750- 1326-6-11
6. Gonzalez-Rodriguez PJ, Xiong F, Li Y, Zhou J, Zhang L. Гипоксия плода увеличивает уязвимость гипоксически-ишемического повреждения головного мозга у новорожденных крыс: роль глюкокортикоидных рецепторов. Нейробиол Дис. 2014;65:172–179. doi:10.1016/j.nbd.2014.01.020
7. Родриго Р., Фернандес-Гахардо Р., Гутьеррес Р. и др. Окислительный стресс и патофизиология ишемического инсульта: новые терапевтические возможности. Цели лекарственного лечения нервного расстройства ЦНС. 2013; 12 (5): 698–714. дои: 10.2174/ 1871527311312050015
8. Чжан С., Лин С.Л., Панг Л. и др. Прямая доставка макромолекулярных препаратов в зону церебральной ишемии с помощью нейтрофильных наночастиц. Тераностика. 2017;7(13):3260–3275. doi: 10.7150/thno.19979
9. Калес Т., Людике П., Эндрес М. и др. НАДФН-оксидаза играет центральную роль в повреждении гематоэнцефалического барьера при экспериментальном инсульте. Инсульт. 2007;38(11):3000–3006. дои: 10.1161/strokeaha.107.489765
10. Чен Х., Сонг Ю.С., Чан П.Х. Ингибирование НАДФН-оксидазы оказывает нейропротекторное действие после ишемии-реперфузии. J Cereb Blood Flow Metab. 2009 г.; 29(7):1262–1272. дои: 10.1038/jcbfm.2009.47
11. Капур М., Шарма Н., Сандхир Р., Неру Б. Влияние ингибитора НАДФН-оксидазы апоцинина на ишемически-реперфузионное повреждение гиппокампа в мозге крыс. Биомед Фармаколог. 2018; 97: 458–472. дои: 10.1016 / j. биофа.2017.10.123
12. Ю С., Ван С., Ченг К. и др. Активный компонент полипептидов Achyranthes bidentata обеспечивает нейропротекцию путем ингибирования митохондриально-зависимого пути апоптоза в культивируемых нейронах и в животных моделях церебральной ишемии. ПЛОС Один. 2014; 9(10):e109923. doi:10.1371/journal.pone.0109923
13. Гэн Х.С., Ли Р.П., Ли Ю.Г. и др. 14,15-EET подавляет апоптоз нейронов при ишемии-реперфузии через митохондриальный путь. Neurochem Res.2017;42(10):2841–2849. doi:10.1007/с11064-017-2297-6
14. Du Q, Li L, Jerz G. Очистка астильбина и изоастилбина в экстракте корневища смилакса голого с помощью высокоскоростной противоточной хроматографии. Дж. Хроматогр А. 2005;1077(1):98–101. doi:10.1016/j.chroma. 2005.04.072
15. Yu H, Yuan B, Chu Q, Wang C, Bi H. Защитная роль изоастилбина против болезни Альцгеймера посредством Nrf2-опосредованного антиоксидантного и антиапоптозного действия. Int J Mol Med.2019;43(3):1406–1416. doi:10.3892/ijmm. 2019.4058
16. Zhou X, Xu Q, Li JX, Chen T. Структурная ревизия двух флавоноловых гликозидов из Smilax glabra. Планта Мед. 2009;75(6):654–655. дои: 10. 1055/с-0029-1185360
17. Моримото Дж., Ясухара Т., Камеда М. и др. Электрическая стимуляция повышает миграционную способность трансплантированных стромальных клеток костного мозга в модели ишемического инсульта у грызунов. Cell Physiol Biochem. 2018; 46(1):57–68. дои: 10.1159/000488409
18. Торренс-Мас М., Понс Д.Г., Састре-Серра Дж., Оливер Дж., Рока П. Сайленсинг SIRT3 повышает чувствительность клеток рака молочной железы к цитотоксическому лечению за счет увеличения продукции АФК. Джей Селл Биохим. 2017;118(2):397–406. дои: 10.1002/jcb.25653
19. Нассер Ф., Арндт Дж.Дж., Джонсон С.А., Ибдах Дж.А. Регуляция митохондриального трифункционального белка модулирует неалкогольную жировую болезнь печени у мышей. J липидный рез. 2018;59(6):967–973. doi: 10.1194/jlr.M080952
20. Торренс-Мас М., Эрнандес-Лопес Р., Оливер Дж., Рока П., Састре-Серра Дж. Сайленсинг сиртуином 3 повышает эффективность оксалиплатина за счет ацетилирования MnSOD при раке толстой кишки. J Cell Physiol. 2018;233(8):6067–6076. дои: 10.1002/jcp.26443
21. Эрнандес-Хименес М., Уртадо О., Куартеро М.И. и соавт. Молчаливый информационный регулятор 1 защищает мозг от церебрального ишемического повреждения. Инсульт. 2013;44(8):2333–2337. дои: 10.1161/strokeaha.113.001715
22. Chen GY, Nuñez G. Стерильное воспаление: ощущение и реакция на повреждение. Нат Рев Иммунол. 2010;10(12):826–837. дои: 10.1038/nri2873
23. Eltzschig HK, Eckle T. Ишемия и реперфузия: от механизма до трансляции. Нат Мед. 2011;17(11):1391–1401. дои: 10.1038/nm.2507
24. Дзидзич Т. Системное воспаление как терапевтическая мишень при остром ишемическом инсульте. Эксперт преподобный Neurother.2015;15(5):523–531. дои: 10.1586/ 14737175.2015.1035712
25. Yemisci M, Gursoy-Ozdemir Y, Vural A, Can A, Topalkara K, Dalkara T. Сокращение перицитов, вызванное окислительно-нитратным стрессом, ухудшает капиллярный отток, несмотря на успешное открытие окклюзированной мозговой артерии. Нат Мед. 2009;15(9):1031–1037. дои: 10.1038/nm.2022
26. Чен Х., Йошиока Х., Ким Г.С. и др. Окислительный стресс при ишемическом повреждении головного мозга: механизмы гибели клеток и потенциальные молекулярные мишени для нейропротекции. Антиоксидный окислительно-восстановительный сигнал. 2011;14(8):1505–1517. doi: 10.1089/ars.2010.3576
27. Олмез И., Озюрт Х. Активные формы кислорода и ишемическая цереброваскулярная болезнь. Нейрохим Инт. 2012;60(2):208–212. дои: 10.1016 / j. neuint.2011.11.009
28. Guo J, Cheng C, Chen CS, et al. Сверхэкспрессия фибулина-5 ослабляет ишемию/реперфузию после окклюзии средней мозговой артерии у крыс. Мол Нейробиол. 2016;53(5):3154–3167. doi:10.1007/с12035- 015-9222-2
29. Цян М., Сюй Ю., Лу Ю. и др. Автофлуоресценция белков, модифицированных MDA, в качестве зонда in vitro и in vivo при анализе окислительного стресса. Белковая клетка. 2014;5(6):484–487. doi:10.1007/с13238-014-0052-1
30. Хоу С., Чжао М.М., Шен П.П. и др. Нейропротекторный эффект сальвианоловых кислот против церебральной ишемии/реперфузионного повреждения. Int J Mol Sci. 2016;17(7). дои: 10.3390/ijms17071190
31. Адибхатла Р.М., Хэтчер Дж.Ф. Окисление липидов и перекисное окисление при здоровье и заболеваниях ЦНС: от молекулярных механизмов до терапевтических возможностей. Антиоксидный окислительно-восстановительный сигнал. 2010;12(1):125–169. doi:10.1089/ ars.2009.2668
32. Старонь А., Монкоса Г., Котер-Михалак М. Окислительный стресс в эритроцитах больных ревматоидным артритом. Ревматол Интерн. 2012 г.; 32(2):331–334. doi:10.1007/с00296-010-1611-2
33. Ашджи С., Демирджи С., Ашджи Х., Догуч Д.К., Онаран И. Нейропротекторное действие прегабалина на церебральную ишемию и реперфузию. Balkan Med J. 2016;33(2):221–227. doi:10.5152/balkanmedj.2015.15742
34. Тао Т., Ли К.Л., Ян В.К. и др. Защитные эффекты пропофола против полной церебральной ишемии/реперфузионного повреждения у крыс посредством ингибирования пути фактора, индуцирующего апоптоз. Brain Res.2016; 1644: 9–14. doi:10.1016/j.brainres.2016.05.006
35. Мартину Дж. К., Юле Р. Дж. Митохондрии в апоптозе: члены семейства Bcl-2 и митохондриальная динамика. Ячейка Дев. 2011;21(1):92–101. doi: 10.1016/j.devcel.2011.06.017
36. Борнер С., Эндрюс Д.В. Апоптотическая пора на митохондриях: мы прорываемся или все еще застреваем? Смерть клеток 2014;21(2):187–191. doi: 10.1038/cdd.2013.169
37. Сиддики В.А., Ахад А., Ахсан Х. Тайна семейства BCL2: белки Bcl-2 и апоптоз. Обновление. Арх Токсикол. 2015;89(3):289–317. doi:10.1007/с00204-014-1448-7
38. Мэйс М.Э., Шлэмп К.Л., Никеллс Р.В. BAX к основам: как семейство генов BCL2 контролирует гибель ганглиозных клеток сетчатки. Прога Retin Eye Res. 2017; 57:1–25. doi:10.1016/j.preteyeres.2017.01.002
39. Erfani S, Khaksari M, Oryan S, Shamsaei N, Aboutaleb N, Nikbakht F. Нампт/PBEF/висфатин оказывает нейропротекторное действие против ишемии/реперфузии посредством модуляции соотношения Bax/Bcl-2 и предотвращения каспазы{ {2}} активация. Джей Мол Нейроски. 2015;56(1):237–243. doi:10.1007/с12031-014-0486-1
40. Чен Л., Цао Дж., Цао Д. и др. Защитный эффект дексмедетомидина.
против диабетической гипергликемии, усугубляемой церебральной ишемией/реперфузионным повреждением: исследование in vivo и in vitro, Life Sdi, 2019:235:116553.doi; 10.1016/ilfs.2019116553
41. Чжао Х., Луо И., Чен Л. и др. Sirt3 ингибирует церебральную ишемию-реперфузионное повреждение путем нормализации пути Wnt/-catenin и блокирования деления митохондрий. Шапероны клеточного стресса. 2018;23(5):1079–1092. doi:10.1007/с12192-018-0917-г
42. Zhang W, Wei R, Zhang L, Tan Y, Qian C. Sirtuin 6 защищает мозг от церебральной ишемии/реперфузионного повреждения посредством активации NRF2. Неврология.2017;366:95–104. doi:10.1016/j.neuroscience.2017.09.035