Перестройка метаболизма глюкозы и липидов, индуцированная рецептором, связанным с G-белком
Jul 13, 2023
3. Результаты
3.1. Замалчивание GPR17 в дифференцирующихся OPC значительно изменило экспрессию генов, участвующих в метаболизме липидов и глюкозы
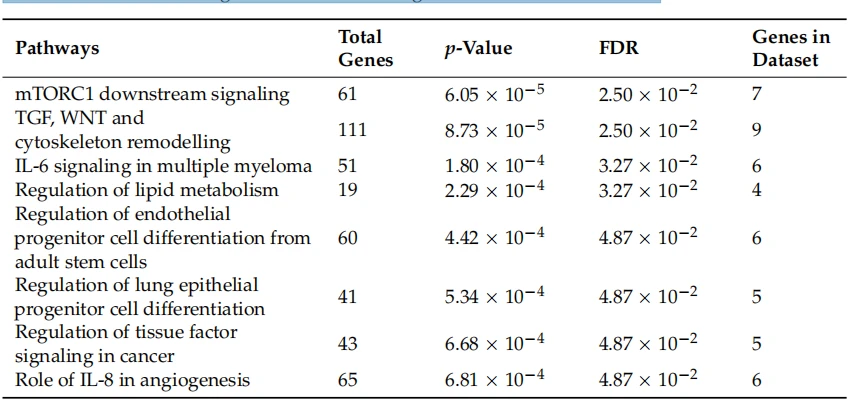
Чтобы выделить биологические процессы, на которые значительно влияет экспрессия GPR17 во время дифференцировки OL, мы препятствовали его экспрессии путем трансфекции крысиных OPC siRNAs пула SMART, специфичных для крысиного GPR17. После подтверждения успешного нокдауна GPR17 с помощью qRT-PCR (рис. S1) мы провели анализ микрочипов 30 584 крысиных транскриптов в GPR17-заглушенных по сравнению с контрольными OPC и проанализировали дифференциально экспрессируемые гены (DEG) с помощью различных биоинформационных инструментов. Во-первых, Meta-Core изучил 640 DEG, чтобы выполнить анализ обогащения пути и определить процессы, которые, по прогнозам, будут значительно затронуты. Этот анализ предполагает изменение передачи сигнала mTOR, связь которого с функцией GPR17 уже была показана [37], и других процессов, которые, как известно, имеют отношение к созреванию OPC, таких как:ремоделирование цитоскелета" и«регуляция липидного обмена" (Таблица 1).
 плюс
Нажмите здесь, чтобы узнать Cistanche для роста костей
Таблица 1. Программное обеспечение MetaCore использовалось для проведения анализа обогащения пути на DEG после подавления GPR17. В таблице показаны наиболее значимые пути, полученные в результате анализа, количество связанных генов и общих генов, включенных в набор данных.
Затем был использован инструмент Ingenuity path analysis (IPA) для сопоставления результатов анализа, который автоматически идентифицирует курируемые наборы данных IPA со значительными сходствами и различиями по сравнению с набором данных запроса. Этот анализ усиливает предсказанную связь между экспрессией GPR17 и метаболизмом липидов, показывая, что изменения экспрессии 38 генов в нашем наборе данных (таблица S1) связаны с измененным синтезом жирных кислот (рисунок 1). Среди них замалчивание GPR17 индуцировало повышенную регуляцию LXR (печеночный Х-рецептор альфа, NR1H3 на рисунке 2 и в таблице S1, ядерный рецептор, отвечающий на оксистеролы) и SREBP1 (белок 1, связывающий регуляторный элемент стерола, SREBF1 на рисунке 1 и в таблице S1), два ключевые игроки в синтезе жирных кислот и холестерина. В нашем наборе данных мы также обнаружили, что несколько измененных генов, в том числе PDH (пируватдегидрогеназа), Ldha (лактатдегидрогеназа альфа) и Pdk1 (пируватдегидрогеназа киназа 1), связаны с метаболизмом глюкозы и циклом Кребса, что предполагает потенциальное участие рецептор GPR17 в регуляции этих метаболических процессов. Согласно этому анализ обогащения на основе генной онтологии (комплект ToppGene) на DEG выявил изменение «метаболического процесса монокарбоновой кислоты» (GO: {{20}}032787, p- значение: 0,02), помимо других процессов, связанных с развитием ЦНС и клеточным метаболизмом, таких как «регуляция развития нервной системы» (GO: 0051960, p-значение: 0,033) и «метаболические процессы сфинголипидов» (GO: 0006665, p-значение : 0,043) (рис. 2; полный список в таблице S2).
В глобальном масштабе эти изменения предполагают, что молчание GPR17 может действовать как триггер для адресации клеток к миелинизации путем настройки нескольких генов, участвующих в транскрипционной регуляции гомеостаза липидов и глюкозы, а также в использовании холестерина и липидов для продукции миелина.

Рисунок 1. Инструмент анализа пути изобретательности (IPA, Qiagen) использовался для анализа набора данных и изучения заболеваний и биологических процессов, которые, по прогнозам, увеличиваются или уменьшаются на основе паттерна дифференциально экспрессируемых генов в наборе данных. Из этого анализа мы экстраполировали схему на рисунке, которая включает гены, связанные с синтезом липидов, дифференциально выраженные в нашем наборе данных (p-значение=9,67 × 10⁻⁴). Полные названия этих генов вместе с относительным изменением кратности (соотношение log2) приведены в таблице S1. Красным отмечены активированные гены; в зеленых, подавленных генах
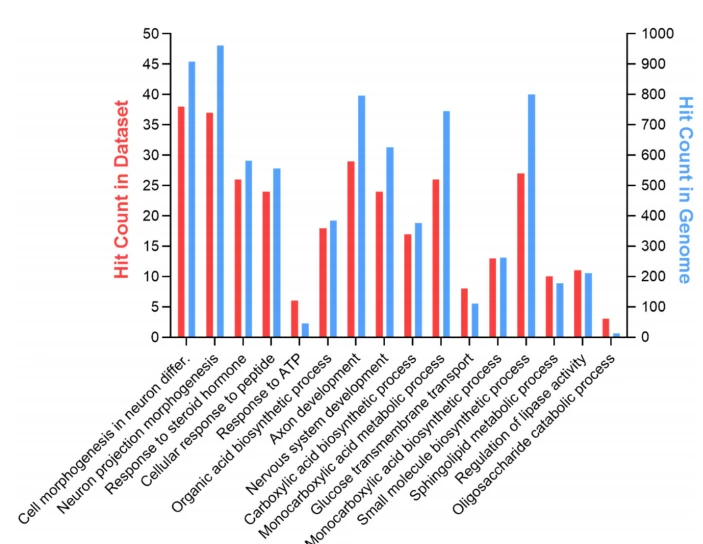
Рисунок 2. Пакет Toppgene использовался для анализа обогащения на основе GO на DEG. На рисунке показаны некоторые из важных биологических процессов, связанных с центральной нервной системой и клеточным метаболизмом, которые потенциально могут быть изменены за счет подавления GPR17. Синие полосы показывают общее количество генов, связанных с каждым термином; красные столбцы указывают гены, общие с нашим набором данных для каждого термина. Полный список биологических процессов, полученных в результате этого анализа, и относительные значения p приведены в таблице S2.

3.2. Метаболомный анализ во время дифференцировки OPC in vitro
Чтобы оценить корреляцию между экспрессией GPR17 и активацией специфических метаболических путей, мы провели метаболомный анализ культивируемых OPC в процессе их физиологического созревания. OPC поддерживали в среде для дифференцировки, а затем лизировали в четыре разных момента времени (после 0, 1, 3 и 5 дней дифференцировки, DID), которые соответствуют различным стадиям созревания OL. Параллельно, чтобы оценить, что во всех экспериментах созревание происходило в ожидаемые сроки, OPC культивировали и окрашивали на GPR17 и MBP. Результаты показали, что количество клеток, экспрессирующих GPR17-, достигло своего максимума через 3 DID, а затем вернулось к исходному уровню через 5 DID, тогда как количество MBP-позитивных клеток прогрессивно увеличивалось во время созревания (рис. 3a), что согласуется с предыдущие результаты [37]. Метаболическую оценку OPC проводили с помощью жидкостной хроматографии-тандемной масс-спектрометрии (ЖХ-МС/МС), как описано ранее [38], уделяя особое внимание энергетическим метаболитам, участвующим в гликолизе, пентозофосфатному пути, циклу Кребса, окислению жирных кислот, их кофакторам. НАДН, НАД плюс, НАДФН, НАДФ плюс, АТФ, АДФ, АМФ, аминокислоты и некоторые их производные. Метаболические профили четырех проанализированных временных точек представлены на рисунке 3b. В день 0 уровни нескольких метаболитов, относящихся к циклу Кребса и/или связанных с ним (например, сукцинат, малат, альфа-кетоглутарат, глутамат, аспартат, аланин и пролин), были выше, как и ожидалось от клеток, поступающих из сильно размножающегося состояния (рис. 3с). На промежуточных стадиях (от DID 1 до 3) OPC показали заметную активацию молекул, участвующих в синтезе жирных кислот и холестерина. Соответственно, мы наблюдали повышенные уровни ацетил-КоА (рис. 3с), который представляет собой предшественник холестерина и жирных кислот, и малонил-КоА, специфического промежуточного продукта синтеза жирных кислот. На DID 5 мы наблюдали повышенные уровни нескольких ацил-карнитинов и аминокислот параллельно со значительным увеличением свободной внутриклеточной глюкозы (рис. 3c). Мы также наблюдали снижение уровней AMP и ADP со дня 0 до DID 5 и временное увеличение АТФ между DID 1 и DID 3. Эти данные показывают, что со дня 0 до DID 3, что соответствует временное окно, в течение которого GPR17 достигает максимальной экспрессии, OPC в основном используют глюкозу и аминокислоты для поддержания биосинтеза холестерина и жирных кислот. На DID 5, как показано повышенным уровнем ацил-карнитина, OPC, вероятно, зависят от утилизации жирных кислот. Вместе эти данные указывают на то, что во время физиологической дифференцировки OPCs прогрессивно перестраивают свой энергетический метаболизм, чтобы стать зрелыми миелинизирующими OL.

3.3. Метаболомный анализ после молчания GPR17 во время созревания OPC In Vitro
Чтобы выявить вклад рецептора GPR17 в управление изменениями энергетического метаболизма, происходящими во время клеточной дифференцировки, мы провели метаболомику OPC с молчанием GPR17- по сравнению с контрольными OPC, получающими скремблированную РНК. Сначала мы изучили влияние молчания GPR17 на созревание OPC с помощью иммунофлуоресцентного окрашивания GPR17 и MBP. Как и ожидалось, после подавления рецепторов мы обнаружили снижение окрашивания GPR17, отчетливо видимое на 3 DID. Мы также наблюдали заметное увеличение количества зрелых MBP-положительных OL как на 3 DID (не показано), так и на 5 DID (рисунок S2). Параллельно был проведен подробный анализ qPCR в пятикратных точках (0, 1, 2, 3 и 5 дни дифференцировки, DID), выявив в контрольных OPC сильное увеличение экспрессии GPR17 после 1 DID, который достигает значительных уровней, начиная с 2 DID, прогрессивного увеличения экспрессии MBP до 5 DID и значительного снижения раннего маркера NG2 (рис. 4а). Напротив, после подавления GPR17 (рис. 4b) мРНК GPR17 достигла более низких уровней при DID1, а затем оставалась стабильно низкой, экспрессия MBP еще больше увеличилась, а NG2 еще больше снизилась. Прямое сравнение экспрессии NG2 и MBP в GPR17-заглушенных по сравнению с контрольными OPC в каждый момент времени показано на рисунке 4c. Взятые вместе, эти результаты предполагают, что в этих экспериментальных условиях молчание GPR17 в OPCs ускоряет процесс их дифференцировки. Затем выполняли метаболомику OPC с помощью ЖХ-МС/МС в пять выбранных моментов времени. Сравнение метаболомных данных, полученных от GPR-молчащих и контрольных OPC в каждый момент времени, позволило нам идентифицировать метаболиты, на которые значительно влияет молчание GPR17.
Рисунок 3. (а) На графике показаны изменения процентного содержания клеток GPR17 plus и MBP plus во время дифференцировки. n=3 на группу; односторонний ANOVA с тестом Тьюки. * p < 0.05, ** p < 0.01) (b) Тепловая карта показывает содержание метаболитов в каждом отдельном образце, останавливаясь на 0, 1. , 3 или 5 DID. Содержание анализируемых метаболитов представлено хроматической шкалой от темно-синего (очень низкое содержание) до темно-коричневого (очень высокое содержание). n=4–5 на группу. ( c ) Метаболиты с содержанием, значительно различающимся в зависимости от условий (0, 1, 3 и 5 дней дифференцировки, DID; односторонний ANOVA с критерием LSD Фишера).
При DID 1 (рис. 5а) мы не обнаружили существенных изменений. На DID 2 (рис. 5b) мы обнаружили значительное увеличение некоторых метаболитов цикла Кребса (малата, цитрата фумарата), умеренное увеличение свободного карнитина (CO), ацетил-карнитина (C2), пропионил-карнитина (C3: 0), бутирилкарнитин (C4:0), валерилкарнитин (C5:0), гексадеканоилкарнитин (C16:0 и значительное снижение уровня глюкозы , лактат, креатин и орнитин. Снижение масляной кислоты и креатина и увеличение пропионил-карнитина (C3) также наблюдалось при DID3 (рис. 5c). При DID 5 (рис. 5d) мы по-прежнему обнаруживали увеличение свободного карнитина ( CO), ацетилкарнитин (C2), пропионилкарнитин (C3:0), бутирилкарнитин (C4:{{30}}}), валерилкарнитин (C5:0 )тетрадеканоилкарнитин (C14:0), гексадеканоилкарнитин (C16:0), октадеканоилкарнитинC18:0), октадеценоилкарнитин (C18:1), аналогично тому, что первоначально наблюдалось в более дифференцированных клеток (см. рис. 3), увеличение содержания дигидроксиацетон-3-фосфата/глицеральдегид3-фосфата (DHAP/GAP), фумарата и цитрата и снижение содержания ацетил-КоА, Met-SO, креатина, таурина и карнозин.

Рисунок 4. Влияние молчания GPR17 на созревание OPC. Уровни экспрессии GPR17 (зеленый), NG2синий) и MBP (красный) оценивали с помощью ПЦР в реальном времени во время дифференцировки в контрольных условиях (клетки, трансфицированные скремблированной РНК и после молчания GPR17 (b), и нормализовали относительно экспрессии при T{{ 6}} (установлено на 0). n=6 на каждый момент времени. Однофакторный дисперсионный анализ с тестами множественных сравнений Тьюки (a): ** p < {{10} }.001 VS DID 0-2-3-5, @ p < 0.05 VS DID 3-5; ## p < 0.01 по сравнению с днем 0; SSS p < {{30}}.001 по сравнению с DID{ {21}}; (b): *** p < 0.001 по сравнению с DID 0-2-3-5, @@@ p < 0 .001 по сравнению с днем 0, # p <0,05, ### p <0,001 по сравнению с днем 0.S p <0,05, SS p <0,01, SSS p <0,001 В. DID 5. (C) Экспрессия NG2 и MBP в GPR 17-заглушала OPCs по сравнению с контрольными OPC (установленными на 0) в каждый момент времени. Изменение кратности (FC) регистрируется как LOG,(FC). Один образец t-критерия, * p < 0,05, * p < 0,01, *** p < 0,001 по сравнению с относительным DID в контрольных OPC.
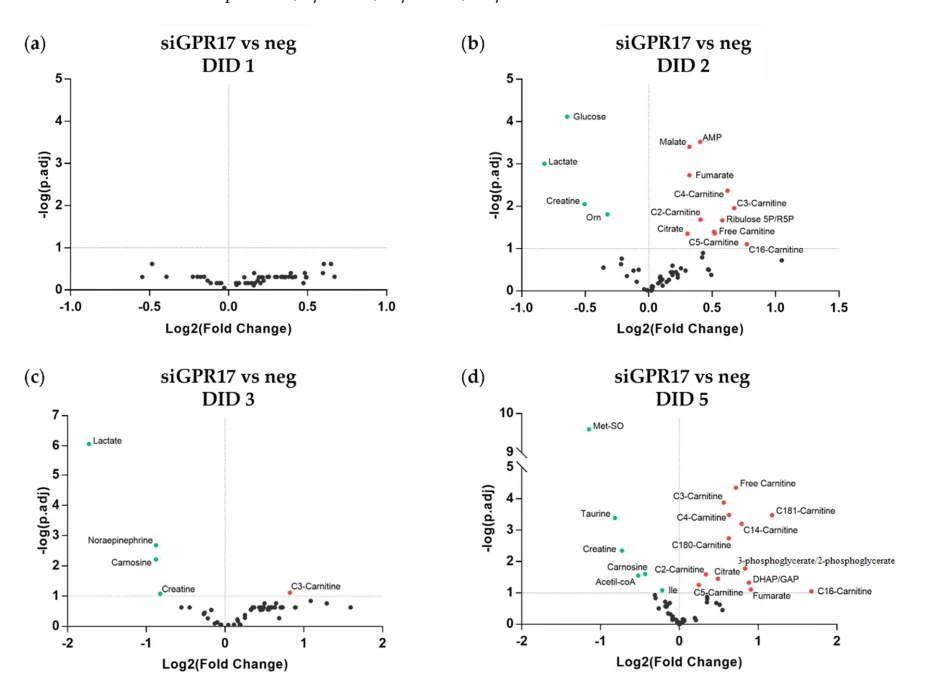
Рисунок 5. Метаболические изменения, вызванные молчанием GPR17 в OPC. ( a–d ) Содержание каждого метаболита после подавления GPR17 было нормализовано к содержанию в относительном контрольном образце. Результирующие изменения кратности использовались для создания графика вулкана для каждой временной точки (1, 2, 3, 5 дней в дифференциации). Точки над пунктирной горизонтальной линией представляют метаболиты, которые показали статистически значимое изменение (LSD Фишера с поправкой на FDR; p.adj < 0.1). Зеленым цветом отмечены метаболиты с более низкой экспрессией, красным — метаболиты с более высокой экспрессией после подавления GPR17. n=7–9 на каждую группу. DID: дни дифференцировки.
3.4. GPR17 модулирует высвобождение лактата во время созревания OPC
Основываясь на результатах метаболомики, описанных выше, было обнаружено, что подавление GPR17 снижает внутриклеточные уровни лактата. Чтобы оценить, отражает ли это снижение общее снижение метаболизма лактата или повышенное высвобождение этого метаболита, мы измеряли его уровни в клеточных лизатах и в соответствующих средах в разные моменты времени. Как показано на рисунке 6, в контрольных условиях внутриклеточный лактат достигал наибольшего количества при DID 2 (рисунок 6a) (когда экспрессия рецептора GPR17 также максимальна), а затем он уменьшался, когда клетки становились зрелыми. Вместо этого, после молчания GPR17, рост внутриклеточного лактата отменялся, и его уровни далее снижались в сторону дифференцировки. Действительно, сравнение уровней лактата в OPC с 17-глушением GPR по сравнению с контрольными OPC в каждый момент времени показало снижение его уровней на DID 2 и 3 (рис. 6b). Внеклеточный лактат следовал разной кинетике, показывая значительное снижение по сравнению с DID 1 при DID 2-3-5 в контрольных условиях, тогда как в OPCs с молчанием GPR 17- он оставался стабильно выше, а затем значительно снижался при DID 5 (рис. 6c). ). Однако при сравнении уровней лактата в разные моменты времени между двумя экспериментальными условиями подавление GPR17 препятствовало физиологическому снижению.увеличение присутствия лактатав среде при DID 2 и 3 (рис. 6d),предлагаю увеличить выпуск.

Рисунок 6. Выключение GPR17 в OPCs изменяет метаболизм лактата. ( а ) Содержание лактата во время созревания OPC в контрольных условиях (зеленая линия) и после подавления GPR17 (оранжевая линия). n=7–9 на группу. Однофакторный ANOVA с тестом множественных сравнений Тьюки. * p < 0.05, ** p < 0.01 по сравнению с DID2 CTL; §§ p < 0.01, §§§ p < {{30}}.001 по сравнению с DID1 siGPR17 (b ) Уровни лактата после подавления GPR17 нормализовали по сравнению с контрольными образцами (установленными на 1) в каждый момент времени (n=7–9). ** р < 0,01; один образец t-критерия. Кондиционированные среды из GPR-молчащих и контрольных OPC были собраны из той же культуры, которая использовалась для метаболомного анализа. Уровни лактата в среде оценивали с помощью ЖХ-МС/МС. ( c ) Обилие лактата во внеклеточном пространстве во время созревания OPC в контрольных условиях (зеленая линия) и после подавления GPR17 (оранжевая линия). Односторонний дисперсионный анализ с тестом множественных сравнений Тьюки. ** p < 0,01, *** p < 0,001 по сравнению с ЦТЛ DID1; § p <0,05 по сравнению с DID5 siGPR17. ( d ) Уровни внеклеточного лактата после подавления GPR17 были нормализованы по сравнению с контрольными образцами (установленными на 1) в каждый момент времени. * р < 0,05; ** р < 0,01; один образец t-критерия. Эффект ингибирования MCT1 в контрольных (например, g) и GPR 17-заглушенных (f, h) OPC оценивали путем анализа экспрессии MBP в образцах, обработанных ингибитором, по сравнению с относительными контролями (обработанными носителем). , на 3 и 5 сутки дифференцировки. n=6 на группу.

Один из механизмов, с помощью которогоOPC могут выделять лактатосуществляется через переносчик монокарбоксилатов МСТ1. Более того, в недавних исследованиях сообщалось, что сами OPC могут приобретать внеклеточный лактат через рецепторы MCT, способствуя их клеточному циклу и дифференцировке [39]. Таким образом, мы задались вопросом, может ли повышенное высвобождение лактата, вызванное молчанием GPR17, быть опосредовано MCT1 и может ли это частично отвечать за эффект, наблюдаемый на созревании OPC в тех же условиях (рис. 4). С этой целью мы обработали OPC AR-C155858, селективным ингибитором MCT1, во время нормальной дифференцировки и после молчания GPR17. Как и ожидалось, высвобождение лактата было успешно ингибировано в обоих условиях (рис. S3). Влияние ингибирования MCT1 на созревание OPC в различных экспериментальных условиях оценивали путем анализа уровней экспрессии MBP. Умеренное снижение экспрессии гена MBP, близкое к статистической значимости (p=0.07), было обнаружено только в образцах, трансфицированных специфичной siRNA для GPR17 (рис. 6e-h); однако в образцах, трансфицированных контрольной РНК (siNEG), не наблюдалось значительных изменений. Эти результаты предполагают, что увеличение внеклеточного лактата, опосредованное подавлением GPR17, способствует созреванию OPC; однако небольшая степень снижения ОБМ указывает на то, что этот метаболит не является единственным фактором, участвующим в этом процессе.
3.5. Липидомный анализ после молчания GPR17 во время созревания OPC
Результаты транскриптомного анализа после молчания GPR17 также выявили потенциальную связь между его функцией и путями синтеза липидов и холестерина, которые являются основными компонентами миелина. Для дальнейшего изучения роли GPR17 в метаболизме липидов мы применили ЖХ-МС/МС к липидомному анализу OPC 17-с молчанием GPR через 2, 3 и 5 дней дифференцировки по сравнению с днем 0. Список проанализированных липидов, относительные изменения кратности и p-значения представлены в таблице S4. Двумя наиболее распространенными классами липидов в экспериментальных группах были жирные кислоты и семейство диацилфосфатидилхолина (PCaa). При дифференциации контрольных ФОС мы не обнаружили каких-либо значимых изменений содержания какого-либо класса липидов. Вместо этого OPCs, заглушенные GPR, показали тенденцию к изменению количества свободных жирных кислот, церамидов, ацил-алкилфосфатидилхолина (PCae) и фосфатидилинозитола (PI) по сравнению с контрольными OPC, особенно при DID 3 и 5, но только диацилфосфатидилэтаноламин (PEaa) и сфингомиелин (SM) показали статистически значимое изменение (рис. 7).

Рисунок 7. Изменения в количестве классов липидов, вызванные молчанием GPR17 во время дифференцировки OPC. Представлено содержание каждого класса липидов в контрольных условиях в разные моменты времени. (а) Была проанализирована кинетика каждого класса липидов после подавления GPR17: (b) жирные кислоты, (C) церамиды (d) LysoPC (лизофосфатидилхолины), (e) LysoPE (лизофосфатидилэтаноламины), (f) PCaa (диацилфосфатидилхолины), (g) PCae (ацил-алкилфосфатидилхолины), (h) PEaa (диацилфосфатидилэтаноламины), (i) PEae (ацил-алкил-фосфатидил-этаноламины), (i) PI (фосфатидилинозитолы), (k) PS (фосфатидил-серины), (DSM (сфингомиелины). n=5 для каждой группы. Кинетика: двусторонняя Дисперсионный анализ с последующим тестом множественных сравнений Тьюки siGPR17: Двусторонний дисперсионный анализ с последующим тестом множественных сравнений Сидака * p.adi < 0.05, ** p.adi < 0,01.

Сравнение липидомных данных, полученных при GPR17-замалчивании и контроле в каждый момент времени, позволило нам идентифицировать липиды, на которые значительно повлияло замалчивание GPR17. После 2 ДИД существенных изменений не обнаружено (данные не показаны). После 3 DID диацилфосфатидилхолин (PCaa) C40:4 был менее распространенным, а диацилфосфатидилэтаноламин PEaa) C34:3 был более распространенным в OPC с 17-глушением GPR (рис. 8a). После 5 дней дифференцировки подавление GPR17 привело к нескольким изменениям в содержании липидов: снижению нескольких диацил-ФХ и диацил-ФЭ и сопутствующему увеличению нескольких плазмалогенов (ацил-алкил-ФХ) вместе с сфингомиелином (СМ) С18:1 и СМ. (ОН) C16:1 (рис. 8b). Эти данные указывают на то, что подавление GPR17 изменяет профиль липидов основного компонента миелина, как PC и PE.
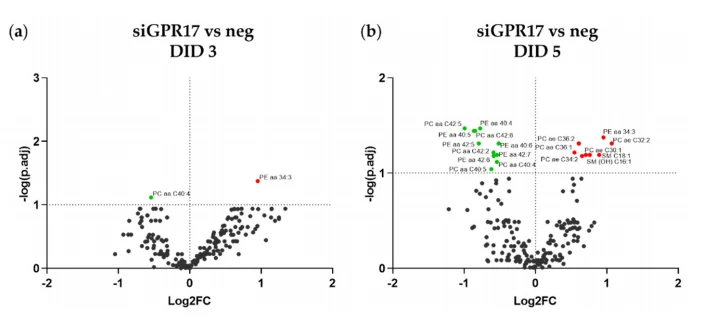
Рисунок 8.Липидомные изменения, вызванные молчанием GPR17 в OPCs. ( а , б ) Содержание каждого липида после подавления GPR17 было нормализовано к содержанию в относительном контрольном образце. Результирующие изменения кратности использовались для создания графика вулкана для каждой временной точки (3, 5 дней в дифференциации). Точки над пунктирной горизонтальной линией представляют метаболиты, которые показали статистически значимое изменение (LSD Фишера с поправкой на FDR; p.adj <0.1). Зеленым цветом обозначены липиды с более низкой экспрессией, красным — липиды с более высокой экспрессией после подавления GPR17. n=5 на группу.
Попросить больше:
Электронная почта: wallence.suen@wecistanche.com
Whatsapp/тел.: плюс 86 15292862950
МАГАЗИН:
https://www.xjcistanche.com/cistanche-shop