Роль микроРНК в заболеваниях почек, связанных с ожирением
Mar 09, 2023
Абстрактный:
Ожирение является серьезной глобальной проблемой здравоохранения и связано со значительным риском снижения функции почек. Нефропатия, связанная с ожирением, как одно из осложнений ожирения характеризуется структурным и функциональным поражением почек и представляет собой одну из важных причин заболеваемости и смертности во всем мире. Несмотря на увеличение количества данных, связывающих гиперлипидемию и липотоксичность с повреждением почек, понимание молекулярных механизмов, ведущих к развитию повреждения почек, недостаточно. МикроРНК (миРНК) представляют собой небольшие некодирующие молекулы РНК, продуцируемые эндогенно, с важной функцией в посттранскрипционной регуляции экспрессии генов. Показано, что микроРНК являются важными регуляторами широкого спектра физиологических и патологических процессов во многих органах, в том числе в почках. В этом обзоре мы представляем обзор микроРНК, уделяя особое внимание их функциональной роли в патогенезе почечных патологий, связанных с ожирением. Мы объясняем новые результаты, касающиеся передачи сигналов, опосредованных миРНК, при нефропатиях, связанных с ожирением, и подчеркиваем преимущества и будущие перспективы терапевтического применения миРНК при почечных заболеваниях.
Прерывать:
Почки — это врожденная основа, корень здоровья и движущая сила жизни. Согласно теории традиционной китайской медицины, пять вкусов соответствуют пяти внутренним органам. Горечь проникает в сердце, сладость — в селезенку, кислая — в печень, острая — в легкие, а соленая — в почки». Соленое соответствует почкам. Соленые продукты и лекарства вызывают рвоту, оказывают слабительное и питательное действие. Например, Cistanche Herba, имеющая то же происхождение, что и лекарство, и пища, сладкая и немного соленая, боли в талии и коленях и слабость, холодные руки и ноги, сухость кишечника и запоры и т. д. Эффективность и роль цистанхе может улучшить функцию почек и защитить почки, например, питая Ян почек.
Щелкните продукт cistanche libido
Ключевые слова:
микроРНК; ожирение; почка; гиперлипидемия; липотоксичность; заболевание почек, связанное с ожирением; воспаление; терапевтические агенты; ренопротекция
1. Введение
Ожирение представляет собой растущую глобальную эпидемию и представляет собой важный фактор риска развития и прогрессирования хронической болезни почек (ХБП). Действительно, частота нефропатий, связанных с ожирением, как одного из осложнений ожирения, возросла в 10-раз за последние несколько лет [1]. Повышенное отложение жира может приводить к системному и хроническому воспалению, изменениям в ренин-ангиотензин-альдостероновой системе (РААС), образованию активных форм кислорода (АФК), а также к гемодинамическим и морфологическим изменениям в почках [2-5]. Все эти взаимообусловленные процессы впоследствии могут привести к ухудшению функции почек и ее прогрессированию в терминальную стадию почечной недостаточности (ТХПН). Несмотря на многочисленные сообщения, связывающие накопление жира и липотоксичность с повреждением почек, основные пути, ответственные за развитие почечной недостаточности, связанной с ожирением, до конца не изучены.
miRNAs представляют собой короткие некодирующие одноцепочечные молекулы РНК, которые играют критическую роль в регуляции экспрессии генов. Сообщалось, что miRNAs участвуют в фундаментальных биологических процессах, таким образом, играя существенную роль в нормальном развитии органов и гомеостазе [6,7]. Более того, микроРНК были идентифицированы как важные игроки в различных патофизиологических состояниях, таких как рак, аутоиммунные заболевания, сердечно-сосудистые и почечные расстройства [8-10]. Благодаря своим уникальным характеристикам, таким как высококонсервативные нуклеотидные последовательности небольшой длины и известный состав, микроРНК представляют собой потенциальную основу для разработки новых методов лечения заболеваний, связанных с микроРНК.
В настоящем обзоре исследуются современные знания о роли миРНК в патогенезе нефропатий, связанных с ожирением, а также о сигнальных мессенджерах, участвующих в опосредованных миРНК реакциях в почках. Мы обобщаем современные данные об использовании микроРНК в качестве мишеней для потенциального терапевтического вмешательства, подчеркивая преимущества и будущие перспективы терапевтического использования этих малых некодирующих молекул РНК при почечных заболеваниях.
2. микроРНК: биогенез и механизм действия.
МикроРНК (миРНК) представляют собой небольшие эндогенные некодирующие одноцепочечные молекулы РНК со средней длиной 22 нуклеотида и высококонсервативными последовательностями у разных видов [11]. Сообщалось, что miRNAs играют критическую роль в регуляции экспрессии генов посредством посттранскрипционного процессинга матричной РНК (мРНК) [12]. Однако также описано их участие в активации или молчании транскрипционных генов [13]. Около 2700 зрелых miRNAs были идентифицированы у людей [14], и накопленные данные указывают на то, что большинство человеческих генов могут регулироваться miRNAs [15]. Одна микроРНК может регулировать около 200 мРНК, участвующих в различных клеточных путях, а также один транскрипт мРНК может одновременно регулироваться разными микроРНК [15,16].
2.1. Биогенез микроРНК
Биогенез микроРНК находится под строгим пространственно-временным контролем, и нарушение регуляции любого этапа их синтеза связано со многими заболеваниями человека. Процесс биогенеза в основном следует каноническому пути с двумя ферментами РНКазами — Drosha и Dicer, играющими важную роль. Однако также было описано существование альтернативных, неканонических путей, которые не зависят от Drosha или Dicer [13]. Имеющиеся данные свидетельствуют о том, что ~1% консервативных микроРНК продуцируется этими альтернативными путями [17], а некоторые из неканонических микроРНК, как сообщается, участвуют в различных заболеваниях человека [13]. В этом разделе обзора мы сосредоточим наше внимание на каноническом пути биогенеза микроРНК.
Формирование микроРНК начинается с транскрипции геномной ДНК в ядре (рис. 1). Процесс катализируется РНК-полимеразой II (RNA Pol II), которая отвечает за образование первичного транскрипта микроРНК (pri-miRNA) с концевой петлей. На следующем этапе pri-миРНК распознается и расщепляется микропроцессорным комплексом, образованным РНКазой III Drosha и кофактором DGCR8 (критическая область синдрома Ди Джорджи 8) с образованием более короткой шпильки, называемой предшественником миРНК (пре-миРНК) [18]. ]. Pre-miRNA экспортируется в цитоплазму с помощью комплекса exportin-5 RanGTP для завершения своего созревания. В цитоплазме пре-миРНК распознается комплексом Dicer-TRBP, состоящим из фермента РНКазы III Dicer и трансактивирующего ответного РНК-связывающего белка, TRBP [17].
Этот комплекс расщепляет концевую петлю пре-миРНК, образуя небольшой дуплекс микроРНК размером около 22 нуклеотидов [18,19], причем одна цепь происходит от 50 (5p), а другая — от 30 (3p) плеча стебля шпильки. . Дуплекс miRNA впоследствии загружается на белок Argonaute 2 (AGO) с образованием комплекса pre-RISC (RNA-induction silence) [17]. Внутри пре-RISC-комплекса дуплекс миРНК будет раскручиваться, и только одна цепь будет функционировать как «направляющая» цепь, ведущая зрелый комплекс RISC к соседней комплементарной последовательности, в основном в 30 -нетранслируемой области (30UTR) мРНК-мишень, которая будет оказывать прямое влияние на трансляцию белка [17]. Оставшаяся «пассажирская» нить дуплекса miRNA будет продуцировать неактивные и менее распространенные miRNAs и впоследствии будет отброшена [17]. Считается, что оба плеча могут продуцировать зрелые микроРНК, но какое из плеч будет выбрано, зависит от различных условий. Этот выбор называется «переключение рук» [20].
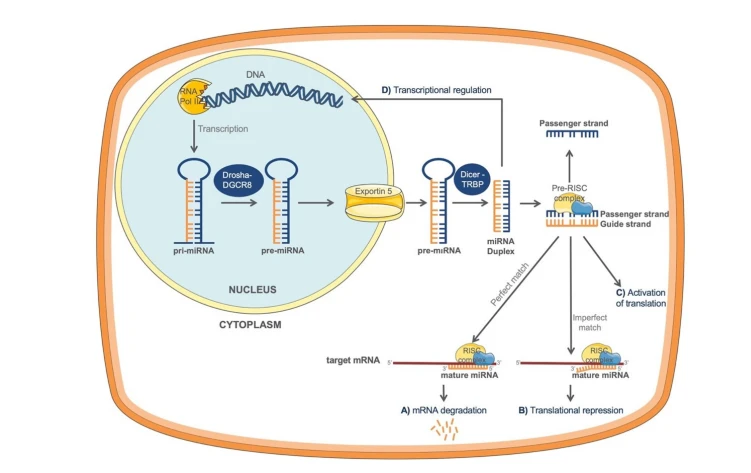
Рисунок 1. Биогенез микроРНК и механизмы посттранскрипционной регуляции генов. В ядре геномная ДНК транскрибируется РНК-полимеразой II с образованием pri-miRNA. pri-miRNA распознается и расщепляется комплексом, состоящим из РНКазы III Drosha и DGCR8, с образованием pre-miRNA. Pre-miRNA экспортируется в цитоплазму с помощью exportin-5 RanGTP и далее расщепляется Dicer-TRBP с образованием дуплекса miRNA. Этот дуплекс загружается в комплекс pre-RISC, где, следовательно, остается только одна цепь («направляющая цепь») для формирования комплекса RISC. Направляющая цепь приведет зрелый комплекс RISC к соседней комплементарной последовательности 30 UTR целевой мРНК. Если miRNA и ее мРНК-мишень полностью совпадают, происходит прямая деградация мРНК (A).
Альтернативно, несовершенное соответствие между miRNA и ее мРНК-мишенью будет приводить к репрессии трансляции и снижению уровня белка гена-мишени (B). В определенных условиях miRNAs могут активировать трансляцию мРНК-мишени (C). miRNAs также могут быть обнаружены в ядре, регулирующем транскрипцию генов (D), либо заставляя молчать, либо активируя гены-мишени через сайты связывания miRNA внутри промоторов генов. DGCR8, кофакторы 8 критической области синдрома Ди Джорджи; TRBP, трансактивирующий ответный РНК-связывающий белок.
2.2. Механизмы микроРНК-опосредованной регуляции экспрессии генов
miRNAs играют важную регуляторную роль во множестве клеточных процессов посредством посттранскрипционной регуляции в цитоплазме [12]. Однако некоторые зрелые микроРНК также были обнаружены в ядре, где они могут играть роль в подавлении или активации транскрипционных генов [12]. Во время посттранскрипционной регуляции базовая комплементарность между микроРНК и ее мРНК-мишенью в основном происходит за счет посевной области микроРНК и комплементарной последовательности 30 -нетранслируемой области (30UTR) мРНК [18]. Затравочная область представляет собой последовательность 6-mer или 7-mer в пределах первых 2–8 или 1–8 оснований 50-го конца микроРНК соответственно, которые могут распознавать мРНК-мишени [21].
Помимо канонической затравочной области, была обнаружена протяженная затравочная область, которая представляет последовательность 6-mer в положениях miRNA 4–10 [21]. Эта последовательность 6-mer частично перекрывается с каноническим начальным числом, и сообщалось, что оба они могут соответствовать своим мишеням с одинаково высокой скоростью [21]. Хотя наиболее описанная комплементарность описана между miRNAs и областью 30UTR мРНК, также наблюдалось связывание miRNAs с 50UTR или кодирующей областью мРНК-мишени [10].
Можно выделить различные механизмы действия микроРНК. С одной стороны, идеальное совпадение между микроРНК и ее мРНК-мишенью 30UTR может привести к прямой деградации мРНК (рис. 1А), а, с другой стороны, неполное совпадение может вызвать репрессию трансляции (рис. 1В) и снижение уровня белка. уровни целевого гена [22]. Интересно, что было описано, что в определенных условиях микроРНК также могут активировать трансляцию мРНК-мишеней (рис. 1С) [23].
Недавние данные свидетельствуют о том, что некоторые miRNAs также могут быть обнаружены в ядре, регулирующие транскрипцию генов (Fig. 1D), либо заставляя замолчать, либо активируя гены-мишени через сайты связывания miRNA внутри промоторов генов [13]. Хотя для понимания локализации микроРНК в ядре необходимы дальнейшие исследования, недавно были предложены различные механизмы, которые могли бы объяснить этот процесс: (а) микроРНК транспортируются обратно в ядро с помощью различных белков или (б) происходят все процессы синтеза определенных микроРНК. внутри ядра [13,24].
Паттерн экспрессии miRNAs может быть клеточно- и тканеспецифичным. miRNAs необходимы для нормального развития и гомеостаза органов, они участвуют в фундаментальных клеточных процессах, таких как пролиферация, дифференцировка, апоптоз и метаболизм [6,7]. Кроме того, miRNAs вовлечены в различные патологические состояния, такие как рак, сердечно-сосудистые заболевания, аутоиммунные заболевания и заболевания почек [8–10].

3. микроРНК в физиологии и заболеваниях почек
miRNAs были обнаружены в эмбриональной и взрослой ткани почек, и было показано, что они играют важную роль в развитии почек и гомеостазе, в то время как их дерегуляция связана с различными заболеваниями почек.
Исследования профилей экспрессии микроРНК показали, что miR-192, miR-194, miR-204, miR-215, miR-216 [25], miR{{6} }a и miR-886 [7] преимущественно экспрессировались в почках по сравнению с другими тканями. Кроме того, микроРНК, такие как let-7ag, miR-10a/b, miR-21, miR-30ae, miR-130, miR{{16} }, miR-196a/b, miR-200a и miR-872 также экспрессируются в почечной ткани [26].
Недавние исследования показали важную роль miRNAs в регуляции развития почек. А именно, было доказано, что Dicer-зависимые микроРНК, такие как miR-17 и 106b [27], необходимы для выживания нефрона [28,29], в то время как условная мутация фермента процессинга pre-miR Dicer1 в развивающемся почечном эпителии или стромы приводили к значительным дефектам нефрогенеза [28]. Несколько линий доказательств указывают на роль различных микроРНК в регуляции гомеостаза и структуры почек [6,30]. Бийкерк и др. [31] продемонстрировали, что miR-132 играет важную роль в регуляции водного баланса организма [31] и солезависимых стационарных уровней ренина [32], таким образом, участвуя в регуляции РААС. РААС необходима для управления почечной солью, сохранения воды и артериального давления [32].
Важно отметить, что изменения в экспрессии микроРНК, как было показано, влияют на компоненты пути РААС [33]. семейство miR-466a/b/c/e регулируется альдостероном (ALDO) и вносит вклад в петлю отрицательной обратной связи, которая снижает долгосрочную передачу сигналов ALDO. Таким образом, семейство miR-466a/b/c/e защищает чувствительные к альдостерону ткани от чрезмерного воздействия ALDO [33] и играет важную роль в гомеостазе почек. Кроме того, miR-6869- 5p также описан как регулятор каскада RAAS [34]. Кроме того, было показано, что miR-181 и miR-663 регулируют экспрессию ренина в юкстагломерулярных клетках [35-37]. miR-200b и miR-717 необходимы для поддержания гомеостаза электролитов [38], тогда как miR-192 регулируют транспорт натрия в почечных эпителиальных клетках [39,40]
Почечный тубулоинтерстициальный фиброз (ТИФ) представляет собой пагубный процесс, характеризующийся разрушением почечной паренхимы [41], и представляет собой ключевой путь прогрессирования ХБП [42]. Многочисленные исследования подтвердили роль микроРНК в почечном фиброзе. Например, было показано, что уровни семейства miR-29a снижаются в почечной ткани, пораженной фиброзом [8,18,43]. Исследование Chau et al. сообщили, что miR-21 активировалась при почечном фиброзе и диабетической нефропатии, в то время как мыши с нокаутом miR-21 демонстрировали меньше поражений почек после односторонней обструкции мочеточника (UUO) или ишемически-реперфузионного повреждения [44]. Несколько других микроРНК, таких как семейство miR-200, miR-214, miR-199, miR-382, miR-133, miR-212 [15] , mir-433 и miR-192 [45], miR-184 [8] и семейство miR-30 [15] также участвуют в этом процессе почечного фиброза и/или тубулярного эпителиально-мезенхимального перехода (ЕМТ), одного из ключевых механизмов патогенеза почечной ТИФ [46,47].
Диабетическая нефропатия (ДН) является известным осложнением диабета 1 и 2 типа, которое может привести к прогрессирующему заболеванию почек. Сообщалось, что в патогенезе ДН участвуют различные микроРНК, такие как семейства miR-21, miR-25 и mir-29, miR-34a{{6 }}p, miR-141, miR-184, miR-370, miR-377, miR-503, let-7 семья, miR{{ [8]. ]. Например, экспрессия miR-192 повышена в клубочках мышей с диабетом [48], тогда как в эпителиальных клетках проксимальных канальцев почек при фиброзе она снижена [49]. В мышиной модели ДН уровень miR-141 снижался в пораженных почках, что впоследствии приводило к увеличению TGF- 1 и развитию почечного фиброза [50]. miR-503 участвует в диабетической эндотелиальной дисфункции [51], и ее избыточная экспрессия также вызывает повреждение клеток подоцитов [52]. Недавние данные сообщили о низких уровнях миР-25 [53] и миР-126 [54] в периферической крови больных сахарным диабетом.
Кроме того, Lv et al. [55] продемонстрировали снижение miR-130b в плазме больных ДН и предложили эту микроРНК в качестве потенциального предиктора ДН [55]. Ван и др. [56] описали заметное снижение miR-424 в почечной ткани, пораженной ДН 1 типа, по сравнению со здоровыми почками, в то время как его активация подавляла апоптоз и уменьшала патологические изменения в почках [56]. Точно так же mir-146a уменьшается в клубочках больных диабетом и участвует в развитии гломерулярного повреждения и ухудшении почечной функции [57]. Кроме того, miR-377 сверхэкспрессируется в мезангиальных клетках мышей во время ДН [58].
Роль микроРНК в развитии и физиологии почек, а также в патологических состояниях почек, таких как почечный TIF, острая почечная недостаточность, ДН, люпус-нефрит, IgA-нефропатия, поликистозная болезнь почек и т. д., уже подробно рассматривалась в других работах [2]. 7,8,59,60]. Поэтому в этом обзоре мы сосредоточим наше внимание на потенциальной роли микроРНК в заболеваниях почек, связанных с ожирением.
4. Болезнь почек, связанная с ожирением
Ожирение представляет собой растущую глобальную эпидемию и серьезную проблему здравоохранения в мире. Из-за быстрых изменений образа жизни распространенность ожирения и осложнений, связанных с ожирением, резко возросла за последние два десятилетия. Было продемонстрировано, что ожирение является независимым фактором риска развития ХБП и ее прогрессирования до терминальной стадии почечной недостаточности [61,62]. Раннее наблюдение в когорте Фрамингемского кардиологического исследования показало связь между высоким индексом массы тела (ИМТ) и более высоким риском ХБП [63]. Ожирение может вызывать морфологические и гемодинамические изменения в почках [64], которые наряду с воспалением почек [65] и окислительным стрессом [4] могут привести к ухудшению функции почек и впоследствии к гломерулосклерозу и почечному TIF [64,66].

4.1. Влияние ожирения на почки
Значительное количество жира в организме обычно хранится в жировой ткани (ЖТ) в виде триглицеридов [67,68]. Являясь активным метаболическим эндокринным органом, AT ощущает изменения системного энергетического баланса и активно участвует в регуляции энергетического гомеостаза [69] посредством аутокринных и/или паракринных регуляторных механизмов [69]. Как только общее депо AT будет превышено, циркулирующие липиды начнут эктопически накапливаться в нежировых тканях, включая почки, способствуя повреждению тканей посредством процесса, известного как липотоксичность [68,70]. Кроме того, аномальная гипертрофия AT будет приводить к изменениям в характере секреции адипоцитокинов, что проявляется в повышении сывороточного лептина, резистина и висфатина, а также в снижении адипонектина [71], что наряду с воспалительными и профибротическими параметрами может привести к почечно-клеточному дисфункции (рис. 2). Возможный механизм, с помощью которого аномальные уровни липидов могут способствовать прогрессированию почечной недостаточности, впервые был объяснен Moorhead et al., предложившим гипотезу нефротоксичности липидов [72]. А именно, в почках есть определенные типы клеток, особенно чувствительные к накоплению липидов, такие как эпителиальные клетки проксимальных канальцев почек (RPTEC), подоциты и мезангиальные клетки [73].
В частности, RPTEC, по-видимому, наиболее чувствительны к липидной перегрузке, потому что проксимальные канальцы почти исключительно используют жир в качестве источника энергии. Действительно, липиды являются важным источником и резервуаром энергии и играют важную роль во внутри- и межклеточной передаче сигналов практически во всех живых клетках. Однако накопление липидов в клетках, которые не обладают адекватным молекулярным механизмом для обработки больших липидных грузов [74,75], таких как собственные почечные клетки, может вызвать повреждение и дисфункцию почек путем активации различных эффекторных механизмов, таких как образование АФК [2]. нарушение ренин-ангиотензин-альдостероновой активности [3], секреции провоспалительных и профибротических факторов [4] и резистентности к инсулину [3] (рис. 2). Эти самовоспроизводящиеся вторичные события впоследствии приводят к прогрессирующему нарушению структуры и функции почек.
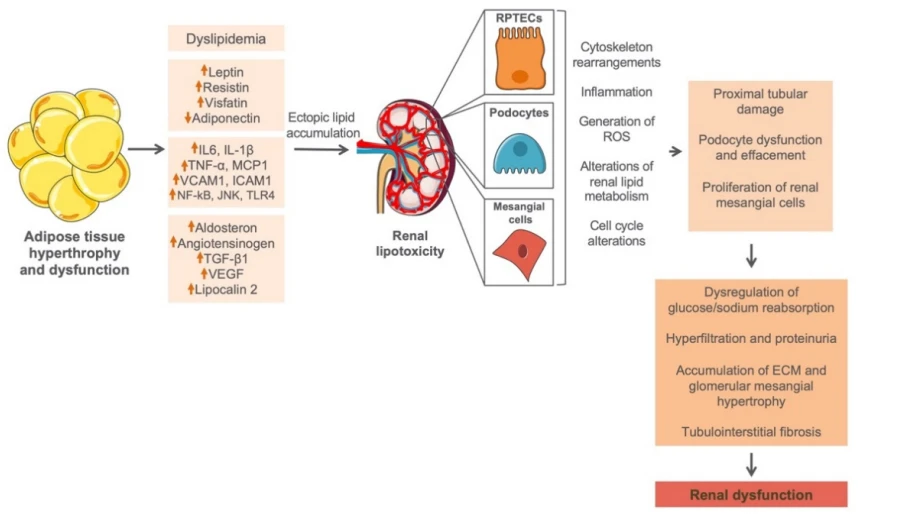
Рисунок 2. Влияние ожирения на нормальную функцию почек. Аномальная гипертрофия жировой ткани при ожирении может приводить к изменениям экспрессии различных адипоцитокинов, воспалительных и профибротических параметров, а также к эктопическому накоплению циркулирующих липидов в почках, способствуя повреждению тканей посредством процесса, известного как липотоксичность. RPTEC, подоциты и мезангиальные клетки не оснащены адекватным механизмом для обработки больших липидных перегрузок; таким образом, накопление липидов в этих клетках будет приводить к клеточной дисфункции, сопровождающейся образованием АФК, нарушением ренин-ангиотензин-альдостероновой активности, секреции провоспалительных и профибротических факторов и резистентностью к инсулину. Эти самовоспроизводящиеся вторичные события могут впоследствии привести к дальнейшему повреждению почечных клеток и прогрессирующему нарушению структуры и функции почек. RPTECs, эпителиальные клетки проксимальных канальцев почек; АФК, активные формы кислорода; ECM, внеклеточный матрикс.
4.2. Характеристики заболеваний почек, связанных с ожирением
Связанное с ожирением заболевание почек характеризуется увеличением массы почек и гипертрофией отдельных нефронов [3,76]. Таким образом, тубулярная и гломерулярная гипертрофия представляет собой два важных структурных изменения нефрона, связанных с ожирением. В частности, у лиц с ожирением наблюдается 3-кратное увеличение размера клубочков и повышенное образование новых клубочковых капилляров [5], возможно, из-за гиперфильтрации клубочков [5]. Увеличение скорости клубочковой фильтрации при ожирении приводит к более высокой фракции фильтрации и перегрузке почечных канальцев, что может стимулировать реабсорбцию натрия и воды в проксимальных канальцах, а затем дальнейшее увеличение клубочковой фильтрации посредством тубулогломерулярной обратной связи [5]. Такие изменения почечной гемодинамики представляют собой наиболее важную патофизиологическую основу повреждения почек, связанного с ожирением.
Большое количество доказательств демонстрирует связь между накоплением липидов в почках и дисфункцией почек на различных животных моделях заболеваний, включая модели ХБП и модели метаболических заболеваний (ожирение, сахарный диабет и метаболический синдром) [64,77–89]. В упомянутых моделях в основном описано повреждение РПТЭК и клубочков из-за избыточного отложения липидов в этих клетках. У людей накопление липидов в почках характерно для нескольких состояний, таких как фокально-сегментарный гломерулосклероз (ФСГС) [90], гипертонический нефросклероз [91], болезнь минимальных изменений (БМИ) [92], болезнь Фабри [93] и липопротеиновая гломерулопатия. [94]. Кроме того, ожирение и накопление липидов в почках имеют важное значение для возникновения и прогрессирования ДН при диабете 2 типа (СД2). Следовательно, ДН при СД2 (СД2ДН) также можно рассматривать как заболевание почек, связанное с ожирением [70].
Несмотря на увеличение количества сообщений, связывающих ожирение и высокую липидную нагрузку с почечной недостаточностью, молекулярный механизм, управляющий развитием почечной дисфункции, до конца не ясен. Таким образом, существует неудовлетворенная потребность в изучении новых потенциальных терапевтических путей для предотвращения и/или обращения вспять пагубных последствий ожирения и аномальных уровней липидов на функцию почек.
5. микроРНК и их функциональная роль в заболеваниях почек, связанных с ожирением.
Многочисленные исследования подтвердили роль микроРНК при различных почечных заболеваниях, однако сведений об их роли в нефропатии, связанной с ожирением, недостаточно. Здесь мы описываем вклад микроРНК в различные аспекты почечной недостаточности, связанной с ожирением. Мы показываем, как микроРНК влияют на инициацию и прогрессирование повреждения почек, связанного с ожирением. Кроме того, везде, где это возможно, мы описываем сигнальные пути, участвующие в реакциях, опосредованных микроРНК, в почках (таблица 1).

miR-155 экспрессируется в различных клетках почек, таких как тубулярные клетки, эндотелиальные и стромальные клетки, и сообщалось, что ее повышенные уровни связаны с различными типами ХБП. Чжэн и др. (2019) продемонстрировали важную роль miR-155 в нефропатии, связанной с ожирением [95]. А именно, авторы обнаружили, что у мышей, получавших диету с высоким содержанием жиров (HFD), наблюдалось заметное увеличение почечной миР-155, что положительно коррелировало со структурными и функциональными повреждениями почек. Более того, обработка эндотелиальных клеток почечных микрососудов пальмитиновой кислотой приводила к увеличению экспрессии miR-155 с последующим липотоксическим повреждением клеток, воспалением и окислительным стрессом. Авторы демонстрируют, что miR-155 непосредственно нацеливается на 3´-UTR SHIP1/INPP5D и подавляет его экспрессию in vitro и in vivo, индуцируя почечный воспалительный ответ через путь NF-kB [95].
Интересно, что специфическое ингибирование miR-155 приводило к подавлению передачи сигналов SHIP1/NF-kB в почках и значительно уменьшало вызванное диетой воспаление, окислительный стресс и почечную дисфункцию [95]. Аналогичные результаты были получены при T2DN, почечном заболевании, характеризующемся ожирением и накоплением липидов в почках. А именно, авторы показали заметное увеличение экспрессии miR-155 в почках человека и крысы, пораженных T2DN [96]. Та же группа описала сходный паттерн экспрессии miR-146a при T2DN [96].
Еще одно доказательство роли микроРНК в нефропатии, связанной с ожирением, — недавняя работа Sun et al. (2019) [97]. А именно, авторы продемонстрировали заметное увеличение экспрессии miR-802 в почках мышей C57BL/6J, получавших HFD, что положительно коррелировало с функциональными параметрами почек мышей с ожирением, такими как уровень мочевины в сыворотке крови и креатинин [97]. Последовательно, пациенты с ожирением демонстрировали более высокие уровни циркулирующих miR-802, чем худощавые, что положительно коррелировало с уровнями креатинина, но отрицательно с клиренсом креатинина.
Интересно, что, используя метод доставки лентивируса с микропузырьками на основе ультразвука для молчания почечной миР-802, авторы подтвердили, что ингибирование миР-802 защищает от воспаления, индуцированного HFD, инфильтрации макрофагами, фиброза и функциональных нарушений. поражение почек. Механически Sun et al. предоставили доказательства прямого связывания miR-802 с 30UTR репрессирующего фактора NF-kB (NRF) и подтвердили, что передача сигналов miR-802/NF-kB/NRF может быть одним из молекулярных механизмов, управляющих прогрессированием нефропатии, связанной с ожирением. Авторы предложили терапевтические преимущества использования ингибиторов miR-802 и предложили miR-802 в качестве потенциального биомаркера почечной дисфункции у пациентов с ожирением [97].
Сан и др. (2016) [98] предположили защитную роль miR-451 при повреждении почек, связанном с ожирением. А именно, авторы показали значительное подавление miR-451 в почках мышей db/db DN с ожирением и мононуклеарных клетках периферической крови (PBMC) пациентов с DN. Соответственно, мезангиальные клетки, обработанные высоким содержанием глюкозы, показали дозозависимое подавление miR-451 [98]. Сан и др. подтвердили, что миР-451 непосредственно нацеливается на 30 -UTR LMP7 и подавляет путь LMP7/NF-kB, регулирующий нижестоящие провоспалительные молекулы в мезангиальных клетках.
Важно отметить, что сверхэкспрессия miR-451 значительно улучшала повреждение клубочков, альбуминурию и экспрессию провоспалительных и профибротических факторов в коре почек мышей db/db с ожирением. Еще одним доказательством роли miR-451 в повреждении почек, вызванном ожирением, является исследование Fluitt et al. (2020) [99]. Авторы использовали инсулинорезистентную модель мышей TallyHo/Jng (TH), которая оказалась невосприимчивой к развитию почечного воспаления, повреждения и фиброза, и оценили роль miR-451 в инициировании нефропатии, вызванной HFD. кормление. Интересно, что длительное системное ингибирование miR-451 приводило к значительной почечной гипертрофии, альбуминурии, повреждению почек, фиброзу и отложению гликогена, а также к нарушению регуляции аутофагии у мышей с ожирением TallyHo/Jng (TH). Более того, эксперименты in vitro подтвердили, что YWHAZ и CAB39 являются прямыми мишенями для miR-451 и подтвердили роль miR-451 в уменьшении повреждения почечных канальцев за счет усиления аутофагии у мышей с ожирением через сигнальный путь mTOR [99]. .
Было обнаружено, что miR-18a-5p заметно подавляется в почках мышей db/db с ожирением и явной почечной гломерулярной дисфункцией и повреждением [100]. Активация miR-18a-5p при лечении ресвератролом у мышей приводила к усилению аутофагии и уменьшению апоптоза в пораженной почке, облегчая повреждение почек у мышей с ожирением. Соответственно, сверхэкспрессия miR-18a-5p в подоцитах подтвердила результаты in vivo, предполагая, что эта miRNA является негативным регулятором апоптоза посредством модуляции аутофагии. Авторы идентифицировали ген мутации Atactic telangiectasis (ATM) как прямую мишень miR-18a-5p и предположили, что эффект этой miRNA на аутофагию и апоптоз может регулироваться посредством нацеливания на ATM.
miR-130b также исследовали в контексте почечной недостаточности, связанной с ожирением. В частности, авторы обнаружили заметное увеличение уровней miR-130b и ускоренную дисфункцию почек у мышей с нокаутом адипонектина (adipoKO), получавших HFD [101]. У мышей AdipoKO, получавших HFD, наблюдались признаки почечной гипертрофии, альбуминурии, накопления липидов и снижения экспрессии нефрина. Авторы предполагают, что повышенная экспрессия miR-130b у мышей adipoKO, получавших HFD, может способствовать накоплению липидов в почках и впоследствии прогрессированию почечной недостаточности при отсутствии ренопротекторного эффекта адипонектина.
miR-21 была одной из широко исследованных патогенных микроРНК при заболеваниях почек, в основном из-за ее профибротических характеристик и участия в сигнальном пути TGF- 1 [110]. Интересно, что Morrison et al. (2017) [102] исследовали участие miR-21 в почечной дисфункции, связанной с ожирением. In vivo у трансгенных мышей HuCRP, получавших HFD на основе сала, развилось ожирение, сопровождающееся альбуминурией, воспалением почек, повреждением и фиброзом. Авторы продемонстрировали, что мыши с ожирением демонстрировали повышенную экспрессию miR-21 в почках по сравнению с мышами, получавшими обычный корм, что значительно коррелировало с экспрессией маркера повреждения почечных канальцев Kim-1 и степенью почечной недостаточности. фиброз. Авторы предлагают PPAR-путь как возможное звено в регуляции уровней miR-21 при нефропатии, индуцированной ожирением [102].
Как указано выше, T2DN также считается заболеванием почек, связанным с ожирением [111], в то время как накопление липидов в почках и метаболические изменения, связанные с ожирением, необходимы для возникновения и прогрессирования T2DN. Одной из животных моделей, часто используемых для изучения патологического прогрессирования диабета 2 типа и его последствий для других органов, является модель грызунов с диетой с высоким содержанием жиров и стрептозотоцином (HFD/STZ).
Таким образом, Чжао и соавт. (2021) [103] описали роль miR-365 в нефропатии, вызванной лечением HFD/STZ у крыс. miR-365 была значительно экспрессирована в пораженной почечной ткани наряду с повышенным уровнем мочевины и креатинина в сыворотке, мочевым альбумином и воспалительными маркерами. Авторы предположили, что miR-365 имеет потенциальный сайт связывания с BDNF и что увеличение количества miR-365 подавляет экспрессию белка BDNF и p-TrkB, тем самым способствуя повреждению почек через сигнальную ось BDNF/TrkB. Подавление экспрессии miR-365 приводило к снижению секреции воспалительных цитокинов и профибротических маркеров в клетках эпителия проксимальных канальцев человека (HK2), обработанных высоким содержанием глюкозы, в то время как повышенная экспрессия BDNF позволяла уменьшать повреждение и дисфункцию почечных клеток [103]. .
Сюэ и др. (2018) [104] продемонстрировали участие miR-34a-5p в T2DN, индуцированном HFD/STZ у мышей, и предложили эту miRNA в качестве многообещающего кандидата для разработки нового терапевтического инструмента для предотвращения / лечить ДН. А именно, miR-34a-5p показал значительную активацию в почечной ткани мышей с диабетом, индуцированным HFD/STZ, и клеток HK2, обработанных высоким содержанием глюкозы, наряду с резким увеличением профибротических маркеров, таких как коллаген, фибронектин и TGF- 1. Авторы предоставляют доказательства того, что miR-34a-5p напрямую нацелены на 30UTR SIRT1 в качестве подлинной мишени, и предлагают miR-34a-5p/SIRT/TGF{{16} } передача сигналов как решающая в тубулоинтерстициальном повреждении во время T2DN [104].
Ли и др. (2019) [105] предположили защитную роль miR-26a-5p при дисфункции почек, вызванной лечением HFD/STZ. Авторы продемонстрировали, что ингибирование miR-26a-5p в клетках HK2 способствует воспалительной реакции в этих клетках, тогда как ее сверхэкспрессия улучшает клеточную дисфункцию. Используя TargetScan и репортерный анализ люциферазы, авторы подтвердили, что miR-26a-5p непосредственно нацелены на 30 -UTR CHAC1 в клетках HK2, в то время как последующие эксперименты с усилением и потерей функции показали, что miR-26a-5p ослабляет воспалительную реакцию в почечных клетках посредством пути CHAC1/NF-kB. Интересно, что та же группа показала, что miR-26a-5p была значительно снижена в экзосомах мочи пациентов с T2DN [105,106].
Shan и коллеги (2016) [107] оценили роль miR-10a в накоплении внеклеточного матрикса в почках при сахарном диабете, индуцированном комбинированным лечением HFD/STZ. Они заметили, что введение как HFD, так и HFD/STZ снижало уровни экспрессии miR-10a в почках мышей. Кроме того, внутривенная инъекция хвоста miR-10a имитирует более высокое отношение альбумина к креатинину в моче (ACR) и обращает вспять повреждение почек, вызванное HFD/STZ, в то время как молчание miR-10a повышало отношение ACR почек у наивных мышей. Интересно, что Shan et al. продемонстрировали, что miR-10a напрямую нацелена на 3 0UTR CREB1, таким образом регулируя продукцию и накопление внеклеточного матрикса и функцию почек при нефропатии, вызванной ожирением. В целом авторы предлагают путь HDAC3/miR-10a/CREB1 в качестве нового возможного сигнального механизма, регулирующего повреждение почек при диабете 2 типа.
Матболи и др. (2017) [108] описали роль miR-133b, miR-342 и miR-30a при нефропатии, вызванной лечением HFD/STZ у крыс. Проанализированные miRNAs были значительно усилены в пораженной почечной ткани наряду с повышенными липидами сыворотки и BUN, клиренсом креатинина и мочевым альбумином. Кроме того, авторы идентифицировали гены аутофагии RB1CC1, MAP1LC3B и ATG-12 как прямые мишени miR-133b, miR-342 и miR-30a соответственно. Авторы предположили, что HFD/STZ активирует миР-133b, миР-342 и миР-30а с последующим подавлением аутофагии в почках, что приводит к почечной дисфункции, возможно, через путь AMPK/PI3K. [108].
miR-214 высоко экспрессируется при заболевании почек человека и животных моделях заболевания почек [112]. Так, Ян и соавт. (2019) обнаружили, что miR-214-3p активируется в почках и сыворотке крыс, получавших комбинированное лечение длительной HFD и краткосрочной инъекцией таурохолина натрия [109]. У крыс развилось повреждение почек и панкреатит с последующим ингибированием экспрессии PTEN и повышением уровня pAkt в почках. Лечение крыс анти-миР-214-3p устраняло воспаление и фиброз почек, а также экспрессию PTEN и pAkt. Авторы предполагают, что путь miR-214- 3p/PTEN/Akt отвечает за повреждение тканей и фиброз в модели крыс HFD/таурохолецистит натрия.
Ли и др. [113] показали сильное нарушение регуляции профиля экспрессии микроРНК как у свиней, так и у людей с ожирением и метаболическим синдромом (MetS). А именно, доставка внеклеточных везикул, продуцируемых мезенхимальными стволовыми клетками жировой ткани, от тучных свиней с метаболическим синдромом к животным с реноваскулярным заболеванием усугубляла старение и почечный фиброз в поврежденных почках [113].

6. МикроРНК как новый терапевтический подход при ХБП: преимущества и перспективы
Учитывая многочисленные доказательства участия микроРНК в патогенезе различных заболеваний, можно предположить, что модуляция микроРНК и их функции может быть использована в качестве терапевтического подхода при различных почечных заболеваниях, включая нефропатии, связанные с ожирением. miRNAs играют важную роль в регуляции генов и обладают способностью влиять на многочисленные генные пути [10]. Благодаря своим специфическим особенностям, таким как высококонсервативная короткая последовательность известного нуклеотидного состава, микроРНК представляют собой новый привлекательный класс мишеней для потенциального терапевтического посредничества [114].
В принципе, мы можем выделить два подхода в разработке терапевтических средств на основе miRNA: (a) ингибирование и (b) восстановление активности/функции miRNA. Специфическую активность miRNA можно заглушить с помощью нескольких методов, которые включают химически модифицированные ингибиторы антисмысловых олигонуклеотидов (ASO) или трансгенное введение тандемных повторов сайта связывания miRNA (известных как технологии Decoy или Sponge) [115-117]. Модифицированные антисмысловые олигонуклеотиды (далее называемые анти-миР) состоят из полной или частично комплементарной обратной последовательности зрелой микроРНК и могут снижать собственные уровни специфической микроРНК. Anti-miR действует как конкурентный ингибитор miRNAs и проявляет свои эффекты после отжига со зрелой направляющей цепью miRNA после того, как РНК-индуцированный комплекс молчания удалил цепь-пассажир [118].
Согласно Rooij и соавт. [119], основными требованиями для успешного и эффективного анти-миР являются (а) клеточно-проницаемый химический состав; б) медленное выведение; (c) стабильность in vivo; (d) высокоспецифичное связывание с интересующей микроРНК [119]. Поэтому до сих пор в этом контексте было сделано несколько модификаций, таких как химические модификации для стабильности и конъюгация с холестерином для лучшего поглощения клетками [116]. Таким образом, некоторыми примерами этих подходов являются ингибирование miR-122 антисмысловыми олигонуклеотидами 2´-O-метоксиэтилфосфотиоата [120], антисмысловыми олигонуклеотидами 20 -O-Me, меченными холестерином (антагомир{{12} }) [116] или олигонуклеотиды, модифицированные антисмысловыми блокировками нуклеиновых кислот (LNA-anti-miR) [121], которые улучшают гиперхолестеринемию на моделях мышей [116, 120, 121]. Более того, системная доставка LNA-anti-miR-122 приводила к длительному снижению общего холестерина плазмы в модели приматов, не являющихся человеком, без каких-либо доказательств токсичности, связанной с LNA, что подтверждает потенциал модифицированных олигонуклеотидов как новых класс терапевтических средств для миРНК, ассоциированных с заболеванием [115].
Другим описанным подходом к ингибированию специфического действия miRNA является экспрессия тандемных повторов сайтов связывания miRNA (Decoy или Sponge) [117,122]. А именно, губки miRNA содержат комплементарные сайты связывания с представляющей интерес miRNA, особенно с ее зародышевой областью. Следовательно, согласно Ebert et al., губки miRNA должны быть способны блокировать целое семейство родственных miRNAs [117]. Чжэн и др. (2019) продемонстрировали, что подавление почечной miR-155 с помощью обработки губкой miR-155 эффективно ослабляло вызванное HFD воспаление почек, липотоксичность, инфильтрацию макрофагов, а также структурные и функциональные повреждения почек, вызванные ожирением у мышей [ 95].
При почечных патологиях, при которых miRNAs подавляется, потенциальным терапевтическим подходом может быть восстановление функции miRNA путем введения miRNA mimic. Миметики микроРНК представляют собой молекулы двухцепочечной РНК, которые могут внутриклеточно отделяться от одноцепочечной РНК. Впоследствии одна цепь загружается в RISC и функционирует как miRNA [114]. Восстановление экспрессии нескольких миРНК, таких как миР146, миР-155, миР-451, миР-10а и миР-18а-5р, с использованием технологии мимикрии РНК значительно уменьшал повреждение и дисфункцию почек в различных моделях почечной недостаточности in vitro и in vivo [96, 98, 100, 107]. Несмотря на значительный прогресс в технологии миметиков микроРНК, все еще есть проблемы, которые необходимо решить, прежде чем использовать миметики микроРНК в клинической практике. Такими проблемами могут быть доставка in vivo, дозировка, иммунный ответ, клеточное поглощение и стабильность in vivo [112].
Нацеливание на микроРНК в почках продолжает оставаться важной проблемой, особенно если мы хотим обойти возможные нежелательные последствия в других тканях и органах, а также эффекты отключения мишени [110]. Несмотря на множество примеров успешной доставки миметиков и ингибиторов в почку с помощью внутривенных и подкожных инъекций [123], аспект нацеливания миРНК в почку или специфические почечные клетки, в то же время избегая токсичности и побочных эффектов в других тканях и/или или активация адаптивного иммунного ответа, все еще остается важным вопросом, который необходимо рассмотреть. Помимо доставки микроРНК и проблем безопасности, еще одним аспектом, который следует учитывать при разработке терапии микроРНК для лечения заболеваний почек, будет клиренс этих молекул. В настоящее время имеются скудные данные исследований на животных, посвященных этому вопросу.
Стабильность микроРНК является важным требованием для терапии на основе микроРНК. Значительный прогресс был достигнут в повышении стабильности РНК in vivo за счет различных молекулярных модификаций остова [114]. В этом контексте разработка технологии закрытых нуклеиновых кислот (LNA) имеет большие перспективы, поскольку LNA-модифицированные олигонуклеотиды (LNA-antimiRs) демонстрируют высокую аффинность связывания с комплементарными РНК-мишенями и высокую стабильность in vivo и in vitro [115,121]. Кроме того, для увеличения сродства к комплементарным нуклеотидам были успешно разработаны и применены модификации 2 0 -O-метоксиэтила (20 -MOE) и 20 -оксиметила (20 -OMe). [116,120].
7. Выводы
Растущее количество доказательств указывает на то, что miRNAs играют первостепенную роль в регуляции генов и могут модулировать множество генных путей. Было продемонстрировано, что микроРНК играют важную роль в регуляции нормального развития и физиологии почек, в то время как их аберрантная экспрессия связана с развитием различных почечных заболеваний. Кроме того, miRNAs стали важными игроками в возникновении и развитии заболеваний, связанных с ожирением, влияя на статус и функции местных почечных клеток, таких как RPTEC, подоциты и мезангиальные клетки, во время накопления почечных липидов.
RPTEC, подоциты и мезангиальные клетки, по-видимому, наиболее чувствительны к накоплению липидов из-за отсутствия молекулярного механизма, необходимого для обработки больших липидных перегрузок. Таким образом, накопление липидов в этих клетках приведет к дисфункции и повреждению клеток, вызывая воспаление, окислительный стресс, нарушение ренин-ангиотензин-альдостероновой активности и резистентность к инсулину. В настоящее время ясно, что высокая липидная нагрузка и липотоксичность в почках модулируют экспрессию различных миРНК, а их почечная экспрессия в значительной степени коррелирует с липотоксическим повреждением клеток, воспалением, окислительным стрессом, а также со структурными и функциональными повреждениями почек.
Благодаря своим уникальным характеристикам микроРНК стали новым привлекательным классом мишеней для возможного терапевтического вмешательства при различных почечных заболеваниях, включая почечную патологию, связанную с ожирением. Прямое нацеливание miRNAs на ингибирование или восстановление их активности/функции может быть многообещающей терапевтической стратегией. Несмотря на то, что на нашем пути к успешному терапевтическому подходу для клинического применения предстоит решить различные проблемы, микроРНК по-прежнему имеют огромные перспективы в разработке терапии нового поколения для различных типов почечных заболеваний.
Вклад автора:
Концептуализация, МБ; обзор литературы, MC, ÀE и MB; написание — оригинальная черновая подготовка, МК, А.Э. и МБ; написание - обзор и редактирование, MC, AE и MB; научные иллюстрации и таблицы, МК и МБ; авторский надзор, МБ; администрирование проекта, МБ; финансирование приобретения, МБ Все авторы прочитали и согласились с опубликованной версией рукописи.

Финансирование:
Это исследование было поддержано исследовательским грантом Мигеля Сервета CP19/00027 от Института Салуда Карлоса III (ISCIII) и фондом FEDER «Una manera de hacer Europa». MB поддерживалось контрактом Мигеля Сервета от ISCIII (CP19/00027). финансируется Fondo Social Europeo «El FSE invierte en tu futuro». MC финансировался RedInRen RETIC. А.Э. был поддержан стипендией PFIS от ISCIII (FI19/00026).
Заявление Институционального контрольного совета:
Непригодный.
Заявление об информированном согласии:
Непригодный.
Заявление о доступности данных:
Непригодный.
Конфликт интересов:
Авторы объявили, что нет никаких конфликтов интересов.

Рекомендации
1. Шарма И.; Ляо, Ю .; Чжэн, X .; Канвар, Ю.С. Новая пандемия: ожирение и ассоциированная нефропатия. Передний. Мед. 2021, 8, 673556. [Перекрестная ссылка]
2. Ли, Э.С.; Квон, Массачусетс; Ким, ХМ; Ким, Н .; Ким, Ю.М.; Ким, ХС; Ли, Эй; Chung, CH. Дибензоилметан ослабляет вызванное липидами воспаление и окислительное повреждение при диабетической нефропатии. Дж. Эндокринол. 2019, 240, 169–179. [Перекрестная ссылка]
3. Мэтью, А.В.; Окада, С .; Шарма, К. Болезнь почек, связанная с ожирением. Курс. Диабет Rev. 2011, 7, 41–49. [Перекрестная ссылка]
4. Ли, В.; Эом, Д.У.; Юнг, Ю.; Ямабе, Н.; Ли, С.; Чон, Ю .; Хван, Ю.Р.; Ли, Дж. Х.; Ким, Ю.К.; Канг, Канзас; и другие. Dendrobium moniliforme ослабляет вызванное диетой с высоким содержанием жиров повреждение почек у мышей посредством регуляции окислительного стресса, вызванного липидами. Являюсь. Дж. Чин. Мед. 2012, 40, 1217–1228. [Перекрестная ссылка] [PubMed]
5. Цубои, Н.; Окабаяси, Ю.; Симидзу, А .; Yokoo, T. Почечная патология ожирения. почки инт. 2017, 2, 251–260. [Перекрестная ссылка] [PubMed]
6. Вентилятор, ПК; Чен, CC; Чен, ЮК; Чанг, Ю.С.; Chu, PH МикроРНК при остром повреждении почек. Гум. Геном. 2016, 10, 29. [Перекрестная ссылка]
7. Чандрасекаран, К.; Каролина, Д.С.; Сепраманиам, С.; Армугам, А .; Винтур, Э.М.; Бертрам, Дж. Ф.; Джеясилан, К. Роль микроРНК в гомеостазе почек и заболеваниях. почки инт. 2012, 81, 617–627. [Перекрестная ссылка]
8. Тан, Дж.; Яо, Д.; Ян, Х .; Чен, X .; Ван, Л.; Жан Х. Роль микроРНК в патогенезе диабетической нефропатии. Междунар. Дж. Эндокринол. 2019, 2019, 8719060. [CrossRef] [PubMed]
9. Эстеллер М. Некодирующие РНК при заболеваниях человека. Нац. Преподобный Жене. 2011, 12, 861–874. [Перекрестная ссылка]
10. Мухади, С.; Халл, Р.; Мбита, З .; Дламини, З. Роль микроРНК в заболевании почек. Некодирующая РНК 2015, 1, 192–221. [Перекрестная ссылка] [PubMed]
11. МакКрейт, Дж. К.; Шнайдер, СЭ; Уилберн, Д.Б.; Суонсон, В. Дж. Эволюция микроРНК у приматов. PLoS ONE 2017, 12, e0176596. [Перекрестная ссылка] [PubMed]
12. Пу, М.; Чен, Дж.; Тао, З .; Мяо, Л.; Ци, Х.; Ван, Ю.; Рен, Дж. Регуляторная сеть микроРНК на ее мишени: координация между транскрипционной и посттранскрипционной регуляцией экспрессии генов. Клетка. Мол. Жизнь наук. 2019, 76, 441–451. [Перекрестная ссылка] [PubMed]
13. Ставаст, С.Дж.; Эркеланд, С.Дж. Неканонические аспекты микроРНК: множество путей к регуляции генов. Cells 2019, 8, 1465. [CrossRef] [PubMed]
14. Козомара, А.; Биргаоану, М.; Гриффитс-Джонс, С. miRBase: от последовательностей микроРНК к функционированию. Нуклеиновые Кислоты Res. 2019, 47, Д155–Д162. [Перекрестная ссылка] [PubMed]
15. Лю З.; Ван, Ю.; Шу, С .; Кай, Дж.; Тан, К.; Донг З. Некодирующие РНК при повреждении и восстановлении почек. Являюсь. J. Physiol.-Cell. Физиол. 2019, 317, C177–C188. [Перекрестная ссылка]
16. Крек, А.; Грюн, Д.; Пой, Миннесота; Вольф, Р .; Розенберг, Л.; Эпштейн, Э.Дж.; Макменамин, П.; да Пьедаде, И.; Гунсалус, KC; Стоффель, М.; и другие. Комбинаторные прогнозы мишеней микроРНК. Нац. Жене. 2005, 37, 495–500. [Перекрестная ссылка]
17. Ха, М.; Ким В.Н. Регуляция биогенеза микроРНК. Нац. Преподобный Мол. Клеточная биол. 2014, 15, 509–524. [Перекрестная ссылка]
18. Ван дер Ховарт, К.; Гловацкий, Ф .; Потье, Н.; Cauffiez, C. Некодирующие РНК как новые терапевтические мишени в контексте почечного фиброза. Междунар. Дж. Мол. науч. 2019, 20, 1977. [Перекрестная ссылка]
19. Реда Эль Сайед, С.; Кристанте, Дж.; Гийон, Л.; Денис, Дж.; Чабре, О .; Черради, Н. Терапия микроРНК при раке: текущие достижения и проблемы. Раки 2021, 13, 2680. [CrossRef]
20. Го, Л.; Ю, Дж.; Ю, Х .; Чжао, Ю .; Чен, С .; Сюй, С .; Чен, Ф. Эволюционный анализ и анализ экспрессии miR-#-5p и miR-#-3p на уровнях miRNAs/isomiRs. Биомед. Рез. Междунар. 2015, 2015, 168358. [Перекрестная ссылка]
21. Wang, X. Состав последовательности семян является основным фактором, определяющим паттерны нацеливания микроРНК. Биоинформатика 2014, 30, 1377–1383. [Перекрестная ссылка]
22. Лейдингер, П.; Келлер, А .; Миз, Э. МикроРНК – важные молекулы в исследованиях рака легких. Передний. Жене. 2011, 2, 104. [CrossRef] [PubMed]
23. Васудеван, С.; Тонг, Ю.; Steitz, JA Переход от репрессии к активации: микроРНК могут активировать трансляцию. Наука 2007, 318, 1931–1934. [Перекрестная ссылка]
24. Ким, Д. Х.; Сэтром, П.; Сневе, О .; Росси, Дж. Дж. МикроРНК-направленное подавление транскрипционных генов в клетках млекопитающих. проц. Натл. акад. науч. США 2008, 105, 16230–16235. [Перекрестная ссылка]
25. Сун, Ю.; Ку, С .; Уайт, Н.; Перальта, Э.; Исав, К.; Дин, Нью-Мексико; Перера, Р. Дж. Разработка микрочипа для обнаружения микроРНК человека и мыши и характеристика экспрессии в органах человека. Нуклеиновые Кислоты Res. 2004, 32, e188. [Перекрестная ссылка]
26. Баскервиль, С.; Бартель, Д.П. Профилирование микрочипов микрочипов выявляет частую коэкспрессию с соседними микроРНК и генами-хозяевами. РНК 2005, 11, 241–247. [Перекрестная ссылка] [PubMed]
27. Серкейра, DM; Боднар, А.Дж.; Фуа, Ю.Л.; Фрир, Р.; Хемкер, С.Л.; Валенский, Л.Д.; Хукриде, Н.А.; Ho, J. Доза гена Bim имеет решающее значение для модуляции выживания предшественников нефрона в отсутствие микроРНК во время развития почек. FASEB J. 2017, 31, 3540–3554. [Перекрестная ссылка]
28. Нагалакшми, В.К.; Рен, В.; Пью, мм; Валериус, МТ; МакМахон, AP; Yu, J. Dicer регулирует развитие нефрогенного и мочеточникового отделов в почках млекопитающих. почки инт. 2011, 79, 317–330. [Перекрестная ссылка]
29. Ма, Л.; Qu, L. Функция микроРНК в развитии почек и патофизиологии. Ж. Жене. Геном. 2013, 40, 143–152. [Перекрестная ссылка]
30. Патель, В.; Нуреддин, Л. МикроРНК и фиброз. Курс. мнение Нефрол. гипертензии. 2012, 21, 410–416. [Перекрестная ссылка] [PubMed]
31. Бийкерк, Р.; Тримперт, К.; ван Золинген, К.; де Брюин, Р.Г.; Флорин, БВ; Койман, С .; ван ден Берг, Р.; ван дер Веер, EP; Бредеволд, EOW; Ренсен, PCN; и другие. МикроРНК-132 контролирует водный гомеостаз, регулируя MECP2-опосредованный синтез вазопрессина. Являюсь. J. Physiol.-Ren. Физиол. 2018, 315, F1129–F1138. [Перекрестная ссылка]
32. ван Зонневельд, А.Дж.; Au, YW; Стам, В .; ван Гельдерен, С.; Ротманс, Дж.И.; Дин, PMT; Рабелинк, Т.Дж.; Bijkerk, R. МикроРНК -132 регулирует зависимые от соли устойчивые уровни ренина у мышей. коммун. биол. 2020, 3, 238. [Перекрестная ссылка]
33. Озбаки-Яган, Н.; Лю, X .; Боднар, А.Дж.; Хо, Дж.; Butterworth, MB Альдостерон-индуцированные микроРНК действуют как регуляторы обратной связи передачи сигналов минералокортикоидных рецепторов в почечном эпителии. FASEB J. 2020, 34, 11714–11728. [Перекрестная ссылка] [PubMed]
34. Лю, Х. Х.; Ли, XQ; Лю, Дж. Ф.; Цуй, С .; Лю, Х .; Центр.; Хуанг, С.Б.; Ван, Л.; Ян, В .; Ван, CC; и другие. miR-6869-5p, транспортируемый внеклеточными везикулами плазмы, опосредует повреждение почечных канальцев и активацию ренин-ангиотензиновой системы при ожирении. Передний. Мед. 2021, 8, 725598. [CrossRef] [PubMed]
35. Хагивара, С.; Макклелланд, А .; Кантаридис, П. МикроРНК при диабетической нефропатии: ренин-ангиотензин, AGE/RAGE и путь окислительного стресса. Дж. Диабет Рез. 2013, 2013, 173783. [CrossRef] [PubMed]
36. Моррис, Б.Дж. Ренин, гены, микроРНК и почечные механизмы, участвующие в гипертонии. Гипертония 2015, 65, 956–962. [Перекрестная ссылка]
37. Секейра-Лопес, М.Л.; Уэзерфорд, ET; Борхес, Г.Р.; Монтеагудо, MC; Пентц, Э.С.; Харф, Б.Д.; Карретеро, О .; Зигмунд, компакт-диск; Gomez, RA Ферментный дайсер, обрабатывающий микроРНК, поддерживает юкстагломерулярные клетки. Варенье. соц. Нефрол. 2010, 21, 460–467. [Перекрестная ссылка]
38. Хуанг, В.; Лю, Х .; Ван, Т .; Чжан, Т .; Куанг, Дж.; Луо, Ю .; Чанг, СС; Юань, Л .; Yang, JY МикроРНК, реагирующие на тонус, способствуют максимальной индукции осморегуляторного фактора транскрипции OREBP в ответ на гипертонус с высоким содержанием NaCl. Нуклеиновые Кислоты Res. 2011, 39, 475–485. [Перекрестная ссылка]
39. Младинов Д.; Лю, Ю.; Мэттсон, Д.Л.; Лян, М. МикроРНК способствуют поддержанию физиологических характеристик, специфичных для определенного типа клеток: MiR-192 нацеливается на Na+/K+-АТФазу 1. Nucleic Acids Res. 2013, 41, 1273–1283. [Перекрестная ссылка] [PubMed]
40. Тапиа-Кастильо, А.; Гуанзон, Д.; Пальма, К.; Лай, А .; Баррос, Э.; Альенде, Ф .; Веккиола, А .; Фарделла, CE; Саломон, К.; Carvajal, CA Понижающая регуляция экзосомальных miR-192-5p и miR-204-5p у субъектов с неклассическим очевидным избытком минералокортикоидов. Дж. Пер. Мед. 2019, 17, 392. [Перекрестная ссылка]
41. Божич, М.; Каус, М.; Родригес-Диез, РР; Педраса, Н.; Руис-Ортега, М.; Гари, Э .; Галель, П.; Панадес, MJ; Мартинес, А .; Фернандес, Э .; и другие. Защитная роль альфа-синуклеина проксимальных канальцев почек в патогенезе фиброза почек. Нац. коммун. 2020, 11, 1943. [Перекрестная ссылка]
42. Косанович М.; Льоренте, А .; Гламоклия, С.; Вальдивельсо, Дж. М.; Божич, М. Внеклеточные везикулы и почечный фиброз: одиссея к новому терапевтическому подходу. Междунар. Дж. Мол. науч. 2021, 22, 3887. [Перекрестная ссылка]
43. Ван, Б.; Комерс, Р.; Кэрью, Р.; Винбэнкс, CE; Сюй, Б .; Герман-Эдельштейн, М.; Ко, П.; Томас, М .; Джанделейт-Дам, К.; Грегоревич, П.; и другие. Подавление экспрессии микроРНК-29 с помощью TGF- 1 способствует экспрессии коллагена и почечному фиброзу. Варенье. соц. Нефрол. 2012, 23, 252–265. [Перекрестная ссылка] [PubMed]
44. Чау Б.Н.; Синь, К .; Хартнер, Дж.; Рен, С .; Кастано, АП; Линн, Г.; Ли, Дж.; Тран, PT; Каймал, В.; Хуанг, X .; и другие. МикроРНК -21 способствует фиброзу почек, подавляя метаболические пути. науч. Перевод Мед. 2012, 4, 121ра18. [Перекрестная ссылка] [PubMed]
45. Чанг, AC; Lan, HY MicroRNAs при почечном фиброзе. Передний. Физиол. 2015, 6, 50. [Перекрестная ссылка]
46. Божич, М.; де Ройдж, Дж.; Паризи, Э .; Ортега, штат Массачусетс; Фернандес, Э.; Valdivielso, JM Глутаматергическая передача сигналов поддерживает эпителиальный фенотип клеток проксимальных канальцев. Варенье. соц. Нефрол. 2011, 22, 1099–1111. [Перекрестная ссылка]
47. Божич, М.; Вальдивельсо, Дж. М. Передача сигналов кальция в клетках почечных канальцев. Доп. Эксп. Мед. биол. 2012, 740, 933–944. [Перекрестная ссылка]\
48. Като, М.; Чжан, Дж.; Ван, М .; Лантинг, Л.; Юань, Х .; Росси, Джей Джей; Натараджан, Р. МикроРНК -192 в клубочках почек при диабете и ее функция в TGF-бета-индуцированной экспрессии коллагена посредством ингибирования репрессоров E-box. проц. Натл. акад. науч. США 2007, 104, 3432–3437. [Перекрестная ссылка]
49. Крупа, А.; Дженкинс, Р.; Луо, Д. Д.; Льюис, А .; Филлипс, А .; Fraser, D. Потеря микроРНК -192 способствует фиброгенезу при диабетической нефропатии. Варенье. соц. Нефрол. 2010, 21, 438–447. [Перекрестная ссылка] [PubMed]
50. Ван, Б.; Ко, П.; Уинбэнкс, К.; Кофлан, Монтана; Макклелланд, А .; Уотсон, А .; Джанделейт-Дам, К.; Бернс, туалет; Томас, MC; Купер, Мэн; и другие. miR-200a Предотвращает почечный фиброгенез посредством подавления экспрессии TGF- 2. Диабет 2011, 60, 280–287. [Перекрестная ссылка]
51. Капорали, А.; Мелони, М .; Фёлленкле, К.; Бончи, Д.; Сала-Ньюби, Великобритания; Аддис, Р .; Спинетти, Г.; Лоса, С .; Массон, Р.; Бейкер, А.Х.; и другие. Нарушение регуляции микроРНК-503 способствует индуцированному сахарным диабетом нарушению функции эндотелия и репаративному ангиогенезу после ишемии конечности. Тираж 2011 г., 123, 282–291. [Перекрестная ссылка] [PubMed]
52. Жа Ф.; Залог.; Тан, Б.; Ли, Дж.; Ван, Ю.; Чжэн, П .; Джи, Т .; Bai, S. МикроРНК -503 способствует повреждению подоцитов путем нацеливания на E2F3 при диабетической нефропатии. Дж. Селл. Биохим. 2019, 120, 12574–12581. [Перекрестная ссылка]
53. Голаминеджад, А.; Абдул Техрани, Х .; Голами Фешараки, М. Идентификация биомаркеров-кандидатов микроРНК при диабетической нефропатии: метаанализ профилирующих исследований. Дж. Нефрол. 2018, 31, 813–831. [Перекрестная ссылка] [PubMed]
54. Зампетаки, А.; Кичль, С.; Дроздов И.; Виллейт, П.; Майр, У .; Прокопи, М.; Майр, А .; Вегер, С.; Оберхолленцер, Ф.; Бонора, Э.; и другие. Профилирование микроРНК плазмы выявляет потерю эндотелиальной миР-126 и других микроРНК при диабете 2 типа. Цирк. Рез. 2010, 107, 810–817. [Перекрестная ссылка] [PubMed]
55. Лв, С.; Чжоу, Ю.Х.; Ву, К .; Шао, Ю.; Лу, CL; Wang, QY Изменения уровней miR-130b в сыворотке человека и корреляция с тяжестью диабетической нефропатии. Диабет метаб. Рез. 2015, 31, 717–724. [Перекрестная ссылка]
56. Ван, Г.; Ян, Ю .; Сюй, Н.; Хуэй, Ю .; Инь, Д. Повышенная регуляция микроРНК -424 облегчила диабетическую нефропатию путем нацеливания на Rictor посредством передачи сигналов mTOR Complex2 / протеинкиназы B. Дж. Селл. Физиол. 2019, 234, 11646–11653. [Перекрестная ссылка] [PubMed]
57. Ли, Х.В.; Хан, SQ; Халикдина, С .; Алтынташ, ММ; Грэммер, Ф.; Чжао, Дж. Л.; Ко, К.Х.; Тарди, Нью-Джерси; Фариди, Миннесота; Герати, Т .; и другие. Отсутствие miR-146a в подоцитах увеличивает риск диабетической гломерулопатии за счет положительной регуляции ErbB4 и Notch-1. Дж. Биол. хим. 2017, 292, 732–747. [Перекрестная ссылка]
58. Ван, К.; Ван, Ю.; Минто, AW; Ван, Дж.; Ши, В.; Ли, Х .; Quigg, RJ МикроРНК -377 активируется и может приводить к увеличению продукции фибронектина при диабетической нефропатии. FASEB J. 2008, 22, 4126–4135. [Перекрестная ссылка]
59. Джасвани П.; Пракаш, С .; Дхар, А .; Шарма, РК; Прасад, Н.; Agrawal, S. Участие микроРНК в почечной патофизиологии: взгляд с высоты птичьего полета. Индийский Дж. Нефрол. 2017, 27, 337–341. [Перекрестная ссылка]
60. Раманатан, К.; Padmanabhan, G. miRNAs как потенциальный биомаркер заболеваний почек: обзор. Клеточная биохимия. Функц. 2020, 38, 990–1005. [Перекрестная ссылка]
61. Эджерблад, Э.; Форд, см; Линдблад, П.; Фризек, Дж.; Маклафлин, Дж. К.; Nyrén, O. Ожирение и риск хронической почечной недостаточности. Варенье. соц. Нефрол. 2006, 17, 1695–1702. [Перекрестная ссылка]
62. Сюй, CY; Маккаллох, CE; Ирибаррен, К.; Дарбинян, Дж.; Го, А.С. Индекс массы тела и риск терминальной стадии почечной недостаточности. Анна. Стажер Мед. 2006, 144, 21–28. [CrossRef] 63. Фостер, MC; Хван, SJ; Портер, ЮАР; Массаро, Дж. М.; Хоффманн, У .; Фокс, К.С. Жирная почка, гипертония и хроническая болезнь почек: Фремингемское исследование сердца. Гипертония 2011, 58, 784–790. [Перекрестная ссылка] [PubMed]
64. Деджи, Н.; Куме, С.; Араки, С .; Сумура, М .; Сугимото, Т .; Исшики, К.; Чин-Канасаки, М.; Сакагучи, М .; Коя, Д.; Ханэда, М .; и другие. Структурно-функциональные изменения в почках мышей с ожирением, вызванных диетой с высоким содержанием жиров. Являюсь. J. Physiol.-Ren. Физиол. 2009, 296, F118–F126. [Перекрестная ссылка] [PubMed]
65. Стеммер, К.; Перес-Тильве, Д.; Анантакришнан, Г.; Борт, А .; Сили, Р. Дж.; Чоп, М. Х.; Дитрих, доктор медицины; Pfluger, PT Ожирение, вызванное диетой с высоким содержанием жиров, вызывает воспалительную и способствующую развитию опухоли микросреду в почках крыс. Дис. Модель. мех. 2012, 5, 627–635. [Перекрестная ссылка] [PubMed]
66. Коимбра, ТМ; Янссен, У .; Грёне, Х. Дж.; Остендорф, Т .; Кунтер, У .; Шмидт, Х .; Брабант, Г.; Floege, J. Ранние события, приводящие к повреждению почек у тучных крыс Zucker (жирных) с диабетом II типа. почки инт. 2000, 57, 167–182. [Перекрестная ссылка]
67. Бэйс, Х.Э.; Тот, ПП; Крис-Этертон, премьер-министр; Абате, Н.; Аронн, LJ; Браун, Западная Вирджиния; Гонсалес-Кэмпой, Дж. М.; Джонс, SR; Кумар, Р.; Ла Форж, Р .; и другие. Ожирение, ожирение и дислипидемия: консенсусное заявление Национальной липидной ассоциации. Дж. Клин. липид. 2013, 7, 304–383. [Перекрестная ссылка]
68. Искьердо-Лауэрта, А.; Мартинес-Гарсия, К.; Медина-Гомес, Г. Липотоксичность как триггерный фактор почечной недостаточности. Дж. Нефрол. 2016, 29, 603–610. [Перекрестная ссылка]
69. Тивари, С.; Ндисанг, Дж. Ф. Роль ожирения в кардиомиопатии и нефропатии. Курс. фарм. Дес. 2014, 20, 1409–1417. [Перекрестная ссылка]
70. Ли, З.; Ли, Дж.; Мяо, X .; Цуй, В .; Мяо, Л.; Cai, L. Мини-обзор: Роль передачи сигналов AMP-активируемой протеинкиназы (AMPK) при повреждении почек, связанном с ожирением. Жизнь наук. 2021, 265, 118828. [Перекрестная ссылка]
71. Ковесди, Ч.П.; Фюрт, С.Л.; Зоккали, К.; комитет, WKDS Ожирение и заболевание почек: скрытые последствия эпидемии. Может. Дж. Здоровье почек Дис. 2017, 4, 2054358117698669. [CrossRef] [PubMed]
72. Мурхед, Дж. Ф.; Чан, МК; Эль-Нахас, М.; Varghese, Z. Липидная нефротоксичность при хроническом прогрессирующем гломерулярном и тубулоинтерстициальном заболевании. Ланцет 1982, 2, 1309–1311. [Перекрестная ссылка]
73. Бобулеску И.А. Почечный липидный обмен и липотоксичность. Курс. мнение Нефрол. гипертензии. 2010, 19, 393–402. [Перекрестная ссылка] [PubMed]
74. Вайнберг, Дж. М. Липотоксичность. почки инт. 2006, 70, 1560–1566. [Перекрестная ссылка]
75. Schaffer, JE Липотоксичность: когда ткани переедают. Курс. мнение липид. 2003, 14, 281–287. [Перекрестная ссылка] [PubMed] 76. Поммер, В. Профилактическая нефрология: роль ожирения на разных стадиях хронической болезни почек. почки дис. 2018, 4, 199–204. [Перекрестная ссылка]
77. Деклев А.Е.; Мэтью, А.В.; Кунард, Р .; Шарма, К. AMPK опосредует начало заболевания почек, вызванного диетой с высоким содержанием жиров. Варенье. соц. Нефрол. 2011, 22, 1846–1855. [Перекрестная ссылка]
78. Уди, С.; Хинден, Л.; Эрли, Б.; Дрори, А .; Реувени, Н .; Хадар, Р .; Чинар, Р .; Немировский, А .; Тэм, Дж. Проксимальный тубулярный каннабиноидный -1 рецептор регулирует ХБП, вызванную ожирением. Варенье. соц. Нефрол. 2017, 28, 3518–3532. [Перекрестная ссылка]
79. Уикс, ЮВ; Нгуен, ТТ; Бро, К.; Крюгер, К.; Стадлер, К. Ожирение и заболевание почек, вызванное диетой - В поисках восприимчивой мышиной модели. Биохимия 2016, 124, 65–73. [Перекрестная ссылка]
80. Цзян Т.; Ван, З .; Проктор, Г.; Московиц, С.; Либман, SE; Роджерс, Т .; Люсия, MS; Ли, Дж.; Леви, М. Ожирение, вызванное диетой, у мышей C57BL/6J вызывает повышенное накопление липидов в почках и гломерулосклероз через стерол-регуляторный элемент, связывающий белок-1c-зависимый путь. Дж. Биол. хим. 2005, 280, 32317–32325. [Перекрестная ссылка]
81. Куме, С.; Узу, Т .; Араки, С .; Сугимото, Т .; Исшики, К.; Чин-Канасаки, М.; Сакагучи, М .; Кубота, Н.; Тераучи, Ю.; Кадоваки, Т .; и другие. Роль измененного метаболизма липидов в почках в развитии повреждения почек, вызванного диетой с высоким содержанием жиров. Варенье. соц. Нефрол. 2007, 18, 2715–2723. [Перекрестная ссылка]
82. Ван, ХХ; Цзян, Т .; Шен, Ю .; Адорини, Л.; Прузански, М.; Гонсалес, Ф.Дж.; Шерцер, П.; Льюис, Л.; Миядзаки-Анзай, С.; Леви, М. Рецептор фарнезоида X модулирует метаболизм липидов в почках и вызванное диетой воспаление почек, фиброз и протеинурию. Являюсь. J. Physiol.-Ren. Физиол. 2009, 297, F1587–F1596. [Перекрестная ссылка]
83. Ван, З.; Цзян, Т .; Ли, Дж.; Проктор, Г.; Макманаман, Дж. Л.; Люсия, С .; Чуа, С .; Леви, М. Регуляция метаболизма липидов в почках, накопление липидов и гломерулосклероз у мышей FVBdb/db с диабетом 2 типа. Диабет 2005, 54, 2328–2335. [Перекрестная ссылка] [PubMed]
84. Пак, CW; Ким, HW; Ко, СХ; Лим, Дж. Х.; Рю, гр.; Чанг, HW; Хан, ЮЗ; Шин, SJ; Банг, БК; Брейер, доктор медицины; и другие. Длительное лечение глюкагоноподобным пептидом -1 аналогом эксендина-4 улучшает течение диабетической нефропатии за счет улучшения метаболических аномалий у мышей db/db. Варенье. соц. Нефрол. 2007, 18, 1227–1238. [Перекрестная ссылка] [PubMed]
85. Домингес, Дж.; Ву, П.; Пакер, CS; Темм, К.; Келли, К.Дж. Липотоксические и воспалительные фенотипы у крыс с неконтролируемым метаболическим синдромом и нефропатией. Являюсь. J. Physiol.-Ren. Физиол. 2007, 293, F670–F679. [Перекрестная ссылка] [PubMed]
86. Солнце, Л.; Халайхель, Н.; Чжан, В .; Роджерс, Т .; Леви, М. Роль белка 1, связывающего регуляторный элемент стерола, в регуляции метаболизма липидов в почках и гломерулосклероза при сахарном диабете. Дж. Биол. хим. 2002, 277, 18919–18927. [Перекрестная ссылка] [PubMed]
87. Оцубо Т.; Мацумура, К .; Сакагами, К.; Фуджи, К.; Цуруя, К .; Ногучи, Х .; Ровира, II; Финкель, Т .; Iida, M. Истощение ксантиноксидоредуктазы вызывает почечный интерстициальный фиброз за счет аберрантного накопления липидов и пуринов в почечных канальцах. Гипертония 2009, 54, 868–876. [Перекрестная ссылка]
88. Уди, С.; Хинден, Л.; Ахмад, М .; Дрори, А .; Айер, MR; Чинар, Р .; Герман-Эдельштейн, М.; Там, Дж. Двойное ингибирование каннабиноидов CB. бр. Дж. Фармакол. 2020, 177, 110–127. [Перекрестная ссылка]
89. Бобулеску, И.А.; Дубри, М.; Чжан, Дж.; Маклерой, П.; Moe, OW Влияние накопления липидов в почках на обмен Na+/H+ в проксимальных канальцах и секрецию аммония. Являюсь. J. Physiol.-Ren. Физиол. 2008, 294, F1315–F1322. [Перекрестная ссылка]
90. Магил, А.Б.; Cohen, AH Моноциты и фокальный гломерулосклероз. лаборатория Вкладывать деньги. 1989, 61, 404–409.
91. Друйе, RE; Овертерф, ML; Киркендалл, В. М. Кортикальные и мозговые липиды нормальной и нефросклеротической почки человека. Междунар. Дж. Биохим. 1978, 9, 729–734. [Перекрестная ссылка]
92. Дженнет, Дж. К.; Falk, RJ Гломерулопатия с минимальными изменениями у взрослых с острой почечной недостаточностью. Являюсь. Дж. Почки Дис. 1990, 16, 432–437. [Перекрестная ссылка]
93. Гублер, М.С.; Ленуар, Г.; Грюнфельд, Дж. П.; Ульманн, А .; Дроз, Д.; Хабиб, Р. Ранние почечные изменения у гемизиготных и гетерозиготных пациентов с болезнью Фабри. почки инт. 1978, 13, 223–235. [Перекрестная ссылка] [PubMed]
94. Сэм Р.; Ву, Х .; Юэ, Л .; Маццоне, Т .; Шварц, ММ; Арруда, Дж. А.; Дунеа, Г.; Сингх, А.К. Липопротеиновая гломерулопатия: новая мутация аполипопротеина Е с усиленным гломерулярным связыванием. Являюсь. Дж. Почки Дис. 2006, 47, 539–548. [Перекрестная ссылка] [PubMed]
95. Чжэн, К.; Чжан, Дж.; Чен, X .; Дин, X .; Вы, Х.; Фан, Л.; Чен, К.; Чжоу, Ю. МикроРНК -155 опосредует вызванное ожирением воспаление почек и дисфункцию. Воспаление 2019, 42, 994–1003. [Перекрестная ссылка] [PubMed]
96. Хуанг, Ю.; Лю, Ю.; Ли, Л .; Су, Б.; Ян, Л .; Фан, В .; Инь, В .; Чен, Л.; Цуй, Т .; Чжан, Дж.; и другие. Вовлечение связанных с воспалением миР-155 и миР-146а в диабетическую нефропатию: последствия повреждения эндотелия клубочков. БМК Нефрол. 2014, 15, 142. [Перекрестная ссылка]
97. Сан, Д.; Чен, Дж.; Ву, В .; Тан, Дж.; Луо, Л.; Чжан, К .; Джин, Л .; Лин, С .; Гао, Ю.; Ян, X .; и другие. MiR-802 вызывает нефропатию, подавляя NF-κB-репрессирующие факторы у мышей и людей с ожирением. Дж. Селл. Мол. Мед. 2019, 23, 2863–2871. [Перекрестная ссылка]
98. Сун, Ю.; Пэн, Р .; Пэн, Х .; Лю, Х .; Вен, Л.; Ву, Т .; Йи, Х .; Ли, А .; Zhang, Z. miR-451 подавляет экспрессию провоспалительных молекул, опосредованных NF-kappaB, посредством ингибирования LMP7 при диабетической нефропатии. Мол. Клетка. Эндокринол. 2016, 433, 75–86. [Перекрестная ссылка]
99. Флуитт, МБ; Шивапуркар, Н.; Кумари, М .; Сингх, С .; Ли, Л .; Тивари, С.; Ecelbarger, CM Системное ингибирование miR-451 увеличивает фиброзную передачу сигналов и уменьшает аутофагическую реакцию, усугубляющую повреждение почек у мышей Tallyho/Jng. Являюсь. J. Physiol.-Ren. Физиол. 2020, 319, F476–F486. [Перекрестная ссылка]
100. Сюй, XH; Дин, Д. Ф.; Йонг, Х.Дж.; Донг, CL; Вы, Н.; Е, XL; Пан, мл; Ма, Дж. Х.; Вы, В.; Lu, YB Ресвератрол транскрипционно регулирует экспрессию miRNA-18a-5p, улучшая диабетическую нефропатию за счет усиления аутофагии. Евро. преподобный мед. Фармакол. науч. 2017, 21, 4952–4965.
101. Перейра, БМВ; Тиме, К.; де Араужо, Л.; Родригес, А.С. Отсутствие адипонектина у мышей ускоряет прогрессирование хронического заболевания почек, вызванное диетой с высоким содержанием жиров. Жизнь наук. 2020, 257, 118061. [Перекрестная ссылка]
102. Моррисон, MC; Якала, ГК; Лян, В .; Велинга, П.Ю.; Салич, К .; ван Коппен, А .; Томар, Т .; Климанн, Р.; Херинга, П.; Kooistra, T. Защитное действие розиглитазона на функцию почек у трансгенных мышей с высоким содержанием жира, зараженных человеческим CRP: возможная роль адипонектина и miR-21? науч. 2017, 7, 2915. [CrossRef]
103. Чжао П.; Ли, Х .; Ли, Ю .; Чжу, Дж.; Солнце, Ю.; Хонг, Дж. Механизм miR-365 в регуляции сигнальной оси BDNF-TrkB при HFD/STZ-индуцированном фиброзе диабетической нефропатии и почечной функции. Междунар. Урол. Нефрол. 2021, 53, 2177–2187. [Перекрестная ссылка]
104. Сюэ, М.; Ли, Ю .; Ху, Ф .; Цзя, Ю.Дж.; Чжэн, ZJ; Ван, Л.; Xue, YM Высокий уровень глюкозы активирует микроРНК-34a-5p, усугубляя фиброз путем нацеливания на SIRT1 в клетках HK-2. Биохим. Биофиз. Рез. коммун. 2018, 498, 38–44. [Перекрестная ссылка]
105. Ли, С.; Цзя, Ю .; Сюэ, М .; Ху, Ф .; Чжэн, З .; Чжан, С .; Рен, С .; Ян, Ю .; Си, З .; Ван, Л.; и другие. Ингибирование Rab27a в эпителиальных клетках почечных канальцев ослабляет воспаление при диабетическом заболевании почек посредством пути miR-26a-5p/CHAC1/NF-kB. Жизнь наук. 2020, 261, 118347. [Перекрестная ссылка]
106. Се, Ю.; Цзя, Ю .; Цуйхуа, X .; Ху, Ф .; Сюэ, М .; Сюэ, Ю. Профилирование экзосомальной микроРНК в моче при начальной стадии диабетической болезни почек 2 типа. Дж. Диабет Рез. 2017, 2017, 6978984. [Перекрестная ссылка]
107. Шан, В.; Чжэн, Г .; Чжу, А .; Цао, Л.; Лу, Дж.; Ву, Д.; Чжан, З .; Поклонники.; Солнце, К .; Центр.; и другие. Эпигенетическая модификация miR-10a регулирует повреждение почек путем нацеливания на CREB1 при сахарном диабете 2 типа. Токсикол. заявл. Фармакол. 2016, 306, 134–143. [Перекрестная ссылка] [PubMed]
108. Матболи, М.; Эйсса, С.; Ибрагим, Д.; Хегази, МГА; Имам, СС; Хабиб, Э.К. Кофейная кислота ослабляет диабетическую болезнь почек посредством модуляции аутофагии в диете с высоким содержанием жиров/диабетической крысе, индуцированной стрептозотоцином. науч. 2017, 7, 2263. [CrossRef]
109. Ян З.; Занг, Б .; Гонг, X .; Рен, Дж.; Wang, R. MiR-214-3p усугубляет повреждение почек и воспаление, вызванное гиперлипидемическим панкреатитом, осложненным острым повреждением почек. Жизнь наук. 2020, 241, 117118. [CrossRef] [PubMed]
110. Сакума, Х.; Хагивара, С.; Кантаридис, П.; Годда, Т .; Suzuki, Y. Потенциальное нацеливание на почечный фиброз при диабетической болезни почек с использованием микроРНК. Передний. Фармакол. 2020, 11, 587689. [CrossRef] [PubMed]
111. Ян, В.; Луо, Ю .; Ян, С .; Цзэн, М .; Чжан, С .; Лю, Дж.; Хан, Ю.; Лю, Ю.; Чжу, X .; Ву, Х .; и другие. Эктопическое накопление липидов: потенциальная роль в повреждении канальцев и воспалении при диабетической болезни почек. клин. науч. 2018, 132, 2407–2422. [Перекрестная ссылка]
112. Гомес, И. Г.; Накагава, Н .; Даффилд, Дж. С. МикроРНК как новые терапевтические мишени для лечения повреждения почек и фиброза. Являюсь. J. Physiol.-Ren. Физиол. 2016, 310, F931–F944. [Перекрестная ссылка]
113. Ли, Ю.; Мэн, Ю .; Чжу, X .; Саадик, И. М.; Джордан, КЛ; Эйрин, А .; Лерман, Л.О. Метаболический синдром увеличивает количество связанных со старением микроРНК во внеклеточных везикулах, полученных из мезенхимальных стволовых/стромальных клеток свиньи и человека. Сотовая общ. Сигнал. 2020, 18, 124. [Перекрестная ссылка]
114. Лв, В.; Фан, Ф .; Ван, Ю.; Гонсалес-Фернандес, Э.; Ван, К.; Ян, Л .; Буз, ГВт; Роман Р.Дж. Терапевтический потенциал микроРНК для лечения почечного фиброза и ХБП. Физиол. Геном. 2018, 50, 20–34. [Перекрестная ссылка]
115. Эльмен, Дж.; Линдоу, М.; Шютц, С.; Лоуренс, М .; Петри, А .; Обад, С .; Линдхольм, М.; Хедтьерн, М .; Хансен, Х.Ф.; Бергер, У .; и другие. LNA-опосредованное молчание микроРНК у приматов, отличных от человека. Природа 2008, 452, 896–899. [Перекрестная ссылка] [PubMed]
116. Крютцфельдт, Дж.; Раевский, Н .; Брайх, Р.; Раджив, К.Г.; Тушл, Т .; Манохаран, М .; Стоффель, М. Замалчивание микроРНК in vivo с помощью «антагомиров». Природа 2005, 438, 685–689. [Перекрестная ссылка] [PubMed]
117. Эберт, М.С.; Нельсон, младший; Sharp, PA МикроРНК-губки: конкурентные ингибиторы малых РНК в клетках млекопитающих. Нац. Методы 2007, 4, 721–726. [Перекрестная ссылка] [PubMed]
118. Дэвис, С.; Лолло, Б .; Фрейер, С.; Исау, К. Улучшенное нацеливание на микроРНК с помощью антисмысловых олигонуклеотидов. Нуклеиновые Кислоты Res. 2006, 34, 2294–2304. [Перекрестная ссылка] [PubMed]
119. ван Ройдж, Э.; Перселл, Алабама; Левин А.А. Разработка терапии микроРНК. Цирк. Рез. 2012, 110, 496–507. [Перекрестная ссылка
120. Исав, К.; Дэвис, С.; Мюррей, Сан-Франциско; Ю, ХХ; Пандей, СК; Груша, М.; Уоттс, Л.; Боутен, С.Л.; Грэм, М.; Маккей, Р.; и другие. miR-122 регуляция метаболизма липидов, выявленная с помощью антисмыслового нацеливания in vivo. Клеточный метаб. 2006, 3, 87–98. [Перекрестная ссылка]
121. Эльмен, Дж.; Линдоу, М.; Силахтароглу, А.; Бак, М .; Кристенсен, М.; Линд-Томсен, А .; Хедтьерн, М .; Хансен, Дж. Б.; Хансен, Х.Ф.; Страаруп, Э.М.; и другие. Антагонизм микроРНК-122 у мышей при системном введении LNA-antimiR приводит к положительной регуляции большого набора предполагаемых мРНК-мишеней в печени. Нуклеиновые Кислоты Res. 2008, 36, 1153–1162. [Перекрестная ссылка] [PubMed]
122. Каре, А.; Каталуччи, Д.; Феличетти, Ф .; Бончи, Д.; Аддарио, А .; Галло, П .; Банг, мл.; Сеньялини, П.; Парень.; Далтон, Северная Дакота; и другие. МикроРНК-133 контролирует гипертрофию сердца. Нац. Мед. 2007, 13, 613–618. [Перекрестная ссылка] [PubMed]
123. Трионфини, П.; Бениньи, А .; Ремуцци, Г. МикроРНК в физиологии и заболеваниях почек. Нац. Преподобный Нефрол. 2015, 11, 23–33. [Перекрестная ссылка] [PubMed]
For more information:1950477648@gmail.com