Молекулярный механизм уклонения SARS-CoV-2 от противовирусного врожденного иммунитета хозяина
Apr 25, 2023
Абстрактный
Недавно выявленный коронавирус тяжелого острого респираторного синдрома 2 (SARS-CoV-2) привел к глобальной чрезвычайной ситуации в области здравоохранения (COVID-19) из-за его быстрого распространения и высокой смертности. Со времени вирусной эпидемии было выявлено множество механизмов патогенеза, успешно разработаны и внедрены в клиническую практику родственные вирусу вакцины. Однако пандемия все еще развивается, и все еще появляются новые мутации. Патогенность вируса тесно связана с иммунным статусом хозяина. Поскольку врожденный иммунитет является первой защитой организма от вирусов, понимание ингибирующего действия SARS-CoV-2 на врожденный иммунитет имеет большое значение для определения цели противовирусного вмешательства. В этом обзоре кратко изложен молекулярный механизм, с помощью которого SARS-CoV-2 ускользает от иммунной системы хозяина, включая подавление выработки врожденного иммунитета и блокирование адаптивного иммунного прайминга. Здесь, с одной стороны, мы посвятили себя обобщению комбинированного действия клеток врожденного иммунитета, цитокинов и хемокинов для уточнения исхода инфекции SARS-CoV-2 и связанного с ней иммунопатогенеза.
С другой стороны, мы сосредоточились на влиянии SARS-CoV-2 на врожденный иммунитет, включая усиление вирусной адгезии, увеличение скорости вирусной инвазии, ингибирование транскрипции и трансляции мРНК, связанной с иммунитетом, увеличение клеточной мРНК. расщепление и ингибирование трансмембранного транспорта белков. Этот обзор основного механизма должен предоставить теоретическую поддержку для разработки будущих таргетных молекулярных препаратов против SARS-CoV-2. Тем не менее, SARS-CoV-2 является совершенно новым вирусом, и понимание его людьми находится в процессе быстрого роста, а также проводятся различные новые исследования. Несмотря на то, что мы стремимся сделать наш обзор как можно более всеобъемлющим, он все же может быть неполным.
Молекулярно-направленные препараты относятся к препаратам, нацеленным на определенные молекулы или сигнальные пути в раковых клетках, которые могут высоко избирательно убивать раковые клетки, не вызывая слишком большого повреждения нормальных клеток. Однако молекулярно-направленные препараты могут также воздействовать на иммунную систему, тем самым влияя на иммунитет. Некоторые препараты молекулярного действия могут ингибировать функцию иммунных клеток, таких как Т-клетки, В-клетки и естественные клетки-киллеры, тем самым снижая иммунитет. Например, некоторые ингибиторы тирозинкиназы и ингибиторы PI3K могут подавлять активность Т-клеток, снижая их способность распознавать и атаковать раковые клетки. Иммунитет также очень важен в повседневной жизни. Нам это нужно, чтобы помочь нам противостоять вторжению вирусов. Исследования показали, что Cistanche может также улучшить иммунитет. Полисахариды в Цистанхе могут регулировать иммунный ответ иммунной системы человека, улучшать стрессоустойчивость иммунных клеток и усиливать бактерицидный эффект иммунных клеток.
Нажмите Цистанхе пустынная добавка
Ключевые слова:
SARS-CoV-2, COVID-19, Противовирусный врожденный иммунитет, Молекулярный механизм, PRR.
Введение
Новая коронавирусная болезнь, COVID-19, вызвала глобальную пандемию в 2020 году, создав огромную проблему для систем здравоохранения и пострадавших сообществ. COVID-19 вызывается тяжелым острым респираторным синдромом-коронавирусом-2 (SARS-CoV-2), который проявляется в виде бронхита, пневмонии или тяжелого респираторного заболевания. Патогенность вируса тесно связана с иммунным статусом хозяина. Иммунитет организма, включающий врожденный иммунитет и приобретенный специфический иммунитет, является ключом к сопротивлению вирусному вторжению. Врожденный иммунитет является первой защитой организма от вирусов, а также основой специфического иммунитета организма [1].
Иммунный ответ при инфекции SARS-CoV-2 проходит две основные фазы: защитная фаза, основанная на иммунной защите, а вторая характеризуется обширным воспалением. Некоторые пациенты, инфицированные SARS-CoV-2-, серьезно заболевают, потому что вирус подавляет иммунный ответ хозяина на первом этапе и вызывает воспалительный шторм на втором. Таким образом, основной подход в управлении лечением заключается в повышении иммунитета на первом этапе и его подавлении на втором этапе. Этот обзор в основном посвящен тому, как SARS-CoV-2 подавляет врожденный иммунитет хозяина и задерживает появление адаптивного иммунитета на первом этапе после заражения хозяина.
Вирусная адгезия
Как и любой вирус, жизненный цикл SARS-CoV-2 делится на три стадии; вход (прикрепление, слияние, снятие покрытия), репликация генома (репликация и трансляция белка) и выход (сборка, созревание и высвобождение) [2]. Первым шагом вируса к проникновению в хозяина является вирусная адгезия. Вирусная инфекция зависит от проникновения в клетку с использованием механизмов хозяина для репликации копий вируса, которые затем высвобождаются хозяином. Проникновение вирусов в клетки-хозяева в основном опосредуется белком S, который заставляет вирусы прикрепляться к рецепторам клетки-хозяина, способствует слиянию между хозяином и вирусной мембраной и обеспечивает успешное проникновение вирусов в клетки-хозяева [3, 4]. Несколько рецепторов участвуют в адгезии и инвазии SARS-CoV-2 в организме человека, и ангиотензинпревращающий фермент 2 (ACE2) является признанным рецептором. Другие возможные сайты взаимодействия, такие как мотив аргинин-глицин-аспарагин (RGD) и DPP4, также активно изучаются. В дополнение к ACE2, для инфекции SARS-CoV-2 требуются десятки факторов хозяина, таких как мотив аргинин-глицин-аспарагин (RGD) и DPP4, которые также широко изучаются. SARSCoV-2 использует опосредованный клатрином эндоцитоз для получения доступа к клеткам, что также является ключевым аспектом инфекционности вируса. Полногеномный скрининг CRISPR показал, что для инфекции SARS-CoV-2 необходимы эндоцитарные регуляторы переноса, такие как SNX27 и ретромер[5].

ACE2
В настоящее время ACE2 признан рецептором SARS-CoV-2, который играет важную роль в адгезии и инвазии вируса. Также была решена трехмерная кристаллическая структура шиповидного рецептор-связывающего домена (RBD) SARS-CoV-2 в комплексе с его рецептором, человеческим ACE2 [6]. ACE2 экспрессируется по всей сосудистой сети организма, обеспечивая доступ SARS-CoV-2 к множеству систем органов [7, 8]. Существует две формы ACE2: полноразмерный мембранный ACE2 (mACE2) и растворимая форма sACE2 [9]. Te mACE2 является рецепторным участком шиповидного (S) белка SARS-CoV-2 и может вызывать увеличение AngII и дальнейшую активацию оси AngII/AT1R, усугубляя воспаление. Что касается растворимой формы, исследования показали, что повышенный уровень sACE2 коррелирует с тяжестью заболевания, возможно, за счет повышения уровня AngII [10, 11]. Имеются также исследования, показывающие, что повышенный уровень sACE2 может свидетельствовать о повышенной экспрессии mACE2, а также может повышать активность ADAM17, тем самым повышая восприимчивость к SARS-CoV-2 [12]. Однако некоторые исследователи предположили, что повышенные уровни sACE2 могут иметь защитный эффект, поскольку они препятствуют связыванию SARS-CoV-2 с mACE [9]. Белок S на оболочке SARS-CoV-2 состоит из субъединиц S1 и S2, а взаимодействие белок S1/рецептор является ключевым фактором, определяющим инфицирование вида-хозяина SARSCoV-2 [13].
Since ACE2 is widely expressed in human organ tissues, including nasal and oral mucosa, vascular system, and gastrointestinal tract (GI), this allows SARS-CoV-2 to infect the human body in various ways [14, 15]. The nasal epithelium is the main route of SARS-CoV-2 infection. Studies have shown that the expression of ACE2 in the nasal epithelium of older children (10–17 years old), adolescents (18–24 years old), and adults (>25 лет) выше, чем у детей раннего возраста (4–9 лет), что может быть одной из причин, по которой дети раннего возраста невосприимчивы к этому вирусу или имеют относительно легкие симптомы после заражения [16]. Хотя экспрессия ACE2 в легких очень низкая, у большинства пациентов с инфекцией SARS-CoV-2 наблюдается респираторный дистресс. Считается, что SARS-CoV-2 вызывает ряд воспалительных реакций, таких как высвобождение интерферонов, которые усиливают экспрессию ACE2 и, таким образом, усиливают инфекцию [17, 18].
РГД
Вездесущий аргинин-глицин-аспарагиновый (RGD) мотив хорошо известен своей ролью в прикреплении клеток и клеточной адгезии. Мотив RGD представляет собой минимальную пептидную последовательность, необходимую для связывания белков семейства интегринов, которые обычно используются в качестве рецепторов многими вирусами человека [19]. Вирусные белки с мотивами RGD способствуют инфицированию путем связывания гетеродимеров интегрина, активации фосфатидилинозитол-3 киназы (PI-3 K) или митоген-активируемой протеинкиназы (MAPK), тем самым облегчая прикрепление вируса к клетке и инфицирование [20]. . Исследования показали, что RGD может играть роль в адгезии и инвазии SARS-CoV-2 [21, 22]. Мотив RGD может связывать интегрины параллельно или последовательно, 2-независимо от АПФ, играя важную роль в быстром распространении SARSCoV-2 [23]. Ионы Са2+ будут усиливать связывание вирусного шиповидного белка с клеткой-хозяином, что будет способствовать проникновению вируса в клетку для инфицирования, репликации и патогенеза [22].
Дипептидилпептидаза 4 (DPP4)
DPP4, также известный как кластер дифференцировки 26 (CD26), является рецептором коронавируса ближневосточного респираторного синдрома (БВРС-КоВ) и недавно был предложен в качестве потенциальной лекарственной мишени для COVID-19 [24]. Ванкадари и др. показали, что человеческий DPP4/CD26 может взаимодействовать с доменом S1 шиповидного гликопротеина SARS-Cov-2 [25]. Они описали сложную модель стыковки между шиповидным гликопротеином SARS-CoV-2 и DPP4, показав большой интерфейс между этими белками, который очень похож на другие коронавирусы, использующие DPP4 в качестве функционального рецептора, такие как CoVHKU4 и MERS- CoV, предполагая, что помимо ACE2 другие молекулы на поверхности клетки могут влиять на адгезию вируса.

эндоцитоз
Эндоцитоз был обычным способом проникновения вируса в клетку-хозяина, и этот процесс был ключевым аспектом инфекционности вируса. В процессе заражения SARS-CoV-2 он использовал свой белок S для взаимодействия с клеточной поверхностью, и после взаимодействия с плазматической мембраной SARS-CoV-2 подвергается быстрому эндоцитозу [26]. Баяти и др. обнаружили, что путем делеции тяжелой цепи клатрина в клетках блокируется клатрин-опосредованный эндоцитоз и снижается инфекционность вируса [26]. Эти данные показали, что шиповидный белок SARS-CoV-2 интернализуется посредством клатрин-опосредованного эндоцитоза.
Помимо упомянутого выше ACE2, многие другие молекулы вовлечены в механизм эндоцитоза SARSCOV-2. Также сообщалось, что NRP1 является рецептором SARS-CoV-2 и играет важную роль в механизмах CendR-ассоциированного эндоцитоза [27]. Предыдущие данные показали, что рецепторы ACE2 были основным путем для SARS-CoV-2 нацеливаться на легкие и проникать в организм. Немышечная тяжелая цепь миозина IIA (MYH9) была идентифицирована как корецептор ACE2, он может совместно локализоваться с S-белком SARS-CoV-2 на мембране и усиливать проникновение SARS-CoV-2 посредством эндоцитоза [28]. ]. Цзя обнаружил, что SNX27 опосредует путь эндоцитоза SARS-COV-2. SNX27 может опосредовать эндоцитоз S-белка, способствовать его поверхностной экспрессии и усиливать эффект трансфекции S-псевдовируса [5]. Взаимодействие Fc-областей антител на поверхности вируса с Fc-рецепторами клеток-мишеней является другим путем эндоцитоза. В то время как экспрессированные Fc-рецепторы стимулировались эндоцитозом вирусных частиц в клетку [29]. В первую очередь судьба SARS-CoV-2 в клетке определяется как типом рецептора, так и путем внутриклеточного транспорта.
Подавление врожденного иммунитета
После вирусной инфекции врожденная иммунная система млекопитающих действует быстро, обнаруживая и блокируя вирусную инфекцию на всех стадиях жизненного цикла вируса. Врожденный иммунитет человека играет ключевую роль в поддержании здоровья, защищая его от коронавируса. Его уровень рассматривается как альтернативное решение перед внедрением эффективных лекарств и вакцин [30]. Ши и др. предложили две фазы иммунного ответа, вызванного инфекцией SARS-CoV-2 [31]. Первая защитная фаза инфекции SARSCoV-2, основанная на иммунной защите, тесно связанная с врожденными иммунными реакциями, очень важна. Исходя из доказательств того, что врожденные иммунные клетки и провоспалительные цитокины были основными действующими лицами врожденного иммунного ответа, имеющего решающее значение для окончательного исхода инфекции COVID-19. Клетки врожденного иммунитета могут распознавать вирус и запускать локальный врожденный ответ на удаление вируса.
Дендритные клетки, макрофаги, нейтрофилы и NK-клетки являются первой линией защиты, которая инициирует иммунный ответ и влияет на его тип и интенсивность. Частота моноцитов, макрофагов и нейтрофилов была выше в группах БАЛЖ с инфекцией SARS-CoV-2. По сравнению с легкими случаями процент макрофагов и нейтрофилов был выше, а mDC, pDC, T и NK-клеток ниже у тяжелых пациентов [32]. Ингибирование SARS на клетках врожденного иммунитета в основном показано в следующих аспектах.
NKG2A и апоптоз NK-клеток
Исследования подтвердили, что количество врожденных лимфоидных клеток (ВЛК) было ниже у взрослых пациентов с COVID-19, особенно в тяжелых случаях, а количество ВЛК было обратно пропорционально вероятности и продолжительности госпитализации и тяжести воспаления [33, 34]. . Цао и др. продемонстрировали, что общее количество NK-клеток значительно уменьшилось в тяжелых случаях COVID-19 по сравнению с нетяжелыми [35]. Представитель CD94/NK группы 2 A (NKG2A) представляет собой гетеродимерный ингибирующий рецептор, экспрессируемый NK-клетками [36]. Он может связываться с неклассическими молекулами HLA класса I (HLA-E) и ингибировать токсичность NK-клеток и секрецию цитокинов через две молекулы ингибирующего иммунного рецептора тирозина [37]. Исследования показали высокую экспрессию NKG2A у пациентов с COVID-19. Активация NKG2A была связана с истощением NK-клеток на ранней стадии инфекции SARSCoV-2 и, следовательно, была связана с тяжелым прогрессированием заболевания [38]. Бортолотти совместно культивировал шиповидный белок, трансфицировавший эпителиальные клетки легких с NK-клетками, и обнаружил, что экспрессия шиповидного белка (SP1) SARS-CoV-2-1 (SP1) в эпителиальных клетках легких приводит к снижению дегрануляции NK-клеток.
Между тем, когда SP1 экспрессируется в эпителиальных клетках легких, усиливается регуляция рецептора ингибирования NK-клеток NKG2A/CD94. Предполагается, что SP1 экспрессируется в эпителиальных клетках легких после инфицирования SARS-CoV-2 и влияет на NK-клетки посредством взаимодействия HLA-E/NKG2A. Истощение NK-клеток может быть вовлечено в иммунный патогенез инфекции SARS-CoV-2 [39]. NKG2A широко изучался при раке. Блокирование NKG2A при раке может восстановить функцию NK, тем самым регулируя рост опухоли. Однако SARS-CoV-2 повышает уровень NKG2A в NK-клетках, что приводит к сбою иммунного ответа против вирусных патогенов, подавляя, таким образом, врожденный иммунный ответ хозяина [40]. Таким образом, ожидается, что использование ингибиторов NKG2A восстановит врожденную иммунную функцию организма при COVID-19, тем самым достигнув терапевтических эффектов.
ORF8 и уклонение от иммунитета
Открытая рамка считывания 8 (ORF8) SARS-CoV-2 была одним из наиболее быстро развивающихся белков бета-коронавируса. У него был гипервариабельный ген, который мог способствовать адаптации вируса к человеку-хозяину [41]. Структура, функция и изменение последовательности ORF8 могут иметь ключевое значение для SARS-CoV-2 как смертельного патогена для человека. Томас Г. и его коллеги обнаружили, что ORF8 SARS-CoV-2 имеет особую кристаллическую структуру благодаря ковалентному димеру с дисульфидной связью и отдельному нековалентному интерфейсу от уникальных крупномасштабных сборок, что может сделать ORF8 быстро развивающимся вспомогательным белком, опосредующим уникальные подавление иммунитета и активность уклонения [42]. SARSCOV-2 ORF8 может опосредовать уклонение от иммунного ответа посредством подавления MHC-I [43]. Исследование показало, что белок ORF8 имеет функцию нарушения системы представления антигена, и в клетках, экспрессирующих ORF8-, молекулы MHC-I избирательно нацелены на лизосомную деградацию. Это приводит к тому, что цитотоксические Т-клетки не могут полностью очистить клетки, инфицированные SARS-COV-2.
В Сингапуре исследователи обнаружили вариант SARS-COV-2 с отсутствующими 382 нуклеотидными фрагментами во фрагменте гена ORF8 (∆382), и что пациенты с этим вариантом, как правило, имели легкое течение заболевания и нуждались в меньшем количестве кислородной терапии, чем инфицированные вируса дикого типа, предполагая, что ORF8 играет важную роль в патогенности SARSCOV-2 [44]. ORF8 — это секретируемый белок, который антитела могут трактовать как основной маркер инфекции SARS-CoV-2 [45]. Ингибирование противовирусного сигнального пути было важным способом избавиться от врожденного иммунитета хозяина. ORF8 был проверен как основной вирусный белок, который показал сильное ингибирование интерферона типа I (IFN-) и промотора, чувствительного к NF-kB [45]. ORF8 также через передачу сигналов IFN-I влиял на внутриклеточный иммунитет и через митоген-активируемые протеинкиназы (MAPK) влиял на пути роста [46].

Уменьшение количества и нарушение функции ДК
При заражении SARS-CoV-2 количество ДК значительно уменьшалось с нарушением функции, а отношение обычных ДК (кДК) к плазмацитоидным ДК (пДК) повышалось среди острых тяжелых пациентов, что может объяснить снижение продукции интерферона. и раннее снижение врожденного иммунитета против инфекции SARSCoV-2 [47]. Кроме того, по сравнению со здоровыми донорами, CD80, CD86, CCR7 и HLA-DR были значительно индуцированы в pDC, cDC1 и cDC2, что указывает на то, что на созревание DC повлияла инфекция SARSCoV-2. [47]. Чжоу и др. продемонстрировали, что функциональность ДК, полученных от пациентов с COVID-19, будет индуцировать пролиферацию аллогенных CD4 и CD8 Т-клеток с помощью тестов in vitro. Таким образом, даже если обильные нейтрализующие антитела против RBD и NP были обнаружены у пациентов с инфекцией SARS-CoV-2, ответ Т-клеток был заметно отсроченным из-за уменьшенного количества и нарушения функции DCs [47]. По сравнению со здоровыми пациентами экспрессия IFN-, в основном продуцируемого pDC, была снижена у пациентов, инфицированных SARS-CoV-2- [48]. В другом исследовании анализировались образцы периферической крови пациентов, инфицированных SARS-CoV-2, и было обнаружено, что кДК значительно истощены у пациентов с диагнозом острый респираторный дистресс-синдром (ОРДС) [49].
Предыдущее исследование показало, что антигенпрезентирующие клетки (АПК), инфицированные MERS-CoV, приводят к отсутствию сигналов DC, что приводит к неэффективности ответа Т-клеток на вирус и способствует апоптозу NK-клеток [50]. Было продемонстрировано, что MERS-CoV инфицирует MoDC, быстро индуцируя высокие уровни экспрессии IFN-, IP-10, IL-12 и RANTES. Недавние исследования показали, что инфекция SARS-CoV-2 снижает экспрессию ACE2 в moDC [51]. Исследования также показали, что MoDC допускают инфекцию SARS-CoV-2 и экспрессию белка, но не поддерживают продуктивную репликацию вируса. Они продемонстрировали, что SARS-CoV-2 ослабляет иммунный ответ в moDC за счет противодействия фосфорилированию STAT1. Впоследствии Паркер и его коллеги описали репертуар пептидов, связанных с лейкоцитарным антигеном класса II человека, представленных дендритными клетками, происходящими из различных моноцитов HLA-DR, с пульсирующим шиповидным белком SARS-CoV-2, в надежде понять и вызвать защитные иммунные ответы на SARS-CoV-2 [52]. На основании этих исследований было сочтено, что DC играют решающую роль в выявлении того, как хозяин защищает себя от вторжения SARS-CoV-2. Недавно Хан и др. предположили, что терапевтический подход на основе дендритных клеток может быть потенциальной стратегией для инфекции SARS-CoV-2 [53].
Чрезмерное воспаление макрофагов и нейтрофилов
Макрофаги и нейтрофилы могут действовать как провоспалительные иммунные клетки, способствуя чрезмерному воспалению, приводящему к системным проявлениям и полиорганным дисфункциям, особенно у пациентов с тяжелой формой COVID-19 с тяжелыми симптомами. Тур и др. также определили, что гиперактивация макрофагов и нейтрофилов приводит к ОРДС и даже к последующей смерти в случаях COVID-19, а умеренная пластичность макрофагов помогает контролировать и управлять инфекцией SARS-CoV-2 [54]. Макрофаги продуцируют провоспалительные цитокины после обнаружения широкого спектра патоген-ассоциированных молекулярных паттернов (PAMP) с использованием рецепторов распознавания паттернов, таких как толл-подобные рецепторы (TLR). Ширато К. сообщил, что субъединица S1 шиповидного белка SARS-CoV-2 сильно индуцирует продукцию IL-6 и IL-1 в мышиных и человеческих макрофагах путем активации передачи сигнала TLR4 через c-Jun N-концевой киназа (JNK) и ядерная транслокация ядерного фактора-κB (NF-κB) путь y[55]. Пути P44/42 MAPK и Akt высвобождают провоспалительные факторы в макрофагах [56]. Заражение SARS-CoV-2 через CD147 инициировало путь JAK-STAT, дополнительно индуцируя экспрессию циклофилина А (CyPA); CyPA реципрокно связывался с CD147 и запускал путь MAPK.
Следовательно, МАРК-путь регулировал экспрессию цитокинов и хемокинов, что способствовало развитию цитокиновых бурь [57]. Торн и др. обнаружили, что активация сенсоров цитоплазматической РНК RIG-I и MDA5 вызывает сильный врожденный иммунный ответ при вторжении SARS-CoV-2. Медиаторы воспаления, продуцируемые во время инфекции эпителиальных клеток, могут стимулировать первичные макрофаги человека, повышая продукцию цитокинов и стимулируя клеточную активацию [58]. Нейтрофилы пациентов с COVID-19 действовали как драйвер гиперинфляции, используя повышенную секрецию цитокинов и дегрануляцию клеток [59]. Также было замечено, что HLA-DR был нарушен на поверхности нейтрофилов, инфицированных SARS-CoV-2, и увеличилась экспрессия PD-L1, что привело к снижению способности презентировать Ag. Однако снижение презентации Ag также наблюдалось в моноцитах, а изменение фенотипа моноцитов было представлено на разных стадиях заболевания у пациентов с COVID-19 [60, 61].
Ингибирует продукцию интерферона
В системе врожденного иммунитета клетки-хозяева быстро открывают множественные сигнальные каскады, распознавая связанные с патогенами молекулярные паттерны (PAMP), что приводит к индукции транскрипции интерферонов типа I и типа III (IFN) [62, 63]. Бастард и др. и Чжан и др. продемонстрировали, что передача сигналов IFN важна для защиты от SARS-CoV-2. Они также заметили, что ограничение сигнального пути IFN приводит к тяжелому COVID-19 [64, 65]. Чен и др. сообщили, что низкая продукция IFN- была связана с тяжелыми случаями COVID-19 [66]. Кроме того, в модели мышей с установленной инфекцией SARS-Cov-2 IFN типа I, типа II и типа III, по-видимому, не активировался. В то время как передача сигналов IFN типа I необходима для рекрутирования провоспалительных клеток в легкие и экспрессии ISG, а не для элиминации вируса. Таким образом, эти результаты показывают, что интерферон типа I не может ингибировать репликацию вируса SARS-CoV-2, но может вызывать важные патологические реакции [67]. Недавно сообщалось, что сигнальные пути MDA5, которые индуцируют ответ IFN, регулируют врожденный иммунный ответ на SARS-CoV -2 в эпителиальных клетках легких [68].
Дальнейшее изучение регуляторных механизмов передачи сигналов IFN-пути, лежащих в основе инфекции SARS-CoV-2, показало, что JAK-1/2-индуцированный STAT, который передает сигналы ниже по течению от рецептора IFN, включая STAT1, значительно повышенный. Интересно, что ингибитор Янус-киназы (JAKi) руксолитиниб может нейтрализовать активацию комплемента, опосредованную SARS-CoV2, что указывает на то, что путь IFN связан с тяжестью состояния пациентов с COVID-19 [70]. В совокупности затрудненный путь IFN является основным механизмом высокой патогенности SARS-CoV-2.
Ранее исследователи наблюдали, что цитокиновый шторм существует в тяжелых случаях SARS-CoV или MERS-CoV [71]. Недавно Ван и соавт. подтвердили, что цитокиновый шторм также возникал у тяжелых пациентов, инфицированных SARSCoV-2 [72]. Иммунные клетки, такие как NK-клетки, макрофаги, DC, нейтрофилы, моноциты и тканевые резидентные клетки, такие как эпителиальные и эндотелиальные клетки, вносят свой вклад в цитокиновый шторм SARSCoV-2. Высокие провоспалительные цитокины и хемокины, такие как IL-1, IL-2, IL-6, IL-7, IL-10, TNF-, IFN- , G-CSF, CCL2, CXCL10 были обнаружены у пациентов с COVID-19. Таким образом, избыточная секреция провоспалительных цитокинов инфекцией SARS-CoV-2 приводит к тяжелым исходам.
Эти результаты показали, что иммунные клетки обеспечивают критическое понимание врожденного иммунного распознавания и сигнального ответа на SARS-CoV-2. В целом, эти результаты дают критическое представление о распознавании врожденным иммунитетом и молекулярной основе сигнального ответа на SARS-CoV-2. Таким образом, врожденный иммунитет необходим для раннего контроля инфекции. Кроме того, нам следует глубже понять молекулярный механизм некоторых вирусных белков, ингибирующих иммунитет.
SARS-CoV-2 кодирует широкий спектр вирусных структурных белков и неструктурных белков (NSP) с различными функциональными ролями в репликации и упаковке вируса, которые влияют на сигнальный путь IFN и, в свою очередь, нарушают опосредованную IFN противовирусную активность. ответы [4]. Наиболее важными белками являются NSP1, NSP8, NSP9 и NSP16, которые играют важную роль в ингибировании транскрипции, трансляции и транспорта белков хозяина.
Неструктурные белки1 (NSP1)
Nsp1 кодируется на самом 5'-конце ORF1a и является первым коронавирусным белком, продуцируемым в инфицированных клетках. Предыдущие исследования показали, что Nsp1 играет важную роль в подавлении трансляции хозяина на SARS-CoV-1 и вызывает расщепление и распад мРНК [73], что приводит к ингибированию внутренних клеточных врожденных иммунных ответов, таких как прерывание передачи сигналов интерферона [74– 77]. Цзян и др. [78] проверили все вирусные белки SARS-CoV-2 на белок-белковые взаимодействия с помощью двухгибридной системы млекопитающих. Они обнаружили, что Nsp1 SARS-CoV-2 имеет наиболее взаимодействующих партнеров среди всех вирусных белков и, вероятно, функционирует как концентратор для вирусных белков. Механизм, с помощью которого SARS-CoV-2 Nsp1 ингибирует трансляцию, до недавнего времени оставался плохо изученным. Шуберт и др. [65] и Томс и соавт. [68] предоставили информацию о том, как Nsp1 связывается с субъединицей 40S рибосомы и блокирует входной канал мРНК.
С помощью криоэлектронной микроскопии в двух исследованиях выделяются области взаимодействия между Nsp1 и рибосомой и показана 5'UTR вирусного транскрипта. SARS-CoV-2 Nsp1 вызывает ингибирование трансляции, стерически закрывая входную область канала мРНК в свободных 40S субъединицах, 43S преинициаторном комплексе и в пустых нетранслирующих 80S рибосомах [79]. Мендес и др. [80] обнаружили, что центральные участки nsp1 не участвуют в стыковке с входным каналом мРНК 40S, тем не менее, стабилизируют его ассоциацию с рибосомой и мРНК, усиливая ограничение экспрессии генов-хозяев и позволяя мРНК, содержащей SARS-CoV-2 лидерная последовательность, чтобы избежать трансляционной репрессии. Последняя литература показывает, что выход трансляции репортеров, содержащих полноразмерные вирусные 5'-нетранслируемые области (UTR), значительно увеличивается, что может объяснить, как Nsp1 ингибирует глобальную трансляцию, при этом все еще транслируя достаточное количество вирусных мРНК [79]. Однако может показаться, что эффект Nsp1 ограничивается ингибированием трансляции с небольшим прямым влиянием на транскрипцию генов иммунного ответа и стабильность мРНК, если таковое вообще имеется [81].
Неструктурный белок 8 (NSP 8) и неструктурный белок 9 (NSP 9)
Во время заражения клеток человека было обнаружено, что SARS-CoV-2 NSP 8 и NSP 9 необходимы для репликации, связывая частицу распознавания сигнала (SRP) и нарушая перенос белка [82, 83]. SRP представляет собой универсальный консервативный комплекс, который связывается с рибосомой 80S и котрансляционно сканирует формирующийся пептид для идентификации гидрофобных сигнальных пептидов, присутствующих в интегральных мембранных белках и белках, секретируемых из плазматической мембраны [84]. NSP8 и NSP9 наблюдали, что может связываться с 7SL РНК в частице, распознающей сигнал, и препятствовать переносу белка на клеточную мембрану при инфицировании [85]. В соответствии с этим исследование показывает, что NSP8 и NSP9 широко локализуются в цитоплазме при экспрессии в клетках человека или при инфекции SARS-CoV-2 [83, 86]. Нарушение SRP приводит к глобальному снижению уровня пуромицина в клеточной мембране и подавляет интеграцию белка в клеточную мембрану в клетках, инфицированных SARS-CoV-2.
Кроме того, противодействуя проникновению через мембрану, SARS-CoV-2 может предотвратить презентацию вирусных антигенов на MHC и позволить инфицированным клеткам избежать распознавания и очистки Т-клеток. Таким образом, вмешательство в эти важные клеточные процессы может еще больше помочь SARSCoV-2 уклониться от иммунного ответа хозяина. В то же время исследование показывает, что опосредованное NSP8/9- вирусное подавление SRP может подавлять ответ IFN при инфицировании [83].
Неструктурные белки16 (NSP 16)
Nsp16, 2'-O-метилтрансфераза (2'-O-MTase), является частью комплекса репликация-транскрипция и играет существенную роль в трансляции мРНК, репликации вируса и выходе из системы врожденного ответа клетки-хозяина [87-87]. 89]. Nsp16 достигает этого, подражая своему гомологу человека, CMTr1, который метилирует мРНК для повышения эффективности трансляции и отличает себя от других, чтобы избежать подавления, опосредованного IFIT [90]. NSP16 связывается с 5'-последовательностью распознавания сайта сплайсинга U1 и сайтом узнавания точки ветвления U2. В соответствии с U1/U2, Banerjee et al. наблюдали, что NSP16 локализуется в ядре при инфицировании SARS-CoV-2 в клетках человека и нарушает глобальный сплайсинг мРНК в клетках, инфицированных SARS-CoV-2-, а ингибирование сплайсинга мРНК подавляет ответ интерферона хозяина на вирусную инфекцию [83]. Несколько исследований показали, что Nsp16 облегчает перенос метильной группы от его кофактора S-аденозилметионина (SAM) на 2'-гидроксил рибозного сахара вирусной мРНК [91]. Это метилирование повышает эффективность трансляции и маскирует мРНК, так что она не распознается внутриклеточными рецепторами распознавания патогенов, такими как IFIT и RIG-I [90, 92]. Благодаря своей важной роли в репликации SARS-CoV-2, NSP16 является одной из наиболее жизнеспособных мишеней для разработки лекарств [93].
За исключением NSP 1, NSP 8, NSP 9 и NSP 16 (рис. 1), другие виды NSP играют важную роль в иммунитете и воспалении организма. Недавно Сюй и соавт. [94] обнаружили, что NSP12 может способствовать активации RIPK1 и приводить к системному воспалительному ответу, известному как цитокиновый шторм, который может привести к смерти. Вариант NSP12 323L, несущий аминокислотную замену Pro323Leu в NSP12, показал повышенную способность активировать RIPK1, что позволяет предположить, что ингибирование NSP12 может обеспечить терапевтический вариант лечения COVID-19. Руссо и др. выявили, что макродомен NSP3 обращает PARP9/DTX3L-зависимое АДФ-рибозилирование, индуцированное передачей сигналов интерферона, для противодействия врожденному иммунному ответу хозяина [95].
Ингибирование адаптивного иммунного прайминга
У пациентов с COVID-19 были некоторые доказательства обратной корреляции между количеством Т-клеток и тяжестью заболевания. ДиПьяцца и др. наблюдали более высокое соотношение CD8 плюс/CD4 плюс Т-клетки в легких случаях, тогда как в тяжелых случаях была обнаружена обратная тенденция [96]. Инфекция SARS-CoV-2 может сопротивляться противовирусному иммунитету организма, разрушая функцию цитотоксических лимфоцитов на ранней стадии [38]. Сообщалось, что количество CD8+Т-клеток снижается во время инфекции COVID-19, а в тяжелых случаях количество CD4+Т-клеток памяти и Т-регуляторных клеток значительно снижается [97]. Количество лимфоцитов, CD3 плюс Т-клетки и CD8 плюс Т-клетки были значительно выше у пациентов с легкой стадией и/или только легкими симптомами, чем у пациентов с тяжелым заболеванием [35].
SARS-CoV-2 сдерживает презентацию антигена путем подавления молекул MHC класса I и II и, следовательно, ингибирует Т-клеточно-опосредованные иммунные ответы [98]. Было обнаружено, что цитотоксические CD8 плюс Т-клетки демонстрируют модели функционального истощения, такие как экспрессия NKG2A, PD-1 и TIM-3. Кроме того, дегрануляция CD8 плюс Т-клеток была снижена у пациентов с COVID-19 по сравнению со здоровыми донорами, что привело к снижению продукции IL-2, IFN- и гранзима B [38]. Все это указывает на то, что SARS-CoV-2 обладает сильной способностью подавлять адаптивный иммунный ответ.
Помимо клеточного иммунитета, SARS-CoV-2 также ингибировал гуморальный иммунитет. Сообщалось, что ответ эффекторных В-клеток на вирусную инфекцию был связан с тяжестью заболевания. Мэтью и др. наблюдали данные секвенирования В-клеточного антигена и рецептора и продемонстрировали, что специфическая реактивность SARS-CoV-2- была широкой с участием антител IgM, IgA и IgG. Однако ответы сывороточных антител против RBD шиповидного белка SARS-CoV-2 были выше у амбулаторных пациентов, чем у пациентов в ОИТ [99]. Другие исследования показали низкий уровень антител у людей, умерших от COVID-19. Уровни анти-S и анти-RBD IgG быстро достигали максимума у выписанных пациентов и демонстрировали хороший клиренс вируса, в то время как у умерших требовалось больше времени для выработки высоких уровней антител [100], что может быть связано с числом Т эффекторной памяти (ЭМ). клетки. Головкин А подтвердил, что уровни Т-клеток в периферической крови больных COVID-19 были снижены по сравнению со здоровыми людьми, при этом не было различий в абсолютном количестве или процентном содержании Т-клеток у пациентов со среднетяжелым и тяжелым течением заболевания.
Однако количество Т-клеток ЭМ было значительно ниже у пациентов с тяжелой формой, чем у пациентов со средней степенью тяжести [101]. Для дальнейшего разделения относительное количество IFN-продуцирующих T17--подобных и Tfh-подобных подмножеств клеток было снижено у пациентов с умеренными и тяжелыми инфекциями. Нарушение дифференцировки Tfh-подобных клеток у пациентов с COVID-19 может привести к созреванию дисфункциональных В-клеток и изменению гуморального иммунного ответа во время острого COVID-19. Все это приводит к значительному снижению количества В-клеток у пациентов с COVID-19, а снижение количества В-клеток связано с тяжестью заболевания.
Мнение авторов
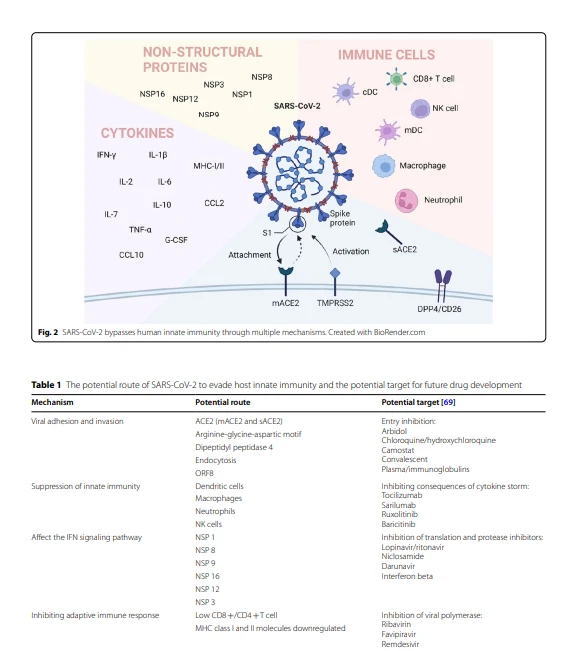
SARS-CoV-2 обходит несколько путей активации врожденного иммунитета с помощью различных механизмов, как показано на рис. 2. Врожденный иммунитет, как первая линия защиты человека от вирусных инфекций, очень хрупок при атаке нового коронавируса. , позволяя вирусу быстро распространяться, вызывать заболевания и даже приводить к смерти. Несмотря на запуск вакцин и новых лекарств, пандемия COVID-19 все еще развивается. Нам по-прежнему нужны более эффективные и практичные методы профилактики и лечения. Блокирование проникновения вируса через естественный иммунитет может стать новой отправной точкой. Поэтому мы рассмотрели подавление врожденного иммунитета SARS-CoV-2, чтобы предложить идеи для разработки новых профилактических и терапевтических препаратов. Как показано в таблице 1, SARS-CoV-2 проникает в организм, размножается и высвобождает вирусные частицы различными способами. Для каждого способа проникновения и разрушения организма можно разработать специфические препараты антител или низкомолекулярные ингибиторы. На самом деле, со временем все больше и больше лекарств регистрируется и применяется в условиях клиники [102–105]. С этой точки зрения, это только вопрос времени, когда люди справятся с новой коронной эпидемией. Более того, это время может оказаться не таким долгим, как предполагалось.

Благодарности
Мы благодарим доктора Наньшань Чжун из Медицинского университета Гуанчжоу за предоставление ценных идей для этой рукописи.
Вклад авторов
Все авторы внесли существенный вклад в написание этого обзора, критически переработали его на предмет важного интеллектуального содержания, одобрили версию для публикации и согласились нести ответственность за все аспекты этого обзора. Все авторы согласились с содержанием этого обзора и дали явное согласие на его отправку. Все авторы прочитали и одобрили окончательный вариант рукописи.
Финансирование
Исследование проводилось при поддержке проекта по внедрению «группы клинических медицинских экспертов» в Сучжоу (SZYJTD201806). Открытый проект Института респираторного здоровья Гуанчжоу (Средства предоставлены China Evergrande Group) (2020GIRHHMS04), Медицинский фонд Чжуннаньшань провинции Гуандун (ZNSA-2021005, ZNSA-2020001, ZNSA-2021017), аварийный ключ проект Лаборатории Гуанчжоу (EKPG21-30-2), Проект развития Первой дочерней больницы Медицинского университета Гуанчжоу (ZH202105).
Наличие данных и материалов
Непригодный.
Декларации
Этическое одобрение и согласие на участие
Непригодный.
Согласие на публикацию
Непригодный.
Конкурирующие интересы
Авторы заявляют об отсутствии конфликта интересов, связанного с данным обзором.
Получено: 30 декабря 2021 г. Принято: 9 марта 2022 г.
Рекомендации
1. Ветвицка В., Сима П., Ваннуччи Л. Тренированный иммунитет как адаптивная ветвь врожденного иммунитета. Int J Mol Sci. 2021;22(19):10684.
2. Рю В.С. Жизненный цикл вируса. Mol Virol Вирусы патогенов человека. 2017 г. https://doi.org/10.1016/B978-0-12-800838-6.00003-5.
3. Luan J, Lu Y, Jin X, Zhang L. Распознавание шиповидного белка ACE2 млекопитающих предсказывает диапазон хозяев и оптимизированный ACE2 для инфекции SARS-CoV-2. Biochem Biophys Res Commun. 2020;526(1):165–9.
4. Wang H, Li X, Li T, Zhang S, Wang L, Wu X, Liu J. Генетическая последовательность, происхождение и диагностика SARS-CoV-2. Eur J Clin Microbiol Infect Dis. 2020;39(9):1629–35.
5. Zhao L, Zhong K, Zhao J, Yong X, Tong A, Jia D. Белок шипа SARS-CoV-2 использует SNX27-опосредованный путь рециркуляции эндоцитов. МедКомм (2020). 2021;2(4):798–809.
6. Чен И, Го И, Пан И, Чжао ЗДж. Анализ структуры рецепторного связывания 2019-nCoV. Biochem Biophys Res Commun. 2020;525(1):135–40.
7. Акерманн М., Верледен С.Е., Кюнель М., Хаверих А., Велте Т., Ленгер Ф., Ванстапель А., Верляйн С., Старк Х., Цанков А. и др. Легочный сосудистый эндотелиит, тромбоз и ангиогенез при Covid-19. N Engl J Med. 2020;383(2):120–8.
8. Varga Z, Flammer AJ, Steiger P, Haberecker M, Andermatt R, Zinkernagel AS, Mehra MR, Schuepbach RA, Ruschitzka F, Moch H. Инфекция эндотелиальных клеток и эндотелины при COVID-19. Ланцет. 2020;395(10234):1417–8.
9. Batlle D, Wysocki J, Satchell K. Растворимый ангиотензинпревращающий фермент 2: потенциальный подход к терапии коронавирусной инфекции? Clin Sci (Лондон). 2020;134(5):543–5.
10. Рамчанд Дж., Патель С.К., Кирни Л.Г., Маталанис Г., Фарук О., Сривастава П.М., Баррелл Л.М. Плазменная активность ACE2 предсказывает смертность при аортальном стенозе и связана с тяжелым фиброзом миокарда. JACC Cardiovasc Imaging. 2020;13(3):655–64.
11. Epelman S, Tang WH, Chen SY, Van Lente F, Francis GS, Sen S. Обнаружение растворимого ангиотензинпревращающего фермента 2 при сердечной недостаточности: понимание эндогенного контррегуляторного пути ренин-ангиотензин-альдостероновой системы. J Am Coll Кардиол. 2008;52(9):750–4.
12. Свэрд П., Эдсфельдт А., Рипалу А., Йехпссон Л., Розенгрен Б.Е., Карлссон М.К. Возрастные и половые различия в растворимом ACE2 могут дать представление о COVID-19. Критический уход. 2020;24(1):221.
13. Самавати Л., Ухал Б.Д. ACE2 — это гораздо больше, чем просто рецептор SARSCOV-2. Front Cell Infect Microbiol. 2020;10:317.
14. Gembardt F, Sterner-Kock A, Imboden H, Spalteholz M, Reibitz F, Schultheiss HP, Siems WE, Walther T. Органоспецифическое распределение мРНК ACE2 и корреляция активности пептидазы у грызунов. Пептиды. 2005;26(7):1270–7.
15. Xu H, Zhong L, Deng J, Peng J, Dan H, Zeng X, Li T, Chen Q. Высокая экспрессия рецептора ACE2 2019-nCoV на эпителиальных клетках слизистой оболочки полости рта. Int J Oral Sci. 2020;12(1):8.
16. Буняванич С., До А., Висенсио А. Назальная экспрессия гена ангиотензинпревращающего фермента 2 у детей и взрослых. ДЖАМА. 2020;323(23):2427–9.
17. Zhuang MW, Cheng Y, Zhang J, Jiang XM, Wang L, Deng J, Wang PH. Увеличение экспрессии клеточного рецептора-ангиотензинпревращающего фермента 2 хозяина коронавирусом может способствовать заражению 2019-nCoV (или SARS-CoV-2). J Med Virol. 2020;92(11):2693–701.
18. Ziegler CGK, Allon SJ, Nyquist SK, Mbano IM, Miao VN, Tzouanas CN, Cao Y, Yousif AS, Bals J, Hauser BM, et al. Рецептор SARS-CoV-2 ACE2 представляет собой интерферон-стимулируемый ген в эпителиальных клетках дыхательных путей человека и обнаруживается в определенных субпопуляциях клеток в различных тканях. Клетка. 2020;181(5):1016–35.
19. Хуссейн Х.А., Уокер Л.Р., Абдель-Рауф У.М., Десуки С.А., Монтассер А.К., Акула С.М. Помимо RGD: взаимодействие вирусов с интегринами. Арх Вирол. 2015;160(11):2669–81.
20. Хайнс Р.О. Интегрины: двунаправленные аллостерические сигнальные машины. Клетка. 2002;110(6):673–87.
21. Sigrist CJ, Bridge A, Le Mercier P. Возможная роль интегринов в проникновении SARS-CoV в клетку-хозяина-2. Противовирусный рез. 2020;177:104759.
22. Дакал ТК. Прикрепление SARS-CoV-2 к клеткам-хозяевам, возможно, опосредовано взаимодействием RGD-интегрина кальций-зависимым образом, что предполагает легочную хелатирующую терапию с ЭДТА в качестве нового метода лечения COVID-19. Иммунобиология. 2021;226(1):152021.
23. Yan S, Sun H, Bu X, Wan G. Новая стратегия для COVID-19: эволюционная роль мотива RGD в SARS-CoV-2 и потенциальные ингибиторы вирусной инфекции. Фронт Фармакол. 2020;11:912.
24. Iacobellis G. COVID-19 и диабет: может ли ингибирование ДПП4 играть роль? Diabetes Res Clin Pract. 2020;162:108125.
25. Ванкадари Н., Вилс Дж.А. Возникающий коронавирус WuHan (COVID-19): гликановый щит и предсказание структуры шиповидного гликопротеина и его взаимодействия с CD26 человека. Новые микробы заражают. 2020;9(1):601–4.
26. Баяти А., Кумар Р., Фрэнсис В., Макферсон П.С. SARS-CoV-2 заражает клетки после проникновения вируса посредством клатрин-опосредованного эндоцитоза. Дж. Биол. Хим. 2021;296:100306.
27. Кантути-Кастельветри Л., Оджа Р., Педро Л.Д., Джаннатиан М., Франц Дж., Куйванен С., ван дер Меер Ф., Каллио К., Кая Т., Анастасина М. и др. Нейропилин-1 способствует проникновению и инфекционности клеток SARS-CoV-2. Наука. 2020;370(6518):856–60.
28. Chen J, Fan J, Chen Z, Zhang M, Peng H, Liu J, Ding L, Liu M, Zhao C, Zhao P, et al. Тяжелая цепь немышечного миозина IIA способствует инфицированию SARSCoV-2 в клетках легких человека. Proc Natl Acad Sci USA. 2021;118(50):e2111011118.
29. Князев Э., Нерсисян С., Тоневицкий А. Эндоцитоз и трансцитоз SARS-CoV-2 через кишечный эпителий и другие тканевые барьеры. Фронт Иммунол. 2021;12:636966.
30. Чоудхури М.А., Хоссейн Н., Кашем М.А., Шахид М.А., Алам А. Иммунный ответ при COVID-19: обзор. J заразить общественное здравоохранение. 2020;13(11):1619–29.
31. Shi Y, Wang Y, Shao C, Huang J, Gan J, Huang X, Bucci E, Piacentini M, Ippolito G, Melino G. Инфекция COVID-19: перспективы иммунных реакций. Смерть клеток 2020;27(5):1451–4.
32. Ляо М., Лю И, Юань Дж, Вэнь И, Сюй Г, Чжао Дж, Ченг Л, Ли Дж, Ван Х, Ван Ф и др. Одноклеточный ландшафт бронхоальвеолярных иммунных клеток у пациентов с COVID-19. Нат Мед. 2020;26(6):842–4.
33. Silverstein NJ, Wang Y, Manickas-Hill Z, Carbone C, Dauphin A, Boribong BP, Loiselle M, Davis J, Leonard MM, Kuri-Cervantes L, et al. Врожденные лимфоидные клетки и толерантность к заболеванию при инфекции SARS-CoV-2. medRxiv. 2021 г. https://doi.org/10.1101/2021.01.14.21249839.
34. Гарсия М., Коккиноу Э., Карраско Гарсия А., Паррот Т., Пальма Медина Л.М., Малеки К.Т., Крист В., Варнайте Р., Филипович И., Люнггрен Х.Г. и др. Состав врожденных лимфоидных клеток связан с тяжестью заболевания COVID-19. Клин Трансл Иммунология. 2020;9(12):e1224.
35. Цао X. COVID-19: иммунопатология и ее значение для терапии. Нат Рев Иммунол. 2020;20(5):269–70.
36. Хоучинс Дж. П., Ланье Л. Л., Ниеми Э. С., Филлипс Дж. Х., Райан Дж. К. Цитолитическая активность естественных клеток-киллеров ингибируется NKG2-A и активируется NKG2-C. Дж Иммунол. 1997;158(8):3603–9.
37. Nguyen S, Beziat V, Dhedin N, Kuentz M, Vernant JP, Debre P, Vieillard V. Повышающая регуляция HLA-E на IFN-гамма-активированных бластах AML ухудшает CD94/NKG2A-зависимый цитолиз NK после гапло-несоответствующей гемопоэтической SCT. Пересадка костного мозга. 2009;43(9):693–9.
For more information:1950477648nn@gmail.com