Протеаза Calpain2a ограничивает врожденный иммунитет, воздействуя на TRAF6 у костистых рыб
Dec 19, 2023
Фактор 6, ассоциированный с рецептором TNF (TRAF6), играет ключевую роль в передаче сигнала как в антибактериальных, так и в противовирусных сигнальных путях. Однако о регуляторных механизмах TRAF6 у низших позвоночных известно меньше. В этом исследовании мы идентифицируем кальпаин2а как члена семейства кальций-зависимых протеаз с уникальной гидролитической ферментативной активностью и действует как ключевой регулятор антибактериального и противовирусного иммунитета у костистых рыб. При стимуляции липополисахаридом (ЛПС) нокдаун кальпаина 2а способствует повышению регуляции воспалительных цитокинов. Механически кальпаин2а взаимодействует с TRAF6 и снижает уровень белка TRAF6 путем гидролиза. После потери ферментативной активности мутантный кальпаин2а конкурентно ингибирует образование димера и аутоубиквитинирование TRAF6. Нокдаун кальпаина2а также способствует клеточному противовирусному ответу. Мутантный кальпаин2а, лишенный гидролазной активности, подавляет убиквитинирование регуляторного фактора IFN (IRF) 3/7 из TRAF6. В совокупности эти данные классифицируют кальпаин2а как негативный регулятор врожденных иммунных ответов, воздействуя на TRAF6 у костистых рыб.

цистанхе трубчатой – улучшает иммунную систему
Врожденный иммунитет, являясь первой линией защиты от проникновения патогенов, играет важную роль в защите организма от бактериальной инвазии и вирусных инфекций. Рецепторы распознавания образов (PRR) на мембране немедленно распознают молекулярные паттерны, связанные с патогенами (PAMP)1–3. Тремя наиболее широко изученными PRR во врожденном иммунитете являются Toll-подобные рецепторы (TLR), RIG-I-подобные рецепторы (RLR) и NOD-подобные рецепторы (NLR), которые распознают различные PAMP и запускают сигнальные каскады для активации провоспалительных цитокинов и противовирусный фактор4–6. Фактор, ассоциированный с рецептором TNF (TRAF) 6, является незаменимой частью борьбы с бактериальной инвазией и вирусными инфекциями. Путь ядерного транскрипционного фактора-κB (NF-κB) является важным сигнальным путем, активируемым липополисахаридом (ЛПС). Большинство функций белка в сигнальном пути NF-κB тщательно изучены1,7. Миелоидный фактор дифференциации 88 (MyD88) сначала активируется TLRs в ответ на LPS, а IRAK4 действует как медиатор, активируя IRAK1 и IRAK2, которые связывают MyD88 с TRAF68–11. Ubc13 и Uev1A катализируют K63-связанное убиквитинирование TRAF6, которое переносит цепь убиквитина K63 на TAB2 и TAB3, что приводит к активации TAK112–16. TRAF6-регулируемый активатор IKK 2 (TRIKA2), состоящий из TAK1, TAB1 и TAB2, активирует ингибитор киназы IκB (IKK) / фосфорилирования17–19. Транскрипционный фактор NF-κB проникает в ядро и способствует выработке воспалительных цитокинов20. Когда TLR7/9 распознает вирус, комплекс MyD88- IRAKs-TRAF6 передает сигналы регуляторному фактору IFN (IRF) 7, способствует убиквитинированию IRF7 и активирует его фосфорилирование в ядро21,22. В сигнальном пути RLR RIG I и ген 5, связанный с дифференцировкой меланомы (MDA5), активируют митохондриальный противовирусный сигнальный белок (MAVS)23,24. Агрегация MAVS является важной особенностью начала передачи сигнала RLR23,25,26. TRAF2/3/6 являются первыми факторами, активируемыми MAVS27,28. TRAF3 активирует передачу сигналов TBK1-IRF3, а комплекс MAVS-TRAF6 активирует передачу сигналов NF-κB, что способствует экспрессии IFN-127,29.

Польза цистанхе для мужчин – укрепление иммунной системы
Молекулярный механизм активации TRAF6 уже продемонстрирован. TRAF6 в димерной форме подвергается аутоубиквитинированию под катализом Ubc13 и Uev1A, что связано с доменом безымянного пальца и доменом пальцев ZF. Модель TRAF6/Ubc13~UB подтверждает важную роль димера TRAF6 в агрегации и передаче убиквитиновой цепи K6330. Кроме того, сообщалось, что домены безымянного пальца и пальцев ZF рекрутируют конъюгаты E2~ub в кристаллической модели TRAF6 рыбок данио, и было обнаружено, что TRAF6 может образовывать гетеродимер с TRAF5 из того же семейства TRAF впервые16. Белки семейства деубиквитинирования: A20, CYLD, USP2a, USP4 и USP20 нацелены на TRAF6, чтобы удалить K63-связанное убиквитинирование и уменьшить нижестоящую передачу сигналов31–35. Двугибридная система дрожжей выявляет взаимодействие между UBE2O и TRAF6 и подтверждает, что это взаимодействие напрямую влияет на активацию TRAF6 с помощью MyD8836. В дальнейшем процессе передачи сигнала TRAF6 ECSIT как промежуточный белок взаимодействует с TRAF6 и TAK1 соответственно, и это взаимодействие усиливает связывание TRAF6 и TAK137. При передаче сигналов TLR4, индуцированной LPS, PRDX не позволяют TRAF6 рекрутировать ECSIT для доставки убиквитиновой цепи K63, а также ингибируют BECN1, активированный TRAF6 в пути аутофагии38. MST4 активирует фосфорилирование TRAF6 по Thr463 и Thr486 и ингибирует димеризацию и убиквитинирование TRAF639. У млекопитающих механизм регуляции белка TRAF6 широко изучен в области антибактериального и противовирусного иммунитета. Однако исследования TRAF6 у низших позвоночных менее изучены. Иммунный ответ у костистых рыб в основном зависит от путей TLR и RLR для реализации иммунного ответа после заражения патогеном. Поэтому крайне важно изучить механизм регуляции сигнальных путей, опосредованных TRAF6-. кальпаин2 (м-кальпаин) представляет собой семейство кальций-зависимых протеаз, состоящее из более чем 16 членов у млекопитающих и многих других организмов40. Самое раннее исследование семейства белков кальпаина связано с движением клеток41. кальпаин способствует миграции клеток и, как было обнаружено, ингибирует миграцию нейтрофилов и активацию p38 MAPK и ERK MAPK42. Активность гидролазы является одной из важных функций кальпаина. В иммунной регуляции кальпаин-2 способствует высвобождению NF-κB путем гидролиза IkB и активирует сигнальный путь43. В этом исследовании мы определили, что кальпаин2а взаимодействует с TRAF6 и действует как негативный регулятор антибактериальных и противовирусных реакций у костистых рыб, горбыля (Miichthys miiuy). Calpain2a способствует снижению уровня белка TRAF6 за счет его гидролазной активности. Между тем, мутантный кальпаин2а, лишенный гидролазной активности, ингибирует образование убиквитиновой цепи K63 путем ингибирования димера TRAF6. Отражено, что как кальпаин2а, так и мутантный кальпаин2а прекращают убиквитинирование TRAF6 до ECSIT/BENC1/IRF3/IRF7. Calpain2a останавливает процесс передачи сигналов NF-κB и IFN, нацеливаясь на TRAF6. Наши результаты предоставляют молекулу для изучения TRAF6-опосредованной иммунной регуляции у низших позвоночных.
Полученные результаты
кальпаин2а взаимодействует с TRAF6 и отрицательно регулирует передачу сигналов NF-κB.
Чтобы получить представление о белках, связанных с TRAF6-, в реакции врожденного иммунитета у костистых рыб, мы охарактеризовали интерактом TRAF6 горбыля с помощью аффинной очистки и масс-спектрометрии. Отсортировав по интенсивности количественного анализа без меток (LFQ), мы перехватили часть данных и отобразили ее (рис. 1а). Среди белков, связанных с TRAF6-, кальпаин2a может регулировать активность TRAF6 и влиять на TRAF6--опосредованные сигнальные пути. Во-первых, необходимо исследовать взаимосвязь между кальпаином2а и TRAF6 на уровне белка, мы проверили взаимодействие кальпаина2а с TRAF6 в клеточных линиях почек горбыля Miiuy (МКС). Эксперименты по эндогенной коиммунопреципитации показали, что кальпаин2а взаимодействует с TRAF6 (рис. 1б, в). Как показали эксперименты по транзиторной трансфекции и коиммунопреципитации, сверхэкспрессированные кальпаин2а и TRAF6 взаимодействовали друг с другом (рис. 1d, e). Все это указывает на то, что кальпаин2а взаимодействует с TRAF6, и необходимы дальнейшие эксперименты для изучения механизма их действия. Благодаря множественному выравниванию последовательностей белков кальпаин2а человека, мыши, рыбки данио и горбыля, кальпаин2а эволюционно консервативен между рыбами и млекопитающими (рис. 1f). Чтобы определить функцию кальпаина2а во врожденном иммунитете, мы исследовали, связан ли кальпаин2а с активацией NF-κB, индуцированной стимуляцией ЛПС. Мы трансфицировали клетки папулезной эпителиомы карпового (EPC) репортером люциферазы NF-κB, репортером люциферазы внутреннего контроля renilla и вектором, кодирующим кальпаин2а, или пустым вектором. кальпаин2а существенно снижал репортерную активность NF-κB при стимуляции ЛПС дозозависимым образом (рис. 1g). Более того, провоспалительные цитокины, такие как IL-1 и промотор IL-8, реагирующие на стимуляцию LPS, были заметно снижены в клетках EPC со сверхэкспрессией кальпаина2а (рис. 1h, i), что указывает на потенциальную роль кальпаина2а в передаче воспалительных сигналов. пути, индуцированные стимуляцией ЛПС.

цистанхе трубчатой – улучшает иммунную систему
Нажмите здесь, чтобы просмотреть продукты Cistanche Enhance Immunity
【Запросить дополнительную информацию】 Электронная почта:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
Негативная регуляция LPS-индуцированной передачи сигналов NF-κB с помощью кальпаина2а.
Чтобы исследовать потенциальную роль кальпаина2а в передаче сигналов NF-κB, мы трансфицировали кальпаин2а в MKC с временным градиентом ЛПС и оценили провоспалительные цитокины, реагирующие на ЛПС. Сверхэкспрессия кальпаина2а приводила к снижению экспрессии IL-1, IL-8 и IL-6 (рис. 2а). Затем мы разработали две кальпаин2а-специфичные малые интерферирующие РНК (миРНК), которые эффективно подавляли кальпаин2а (рис. 2b, d). Нокдаун кальпаина2а значительно усиливал LPS-индуцированные провоспалительные цитокины, включая IL-1 и IL-8, в клеточных линиях кишечника MKC и Miiuy croaker (MIC) (рис. 2c, e). В группе клеток, стимулированных ЛПС, нокдаун кальпаина2а усиливал пролиферацию клеток. Аналогично, в отсутствие какой-либо стимуляции мы обнаружили, что нокдаун кальпаина2а также усиливает пролиферацию клеток (рис. 2f). Чтобы определить, ингибирует ли кальпаин2а белки в передаче сигналов NF-κB, индуцированной ЛПС, кальпаин2а заметно ингибировал уровень эндогенного белка TRAF6, но не MyD88, IRAK4 или TAK1 (рис. 2g). Таким образом, кинетика экспрессии кальпаина2а и провоспалительных цитокинов предполагает функциональное участие кальпаина2а в LPS-индуцированной передаче сигналов NF-κB.
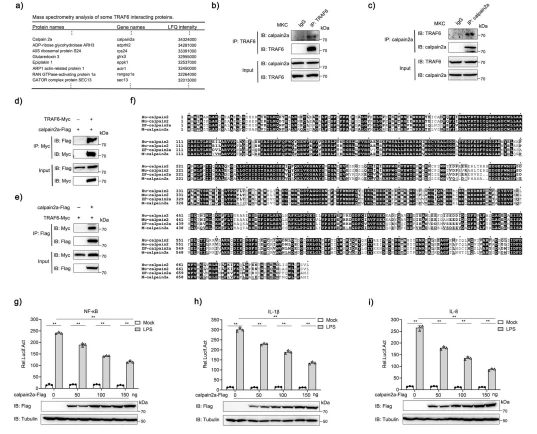
Рис. 1. Кальпаин2а взаимодействует с TRAF6 и ингибирует сигнальный путь NF-κB. Список интерактомов TRAF6 на основе интенсивности количественного определения без меток (раздел). б, в Клетки MKC, высеянные в чашки площадью 6 см2. Через 24 часа клеточные лизаты подвергали иммунопреципитации (ИП) с помощью аффинных гелей против TRAF6 или против кальпаина2а. Затем иммунопреципитаты и клеточные лизаты анализировали с помощью IB с антителами против TRAF6 и против кальпаина2a соответственно. d, e Клетки HEK 293, высеянные в чашки площадью 6 см2, трансфицировали плазмидами Calpain2a-Flag и TRAF6-Myc (2 мкг каждая). Через 24 часа клеточные лизаты подвергали иммунопреципитации (ИП) с помощью аффинных гелей против Myc d или против Flag e. Затем иммунопреципитаты и клеточные лизаты анализировали с помощью IB с антителами против Myc и против Flag соответственно. f Одни и те же аминокислоты среди кальпаина 2а человека (Hu-calpain2), кальпаина 2а мыши (Mu-calpain2), кальпаина 2a рыбки данио (ZF-calpain2a) и кальпаина 2a горбыля (M-calpain2a) выделены черным фоном. Клетки g–I EPC трансфицировали Calpain2a-Flag или пустым вектором вместе с репортерами люциферазы NF-κB, IL-1 и IL-8. Через 24 часа после трансфекции клетки не обрабатывали (макет) или обрабатывали ЛПС в течение 6 часов. Значение активности люциферазы достигалось по отношению к активности люциферазы Renilla (n=3 на группу). Вестерн-блот-анализ использовали для измерения экспрессии временно трансфицированного флага кальпаина2а. Экспрессию тубулина использовали в качестве контроля нагрузки. Данные анализировали с помощью двустороннего дисперсионного анализа (g, h, i). **p < 0.01. Все эксперименты проводились как минимум в трех независимых экспериментах.
Взаимодействие кальпаина2а с TRAF6.
Анализ доменов проводился с использованием базы данных консервативных доменов (CDD) NCBI. Calpain2a состоит из трех доменов: домена цистеиновой протеазы семейства Calpain (CysPc) (аа 46-339), центрального домена большой субъединицы Calpain III (аа 360-499) и C-концевого ручного домена Penta-EF ( аа 500-697). Чтобы определить, какой домен(ы) кальпаина2а необходим для его взаимодействия с TRAF6, мы создали три усеченных мутанта: кальпаин2а (1-339), кальпаин2а (340-697) и кальпаин (500-697). (рис. 3а). Клетки HEK293 трансфицировали кальпаин2а-Flag дикого типа (WT), усеченными мутантами кальпаин2а-Flag или вектором TRAF6-HA. Мы обнаружили, что как полноразмерный кальпаин2а, так и три усеченных мутанта могут взаимодействовать с TRAF6 (рис. 3в). TRAF6 состоит из C-концевого домена TRAF, спирального домена, домена цинковых пальцев и домена безымянного пальца38. Чтобы изучить, какой домен(ы) TRAF6 необходим для его взаимодействия с кальпаином2a, мы создали серию усеченных мутантов TRAF6, включая TRAF6 (1-139), TRAF6 (140-574), TRAF6 ({{36) }}) и TRAF6 (400-574). Тем временем мы создали мутанты домена: TRAF6ΔRing (в котором удален домен безымянного пальца), TRAF6ΔZF (в котором удален домен цинковых пальцев), TRAF6ΔCC (в котором удален домен витой спирали) и TRAF6ΔTRAF-C ( в котором удален С-концевой домен TRAF) (рис. 3б). Calpain2a взаимодействовал с полноразмерным TRAF6, а также с усеченными TRAF6, которые содержали C-концевой домен TRAF, спирально-спиральный домен, домен цинковых пальцев (рис. 3d, f), но не с доменом безымянного пальца (рис. 3e). . Анализы люциферазы показали, что сверхэкспрессия кальпаина2а и этих усеченных мутантов значительно ингибирует репортерную активность NF-κB и IL-1 в клетках EPC (рис. 3h). Кроме того, были исследованы субклеточные колокализации кальпаина2а с TRAF6. Мы трансфицировали клетки EPC TRAF6-GFP и пустым вектором или Calpain2a-mCherry. Анализ конфокальной микроскопии показал, что зеленые сигналы TRAF6 перекрываются с красными сигналами кальпаина2а, что указывает на то, что кальпаин2а локализуется совместно с TRAF6 в клетках EPC (рис. 3i, j). Эти данные указывают на то, что структурная основа нескольких доменов TRAF6 (C-концевой домен TRAF, спиральный домен, домен цинковых пальцев), но не домена безымянного пальца, является определяющим для его ассоциации с кальпаином2a (рис. 3g).
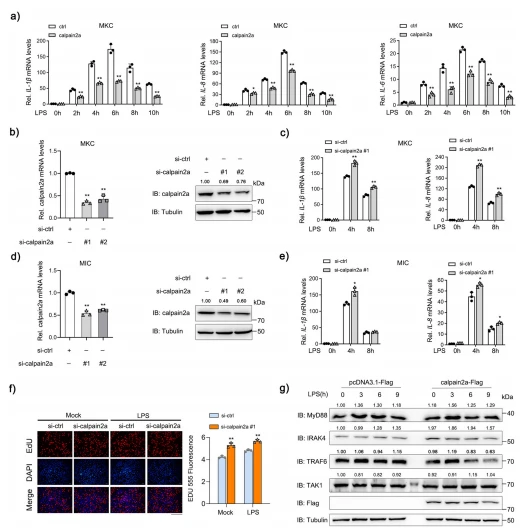
Рис. 2. Calpain2a отрицательно регулирует LPS-индуцированный сигнальный путь NF-κB. мРНК IL-1, IL-8 и IL-6 в MKC, трансдуцированную с помощью Calpain2a-Flag или пустого вектора и обработанную физиологическим раствором (0) или подвергнутую воздействию LPS для различных раз (2 ч, 4 ч, 6 ч, 8 ч, 10 ч) (n=3 на группу). b, d Клетки MKC и клетки MIC трансфицировали si-calpain2a #1 и si-calpain2a #2 (100 нМ) или si-ctrl (100 нМ). Через 48 часов после трансфекции экспрессию кальпаина2а измеряли с помощью qRT-ПЦР (n=3 на группу). Уровень белка кальпаин2а определяли методом вестерн-блоттинга. c, e мРНК IL-1, IL-8 в MKC и MIC, стабильно трансдуцированные si-calpain2a #1 или si-ctrl (контрольный вектор) и обработанные физиологическим раствором (0) или обработанные LPS для различных раз (4 часа, 8 часов) (n=3 на группу). f Клетки MKC трансфицировали либо si-ctrl, либо si-calpain2a #1. Через 36 часов после трансфекции клетки стимулировали ЛПС в течение 12 часов, затем измеряли анализ пролиферации клеток (n=3 на группу). Масштабная линейка, 100 мкм. g-calpain2a-Flag трансфицировали в клетки MKC, которые подвергали воздействию LPS в разное время (3 часа, 6 часов, 9 часов). Иммуноблот-анализ клеточных лизатов с указанными антителами. Относительный уровень мРНК нормировали по экспрессии гена, кодирующего -актин, в каждом образце. Все эксперименты проводились как минимум в трех независимых экспериментах. Данные анализировали с помощью двухфакторного дисперсионного анализа (а, в, д, е) или однофакторного дисперсионного анализа (б, г). *p < 0,05, **p < 0,01.

Рис. 3. Взаимодействие кальпаина2а с TRAF6. а, б. В работе использовали схематические диаграммы организации доменов у горбыля Calpain2a, TRAF6 и мутантов. «+» представляет взаимодействие с TRAF6 или кальпаином 2а, «-» означает отсутствие взаимодействия. c Клетки HEK293 трансфицировали ложными мутантами Calpain2a-Flag дикого типа (WT) и усеченными мутантами Calpain2a-Flag или TRAF6-HA, как указано. Через 24 часа после трансфекции трансфицированные клетки экстрагировали и клеточные лизаты подвергали иммунопреципитации с антителом против НА, а затем ИБ с использованием антитела против НА или против Flag. Клетки d–f HEK293 трансфицировали макетом, TRAF6-HA дикого типа (WT) и укороченными мутантами TRAF6-HA или кальпаин2а-Flag, как указано. Через 24 часа после трансфекции трансфицированные клетки экстрагировали и клеточные лизаты подвергали иммунопреципитации с антителом против HA d, f или антителом против Flag e с последующей IB с использованием антитела против HA или против Flag. g Место взаимодействия TRAF6 и кальпаина2а. Клетки h EPC трансфицировали TRAF6-HA, кальпаин2а-Flag или укороченными мутантами кальпаин2а-Flag вместе с репортерами люциферазы NF-κB и IL-1. Через 36 часов после трансфекции значение активности люциферазы достигалось по отношению к активности люциферазы рениллы (n=3 на группу). Клетки EPC трансфицировали макетом, Calpain2a-mCherry и TRAF6-GFP. Ядра, окрашенные DAPI, показаны синим цветом. кальпаин2а обнаруживался по красной флуоресценции, а TRAF6 - по зеленой флуоресценции. Масштабная линейка, 10 мкм. Все эксперименты проводились как минимум в трех независимых экспериментах. Данные анализировали с помощью однофакторного дисперсионного анализа (h). **р < 0,01.
кальпаин2а ингибирует уровень экспрессии белка TRAF6 за счет протеолитической активности.
Чтобы изучить механизм регуляции кальпаина2а на TRAF6, мы сначала проверили, оказывает ли кальпаин2а влияние на TRAF6 на уровне белка. Calpain2a-Myc и TRAF6-Flag совместно трансфицировали в клетки EPC, уровень белка TRAF6 частично снижался через 30 часов (рис. 4а). Как показано на рис. 4b, кальпаин2а способствует деградации TRAF6 дозозависимым образом. В присутствии кальпаина2а он не влиял на уровень мРНК TRAF6, что указывает на то, что кальпаин2а влияет только на уровень белка TRAF6. Между тем, анализ ингибитора циклогексимида (CHX) показал, что кальпаин2а может ускорять период полувыведения белка TRAF6 (рис. 4c). Сверхэкспрессия кальпаина2а в клетках MKC приводила к дестабилизации эндогенного TRAF6 (рис. 4г). Чтобы выяснить, зависит ли деградация TRAF6, опосредованная кальпаином 2а, от убиквитин-протеасомных, аутофагосомных, лизосомальных или других путей, клетки EPC обрабатывали реагентами, ингибирующими эти пути: MG132, 3-MA и NH4Cl. Однако кальпаин2а-опосредованная дестабилизация TRAF6 не была обращена вспять протеасомным ингибитором MG132, ингибитором аутофагии 3-MA или лизосомальным ингибитором NH4Cl (рис. 4e). Далее клетки ЭПК обрабатывали реагентами: Е-64 (ингибитор кальпаина, инактивирующий активность кальпаингидролазы) и PMSF (неспецифический ингибитор сериновой протеазы). Мы обнаружили, что ингибитор кальпаина E-64 предотвращает деградацию на уровне белка TRAF6 (рис. 4f). Как показано на рис. 4g, E-64 также обращает вспять деградацию уровней эндогенного белка TRAF6 под действием кальпаина2а.

Рис. 4. Кальпаин2а ингибирует экспрессию белка TRAF6. a Эксперимент по временному градиенту пустых векторов или плазмид Calpain2a-Myc вместе с флагом TRAF6- проводился в клетках EPC. Клеточные лизаты подвергали ИБ с использованием антител против Myc, анти-Flag и анти-тубулина. РНК экстрагировали из клеток и подвергали обратной транскрипции, а затем TRAF6 и актин амплифицировали с помощью ПЦР-праймеров. b Клетки EPC высевали в 12-луночные планшеты на ночь и совместно трансфицировали TRAF6-Flag и кальпаином2a-Myc (0.3, 0.6 или {{ 18}}.9 мкг) в течение 48 ч. Экспрессию белков TRAF6-Flag и Calpain2a-Myc определяли с помощью вестерн-блоттинга. РНК экстрагировали из клеток и подвергали обратной транскрипции, затем TRAF6 и актин амплифицировали с помощью ПЦР-праймеров. c Calpain2a-Myc или пустые векторы совместно трансфицировали TRAF6-Flag в клетки EPC. Через 36 часов после трансфекции трансфицированные клетки обрабатывали циклогексимидом (ЦГХ) в течение 2 или 4 часов. d Клетки MKC трансфицировали Calpain2a-Flag или пустыми векторами. Через 48 часов после трансфекции клеточные лизаты подвергали ИБ с антителами против TRAF6, анти-Flag и анти-тубулину. e, f Клетки EPC трансфицировали указанными плазмидами в присутствии или в отсутствие MG132, 3-MA, NH4CL, E-64 (50 или 75 мкМ) или PMSF в течение 6 за час до проведения иммуноблот-анализа. g клеток MKC трансфицировали кальпаином 2a-Flag в присутствии или в отсутствие E{{50}} (50 или 75 мкМ) в течение 6 часов перед проведением иммуноблот-анализа. h Calpain2a-Flag и Calpain2a-ΔCysPc-Flag совместно трансфицировали TRAF6-HA в клетки EPC. Через 48 часов после трансфекции клеточные лизаты подвергали ИБ с указанными антителами. I кальпаин2а-Flag и кальпаин2а-ΔCysPc-Flag котрансфицировали в клетки MKC. Через 48 часов после трансфекции клеточные лизаты подвергали ИБ с антителами против TRAF6, анти-Flag и анти-тубулину. j мРНК IL-1, IL-8 в MKC, стабильно трансдуцированная с помощью Calpain2a-Flag и Calpain2a-ΔCysPc-Flag и обработанная физиологическим раствором (0) или обработанная LPS в течение 4 часов (n=3 за группу). Относительный уровень мРНК нормировали по экспрессии гена, кодирующего -актин, в каждом образце. Все эксперименты проводились как минимум в трех независимых экспериментах. Данные анализировали с помощью двустороннего дисперсионного анализа (j). **р < 0,01.
Определить, зависит ли деградация TRAF6 от гидролазной активности кальпаина2а. Воспользовавшись предыдущими структурными и биохимическими исследованиями кальпаина 2а у млекопитающих, мы мутировали остатки цистеина, гистидина и аспарагина кальпаина 2а в аланин (кальпаин 2а C105A, H262A, N286A и 3 A), который потерял координацию каталитической триады44–46. Мы заметили, что эта мутация не повлияла на деградацию TRAF6 (дополнительная рис. 1a). Итак, мы мутировали протеазный домен, который представляет собой домен цистеиновой протеазы семейства Calpain (CysPc) кальпаина2а (обозначенный как кальпаин2а-ΔCysPc). Кальпаин2а-ΔCysPc не влияет ни на сверхэкспрессированный TRAF6, ни на эндогенный TRAF6 (рис. 4h, i). Однако провоспалительные цитокины IL-1 и IL-8 одновременно подвергаются воздействию дикого типа или мутированного кальпаина 2a при стимуляции ЛПС (рис. 4j). Мутантный кальпаин2а, лишенный гидролазной активности, не влияет на уровень белка TRAF6, но мутантный кальпаин2а, лишенный гидролазной активности, все же влияет на экспрессию нижестоящих провоспалительных цитокинов. Это послужило толчком к нашему исследованию потенциальных механизмов, с помощью которых кальпаин2а регулирует TRAF6. В совокупности эти результаты показывают, что кальпаин2а регулирует передачу сигналов NF-κB путем подавления экспрессии уровней белка TRAF6 посредством его активности кальпаингидролазы.
кальпаин2а ингибирует активность убиквитинлигазы TRAF6.
Затем мы исследовали молекулярные механизмы, с помощью которых кальпаин2а отрицательно регулирует TRAF6-активируемую передачу сигналов NF-κB, и модулирует ли взаимодействие кальпаина2а с TRAF6 после потери ферментативной активности его активность убиквитинлигазы. Мы обработали клетки MKC LPS, а затем иммунопреципитировали TRAF6. Анализ убиквитинирования с очищенными рекомбинантными белками подтвердил, что кальпаин2а и кальпаин2а-ΔCysPc снижают убиквитинирование TRAF6 (рис. 5а). Как показано на рис. 5b, c, как кальпаин2а, так и кальпаин2а-ΔCysPc значительно снижают количество убиквитинированных белков TRAF6 WT и K63. Градиенты концентрации кальпаина2а и кальпаина2а-ΔCysPc снижали убиквитинированные белки TRAF6 WT и K63 дозозависимым образом. Calpain2a-ΔCysPc по-прежнему предотвращал агрегацию убиквитиновой цепи K63 TRAF6, не влияя на уровень белка TRAF6 (рис. 5d, e). Затем мы трансфицировали клетки MKC для экспрессии TRAF6, меченного Myc, в присутствии или в отсутствие меченного Flag кальпаина2a-ΔCysPc, затем провели эксперименты по иммунопреципитации с антителом против Myc и проанализировали с помощью иммуноблота с анти-UB. Такое убиквитинирование TRAF6 существенно ослаблялось кальпаином 2a-ΔCysPc (рис. 5f). Стимулируемый LPS, TRAF6 доставляет K63-связанную цепь убиквитина к TAK1, которая стимулирует аутофосфорилирование TAK1 и активирует NF-κB18. Белки убиквитина WT и K63 TAK1 были значительно усилены в присутствии TRAF6, тогда как связанное с TAK1- убиквитинирование ингибировалось в присутствии кальпаина2a-ΔCysPc (рис. 5g, h). Эти данные подтверждают, что мутантный кальпаин2а, лишенный гидролазной активности, аналогичным образом ингибирует активность убиквитинлигазы TRAF6, не влияя на уровни белка TRAF6.

Преимущества цистанхе трубчатой-укрепить иммунную систему
кальпаин2а ингибирует гомоолигомеризацию TRAF6.
Цепь убиквитина Lys63, синтезируемая TRAF6, играет ключевую роль в передаче сигнала. Сообщалось, что димеризация TRAF6 необходима для синтеза его убиквитиновой цепи16. Модель димеризации тесно связана с комбинацией Ubc13, вызывающей убиквитинирование K6316,30. Чтобы проверить, может ли TRAF6 рыб образовывать димеры, мы использовали плазмиды TRAF6 с различными метками: TRAF6 с Myc-тегом и TRAF6 с меткой HA для экспериментов по совместному IP. IP-анализ проводили с использованием антитела против HA, HATRAF6, взаимодействующего с Myc-TRAF6 (рис. 6а). Чтобы изучить ингибирующий эффект кальпаина2а во взаимодействии димера TRAF6-, кальпаин2а, меченный флагом, TRAF6, меченный HA, и TRAF6, меченный Myc, временно экспрессировали в клетках HEK293. Как и ожидалось, взаимодействие димера TRAF6- уменьшалось в присутствии кальпаина2а (рис. 6б). В то же время, чтобы избежать деградации TRAF6 кальпаином 2а. Мы трансфицировали меченный Flag-меченным кальпаин2а-ΔCysPc и обнаружили, что взаимодействие димеров TRAF6- постепенно уменьшалось в присутствии кальпаина2а-ΔCysPc (рис. 6c). Как показано на рис. 6d, e, мы обнаружили, что HA-TRAF6 усиливает WT и убиквитинирование K63 Myc-TRAF6. Хотя клетки HEK293 были совместно трансфицированы кальпаином 2а и кальпаином 2а-ΔCysPc, усиленное убиквитинирование подавлялось. Эти результаты позволяют предположить, что как кальпаин2а дикого типа, так и мутантный кальпаин2а, лишенный гидролазной активности, ингибируют гомоолигомеризацию и аутоубиквитинирование TRAF6.
кальпаин2а ингибирует доставку убиквитинирования TRAF6 в ECSIT и BECN1.
Как показано на рис. 5d, мы обнаружили, что кальпаин2а вмешивается в процесс убиквитилирования от TRAF6 до TAK1. Сообщалось, что ECSIT действует как адаптерный белок TAK1 и TRAF6, стимулируя передачу сигналов NF-κB посредством стимуляции LPS37. Чтобы проверить, обладает ли ECSIT упомянутыми функциями у костистых рыб, мы выполнили множественное выравнивание последовательностей белков ECSIT у человека, мыши и горбыля (дополнительный рисунок 1b). Мы трансфицировали клетки EPC репортером люциферазы NF-κB, ECSIT значительно повышал репортерную активность NF-κB после стимуляции LPS (дополнительный рисунок 1c). Чрезмерная экспрессия ECSIT в клетках MKC привела к повышению уровня мРНК TNF- (дополнительный рисунок 1d). После трансфекции рыб ECSIT и TRAF6 в клетки HEK293 мы обнаружили, что TRAF6 взаимодействует с ECIST (рис. 7а). Аналогичным образом, ECSIT и TAK1 были котрансфицированы, и эти два белка также поддерживали взаимодействие (рис. 7b). Впоследствии, чтобы проверить, ингибирует ли кальпаин2а-ΔCysPc образование комплекса TRAF6-ECSIT, мы трансфицировали три плазмиды в клетки HEK293 и обнаружили, что кальпаин2а-ΔCysPc предотвращает образование комплекса TRAF6-ECSIT (рис. 7c). ). Проверить процесс передачи цепи убиквитина в передаче сигналов NF-κB. Как показано на рис. 7d, TRAF6 может способствовать убиквитинированию ECSIT; как и ожидалось, кальпаин2а-ΔCysPc ингибировал процесс, посредством которого TRAF6 передавал цепь убиквитина в ECSIT. BECN1 является важным белком в аутофагии, индуцированной ЛПС. Было подтверждено, что убиквитинирование K63 может модифицировать и активировать BECN1. Деубиквитинирующий фермент A20 удаляет убиквитинирование BECN1 и ингибирует аутофагию, вызванную LPS, а TRAF6 является лигазой E3, ответственной за убиквитинирование BECN1 в этом сигнале47. Как показано на рис. 7e, TRAF6 взаимодействовал с BECN1 и способствовал убиквитинированию BECN1. Затем мы трансфицировали BECN1, TRAF6, кальпаин2а и кальпаин2а-ΔCysPc в клетки HEK293, TRAF6 способствовал убиквитинированию BECN1. Calpain2a-ΔCysPc ингибировал процесс, посредством которого TRAF6 передавал цепь убиквитина на BECN1 (рис. 7f). Эти результаты позволяют предположить, что кальпаин2а дикого типа и мутантный кальпаин2а, лишенный гидролазной активности, ингибируют способность TRAF6 к убиквитинированию при LPS-индуцированной аутофагии и передаче сигналов NF-κB.
Негативная регуляция противовирусного ответа кальпаином 2а.
В пути RLR TRAF6 действует как лигаза E3, рекрутируемая MAVS для активации NF-κB, продукции IFN и цитокинов. Затем мы исследовали, играет ли кальпаин2а роль в предотвращении TRAF6 в противовирусном процессе, опосредованном IFN. В клетках EPC были экспрессированы репортеры люциферазы, управляемые промотором IFN-1, ISRE и IRF3. Мы обнаружили, что кальпаин2а существенно снижает активность люциферазы, управляемую промотором, дозозависимым образом при стимуляции Ploy (I: C) и Siniperca обманывает инфекцию рабдовируса (SCRV) (рис. 8a, b). Нокдаун кальпаина2а значительно усиливал экспрессию генов, запускаемую Ploy(I: C) и SCRV, включая Viperin, Mx1 и ISG15 (рис. 8c, d). Нокдаун кальпаина2а приводил к более высокой экспрессии жизнеспособности клеток при инфекции SCRV в клетках MKC (рис. 8e). Как показано на рис. 8f, анализы пролиферации клеток показали, что нокдаун кальпаина2а усиливает пролиферацию клеток при инфекции SCRV. Сверхэкспрессия кальпаина2а резко способствовала распространению вируса, о чем свидетельствует репликация вируса после заражения SCRV (рис. 8g). Calpain2a и Calpain2a-ΔCysPc существенно снижали количество репортеров люциферазы, управляемых промоторами IFN-1, ISRE и IRF3, при стимуляции Ploy (I:C) и инфекции SCRV (дополнительные рис. 2a, b). Эти результаты позволяют предположить, что кальпаин2а может отрицательно регулировать сигнальный путь RLR посредством ингибирования TRAF6, тем самым ингибируя активацию IFN.

Рис. 5. Кальпаин2а ингибирует активность убиквитинлигазы TRAF6. a Убиквитинирование эндогенного TRAF6 в клетках MKC, трансдуцированных с помощью Calpain2a-Flag и Calpain2a-ΔCysPc-Flag и не подвергнутых воздействию (-) или зараженных LPS (+), оцененное с помощью иммуноблот-анализа с анти-убиквитином после иммунопреципитации с анти-TRAF6 и входного иммуноблот-анализа с указанным Абс. b, c Клетки HEK293 котрансфицировали TRAF6-HA и WT-убиквитин-His или K63O убиквитин-His (в котором сохраняется только лизин 63) вместе с кальпаином 2а-Flag, кальпаином 2а-ΔCysPc-Flag или пустым вектором. Через 24 часа после трансфекции клетки лизировали и очищали Ni-NTA-агарозой. d, e Клетки HEK293 котрансфицировали TRAF{{30}}HA и WT-убиквитин-His или K63O-убиквитин-His (в котором сохраняется только лизин 63) вместе с кальпаином2a-Flag ({{45 }}.5 мкг, 1 мкг), кальпаин2а-ΔCysPc-Flag (0,5 мкг, 1 мкг) или пустой вектор. Через 24 часа после трансфекции клетки лизировали и очищали Ni-NTA-агарозой. f Убиквитинирование сверхэкспрессированного TRAF6 в клетках MKC, трансдуцированных с помощью Calpain2a-ΔCysPc-Flag, оцениваемое с помощью иммуноблот-анализа с анти-убиквитином после иммунопреципитации с анти-Myc и ввода иммуноблот-анализа с указанными антителами. g, h Клетки HEK293 котрансфицировали TAK1-Myc, TRAF6-HA и WT-убиквитин-His или K63O-убиквитин-His (в котором сохраняется только лизин 63) вместе с кальпаином2a-Flag. , Calpain2a-ΔCysPc-Flag или пустой вектор. Через 24 часа после трансфекции клетки лизировали и очищали Ni-NTA-агарозой. Все иммунопреципитаты и входной иммуноблот-анализ с использованием антител против Myc, анти-Flag, анти-HA и анти-тубулина. Все эксперименты проводились как минимум в трех независимых экспериментах.
кальпаин2а подавляет убиквитинирование IRF3 и IRF7 из TRAF6.
Сообщается, что в противовирусном сигнале, запускаемом комплексом MAVS-TRAF3/6, активность TRAF6 необходима для активации IRF3 и NF-κB48. Как показано на рис. 9a, b, TRAF6 способствует WT и K63-связанному убиквитинированию IRF3, и это усиление ингибируется экспрессией Calpain2a-ΔCysPc. Между тем, когда вирус запускает TLR-зависимый сигнальный сигнал, TRAF6 тесно связан с IRF7 и способствует убиквитинированию IRF7 вместе с активацией противовирусных факторов22,49,50. TRAF6 способствует WT и K63-связанному убиквитинированию IRF7, и это усиление ингибируется экспрессией кальпаина2а-ΔCysPc (рис. 9c, d). Эти данные позволяют предположить, что кальпаин2а дикого типа и мутантный кальпаин2а, лишенный гидролазной активности, ингибируют TRAF6-опосредованное убиквитинирование IRF3 и IRF7.
Обсуждение
TRAF6 является одним из семи членов семейства факторов, связанных с рецептором фактора некроза опухоли (TNF) (TRAF), который был идентифицирован как адаптер сигнала и осуществляет передачу сигнала51,52. Семейство TRAF содержит домен безымянного пальца, которому принадлежит активность лигазы E3. Лигазы E3 с доменом HECT способствуют полиубиквитинированию субстрата, а E3 с доменом Ring требуют E2~ub для передачи полиубиквитинирования53,54. Было подтверждено, что димерный Ub-связывающий фермент Ubc13/Uev1A участвует в агрегации полиубиквитинирования TRAF616. Пока K124 мышиного TRAF6 нокаутирован, TRAF6 потеряет активность автоубиквитинирования K63, а мутация в этом сайте устраняет убиквитинирование TRAF6-опосредованного NEMO и активацию TAK1, IKK и NF-κB55. . Это точно, потому что PRDX1 связывается с доменом кольцевого пальца TRAF6, содержащимся в K124, и устраняет убиквитинирование TRAF638. Сообщалось, что убиквитинирование TRAF6 тесно связано с димеризацией его N-концевого домена (домен безымянного пальца и пальца ZF). Множественные N-концевые сайты взаимодействия с Ubc13 были мутированы, и Ubc13 не мог передавать поли-ub к TRAF616. Взаимодействие между мутантами кальпаина2а и TRAF6 показало, что большинство доменов TRAF6 взаимодействовали с кальпаином2а, за исключением домена безымянного пальца. Из-за взаимодействия между кальпаином2а и доменом пальцев ZF TRAF6 мы предположили, что кальпаин2а может ингибировать аутоубиквитинирование, блокируя димеризацию TRAF6. Впоследствии мы проверили взаимодействие разных тегов TRAF6. По мере увеличения экспрессии мутантного кальпаина2а, лишенного гидролазной активности, взаимодействие различных меток TRAF6 ослаблялось. TRAF6, меченный HA, способствует убиквитинированию TRAF6, меченного Myc, а мутантный кальпаин2а ингибирует убиквитинирование, усиленное TRAF6, меченным HA. В качестве промежуточного продукта в процессе передачи сигнала TRAF6-TAK1 ECSIT связывается с C-концевым доменом TRAF6 (домен CC и домен TRAF-C) и, как подтверждено, участвует в передаче сигналов NF-κB37. Экспрессия провоспалительных цитокинов снижалась в клетках ECSITKD THP-1. Однако после сверхэкспрессии ECSIT в клетках ECSITKD THP-1 количество таких генов, как IRF7, IL-1 и CD44, значительно увеличилось37. PRDX1 связывается с доменом безымянного пальца TRAF6 и ингибирует убиквитинирование ECSIT и BECN1 в NF-κB и сигнализирует аутофагию, ингибируя образование полиубиквитинирования TRAF638. У костистых рыб мы подтвердили, что ECSIT активирует сигнальный путь NF-κB, взаимодействует с TRAF6 и TAK1 соответственно и передает полиубиквитиновую цепь, продуцируемую TRAF6. Calpain2a связывался с доменом ZF, доменом CC и доменом TRAF-C TRAF6, что ингибировало взаимодействие TRAF6-ECSIT. Мы подтвердили, что мутантный кальпаин2а, лишенный гидролазной активности, предотвращает движение полиубиквитиновой цепи от TRAF6 к ECSIT и BECN1.

Рис. 6. Кальпаин2а ослабляет аутоубиквитинирование TRAF6. Клетки HEK293 трансфицировали TRAF6-Myc, TRAF6-HA или пустым вектором. Через 24 часа после трансфекции клетки лизировали и IP анализировали с помощью антитела НА. b Клетки HEK293 трансфицировали TRAF6-Myc, TRAF6-HA, пустым вектором или кальпаин2а-Flag. Через 24 часа после трансфекции клетки лизировали и IP анализировали с помощью антитела НА. c Клетки HEK293 трансфицировали TRAF6-Myc, TRAF6-HA, пустым вектором или различными концентрациями кальпаина2а-ΔCysPc-Flag. Через 24 часа после трансфекции клетки лизировали и IP анализировали с помощью антитела НА. d, e Клетки HEK293 котрансфицировали TRAF6-Myc, TRAF6-HA и WT-убиквитин-His или K63O-убиквитин-His (в котором сохраняется только лизин 63) вместе с кальпаином2a-Flag. , Calpain2a-ΔCysPc-Flag или пустой вектор. Через 24 часа после трансфекции клетки лизировали и очищали Ni-NTA-агарозой. Иммунопреципитаты и входной иммуноблот-анализ с использованием антител против Myc, анти-Flag, анти-HA и анти-тубулина. Все эксперименты проводились как минимум в трех независимых экспериментах.
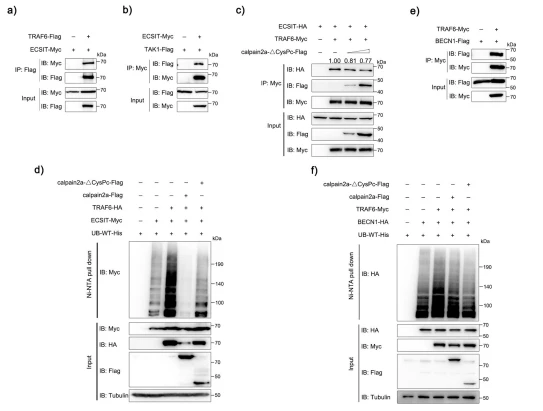
Рис. 7. Calpain2a ингибирует TRAF6-опосредованное убиквитинирование ECSIT и BECN1. Клетки HEK293 трансфицировали ECSIT-Myc, TRAF6-Flag или пустым вектором. Через 24 часа после трансфекции клетки лизировали и IP анализировали с помощью Flag-антитела. b Клетки HEK293 трансфицировали TAK1-Flag, ECSIT-Myc или пустым вектором. Через 24 часа после трансфекции клетки лизировали и IP анализировали с помощью антитела Myc. c Клетки HEK293 трансфицировали TRAF6-Myc, ECSIT-HA, пустым вектором или различными концентрациями кальпаина2а-ΔCysPc-Flag. Через 24 часа после трансфекции клетки лизировали и IP анализировали с помощью антитела Myc. Клетки d HEK293 котрансфицировали ECSIT-Myc, TRAF6-HA, WT-убиквитином-His вместе с кальпаин2а-Flag, кальпаин2а-ΔCysPc-Flag или пустым вектором. Через 24 часа после трансфекции клетки лизировали и очищали Ni-NTA-агарозой. Клетки HEK293 трансфицировали BECN1-Flag, TRAF6-Myc или пустым вектором. Через 24 часа после трансфекции клетки лизировали и IP анализировали с помощью антитела Myc. f Клетки HEK293 котрансфицировали BECN1-HA, TRAF6-Myc, WT-убиквитин-His вместе с кальпаин2а-Flag, кальпаин2а-ΔCysPc-Flag или пустым вектором. Через 24 часа после трансфекции клетки лизировали и очищали Ni-NTA-агарозой. Иммунопреципитирует и вводит антитела против Myc, anti-Flag, анти-HA и анти-тубулина. Все эксперименты проводились как минимум в трех независимых экспериментах.
Мы заметили, что кальпаин2а обладает гидролазной активностью как одна из кальций-зависимых протеаз. м-кальпаин (кальпаин-2) играет положительную регуляторную роль в сигнальном пути NF-κB клеток печени HepG2. Независимо от подхода 26-секундных протеасом, кальпаин2а гидролизует IkB с высвобождением транскрипционного фактора NF-κB. Специфический ингибитор белка кальпаина предотвращает деградацию IkB 56. Однако в отношении кальпаина мало исследований врожденного иммунного ответа рыб. В клетках MKC сверхэкспрессия кальпаина 2а ингибировала нижестоящие провоспалительные цитокины NF-κB, индуцированные ЛПС. Это явление противоречило результатам, полученным в клетках печени HepG2. Возможно, видовая специфичность семейства белков кальпаина вызвала разные эффекты. Аналогичным образом мы использовали специфический ингибитор белка кальпаина E-64, чтобы предотвратить гидролиз кальпаина2a TRAF6. Мутантный кальпаин2а, лишенный гидролазной активности, ингибирует активность убиквитинлигазы TRAF6, не влияя на уровень его белка. Мы не обнаружили ферментативно-активных сайтов для кальпаина2а. Согласно предыдущим исследованиям на млекопитающих, эти три сайта: остатки цистеина (C105A), гистидина (H262A) и аспарагина (N286A). Однако наши эксперименты подтверждают, что три активных сайта кальпаина2а горбыля не влияют на экспрессию уровней белка TRAF6, а мутантный кальпаин2а, лишенный гидролазного домена, влияет. Поэтому мы решили мутировать весь структурный домен, активирующий фермент. Хотя белок кальпаин2а относительно консервативен у млекопитающих и низших позвоночных, участки специфической ферментативной активности заслуживают дальнейшего изучения.

растение цистанхе, повышающее иммунную систему
Таким образом, мы идентифицировали кальпаин2а как негативный регулятор LPS-индуцированной передачи сигналов NF-κB и вирус-индуцированной активации IFN (рис. 9e). В масс-спектрометрии кальпаин2а может взаимодействовать с TRAF6, и мы продемонстрировали это явление с помощью эксперимента по эндогенной коиммунопреципитации. Мы обнаружили, что кальпаин2а участвует в регуляции сигнального пути NF-κB, индуцированного ЛПС. Кроме того, TRAF6 также играет важную роль в противовирусных сигнальных путях. Мы использовали SCRV и Ploy(I:C) для стимуляции сигнального пути IFN и обнаружили, что кальпаин2а может также ингибировать передачу сигналов IFN, регулируя уровень белка и аутоубиквитинирование TRAF6. Поскольку TLR3 может распознавать структуру двухцепочечной РНК (дцРНК), вырабатываемую вирусными инфекциями. Нас больше интересует выяснение регуляции кальпаином2а сигнального пути интерферона, опосредованного TRAF6-, но мы не исключаем потенциальную связь между кальпаином2а и сигнальным путем TLR3. Calpain2a способствует гидролитической деградации TRAF6 и взаимодействует с TRAF6, ингибируя образование димеров и аутоубиквитинирование. Это ингибирование предотвратило взаимодействие TRAF6 и ECSIT и процесс переноса убиквитинирования от TRAF6 к ECSIT, BECN1, IRF3 и IRF7. Наши текущие результаты будут способствовать пониманию механизмов негативной регуляции путем воздействия на TRAF6 во врожденных иммунных реакциях. Кроме того, это исследование указывает на ключевую роль гомоолигомеризации и аутоубиквитинирования TRAF6 в процессе врожденного иммунного ответа рыб. Одновременно с этим кальпаин2а предлагается в качестве белка регуляторного механизма, ингибирующего иммунный ответ TRAF6 и предотвращающего нормальные и упорядоченные сигнальные пути. Эта информация полезна для понимания иммунологии позвоночных и эволюции иммунной системы позвоночных.
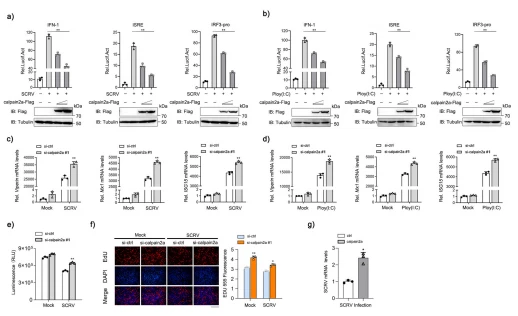
Рис. 8. Кальпаин2а ингибирует SCRV- или Poly(I:C)-индуцированную активацию IFN. Клетки ab EPC трансфицировали различными концентрациями Calpain2a-Flag или пустым вектором вместе с репортерами пролюциферазы IFN-1, ISRE и IRF3-. Через 24 часа после трансфекции клетки подвергали имитации или инфицированию SCRV или Poly(I:C) в течение 12 часов (n=3 на группу). Вестерн-блот-анализ использовали для измерения экспрессии временно трансфицированного кальпаина2а-Flag. Экспрессию тубулина использовали в качестве контроля нагрузки. c, d мРНК Viperin, Mx1, ISG15 в MKC, стабильно трансдуцированная si-calpain2a #1 или si-ctrl (контрольный вектор) и обработанная физиологическим раствором (0) или зараженная SCRV или Poly(I:C) для 24 часа. Относительный уровень мРНК нормировали по экспрессии гена, кодирующего -актин, в каждом образце (n=3 на группу). e, f Клетки MKC трансфицировали либо si-ctrl, либо si-calpain2a #1. Через 24 часа после трансфекции клетки стимулировали SCRV в течение 24 часов, затем измеряли анализ жизнеспособности клеток и анализ клеточной пролиферации (n=3 на группу). Масштабная линейка, 100 мкм. g клеток MKC трансфицировали Calpain2a-Flag или pcDNA3.1, затем инфицировали SCRV в течение 24 часов (n=3 на группу). Анализ qRT-PCR проводился для внутриклеточной и супернатантной экспрессии РНК SCRV. Все эксперименты проводились как минимум в трех независимых экспериментах. Данные анализировали с помощью однофакторного дисперсионного анализа (a, b), двустороннего дисперсионного анализа (c, d, e, f) или двустороннего t-критерия Стьюдента (g). *p < 0,05, **p < 0,01.
Методы
Культура клеток.
Клеточные линии эмбриональной почки человека (HEK) 293 и клеточные линии Epithelioma papulosum cyprini (EPC) были приобретены из Американской коллекции типовых культур и хранились в нашей лаборатории. Линии клеток почек горбыля (M. miiuy) (МКС) и клеточные линии кишечника горбыля (MIC) культивировали из тканей почек и кишечника горбыля (57,58). Клеточные линии почек горбыля Miiuy и клеточные линии кишечника горбыля Miiuy культивировали при 26 градусах во влажном инкубаторе, содержащем 0,5% CO2 в среде L-15 (HyClone, США), дополненной 15% FBS (Gibco). , США), 100 ед/мл пенициллина («Gibco», США), 100 ед/мл стрептомицина («Gibco», США) и 20 ед/мл гепарина («Solarbio», Китай). Клетки папулезной эпителиомы cyprini выращивали при 26 градусах во влажном инкубаторе, содержащем 5% CO2 в среде 199 (Hyclone), дополненной 10% FBS, 2 мМ L-глутамина, 100 ЕД/мл пенициллина и 100 мг/мл стрептомицина. Клетки эмбриональной почки человека 293 выращивали при 37 градусах во влажном инкубаторе, содержащем 5% CO2 в модифицированной Дульбекко среде Игла (DMEM) (Invitrogen), дополненной 10% FBS, 2 мМ L-глутамина, 100 ед/мл пенициллина и 100 мг. /мл стрептомицина.

Рис. 9. кальпаин2а ингибирует TRAF6-опосредованное убиквитинирование IRF7 и IRF3. b Клетки HEK293 котрансфицировали IRF3-Myc, TRAF6-HA и WTubiquitin-His или K63O-убиквитин-His (в котором сохраняется только лизин 63) вместе с кальпаин2а-Flag, кальпаин2а-ΔCysPc. -Флаг или пустой вектор. Через 24 часа после трансфекции клетки лизировали и очищали Ni-NTA-агарозой. c, d Клетки HEK293 котрансфицировали IRF7-Myc, TRAF6-HA и WT-убиквитинHis или K63O-убиквитин-His (в котором сохраняется только лизин 63) вместе с кальпаин2а-Flag, кальпаин2а -ΔCysPc-флаг или пустой вектор. Через 24 часа после трансфекции клетки лизировали и очищали Ni-NTA-агарозой. Все иммунопреципитаты и вводимые антитела против Myc, анти-Flag, анти-HA и анти-тубулина. Все эксперименты проводились как минимум в трех независимых экспериментах. e Модель, подробно описывающая роль кальпаина2а в сигнальных путях, опосредованных TRAF6-. Под воздействием ЛПС и вируса TRAF6 может активироваться, гомоолигомеризоваться и аутоубиквитинироваться. BECN1, ECSIT, IRF7 и IRF3 убиквитинируются TRAF6 и запускают активацию нисходящих сигналов. кальпаин2а как негативный регулятор нацелен на TRAF6, чтобы ингибировать сигнальные пути, опосредованные TRAF6-.
Рекомендации
1. Акира С., Уэмацу С. и Такеучи О. Распознавание патогенов и врожденный иммунитет. Ячейка 124, 783–801 (2006 г.).
2. Такеучи О. и Акира С. Рецепторы распознавания образов и воспаление. Ячейка 140, 805–820 (2010 г.).
3. Ву, Дж. и Чен, З.Дж. Врожденное иммунное восприятие и передача сигналов цитозольных нуклеиновых кислот. Анну. Преподобный Иммунол. 32, 461–488 (2014).
4. Мореско Э.М., Лавин Д. и Бетлер Б. Толл-подобные рецепторы. Курс. Биол. 21, R488–R493 (2011).
5. Шлее М. Мастер-сенсоры патогенной РНК - RIG-I-подобные рецепторы. Иммунобиология 218, 1322–1335 (2013).
6. Вильмански Дж. М., Петницки-Оквиея Т. и Кобаяши К. С. Белки NLR: неотъемлемые члены врожденного иммунитета и медиаторы воспалительных заболеваний. Дж. Леукок. Биол. 83, 13–30 (2008).
7. Акира С. и Хемми Х. Распознавание молекулярных паттернов, связанных с патогенами, семейством TLR. Иммунол. Летт. 85, 85–95 (2003).
8. Каваи Т. и Акира С. Роль рецепторов распознавания образов во врожденном иммунитете: обновленная информация о Toll-подобных рецепторах. Нат. Иммунол. 11, 373–384 (2010).
9. Каваго Т. и др. Последовательный контроль ответов, зависимых от Toll-подобных рецепторов, с помощью IRAK1 и IRAK2. Нат. Иммунол. 9, 684–691 (2008).
10. Сузуки Н. и Сайто Т. ИРАК-4 — общий активатор NF-kappaB при врожденном и приобретенном иммунитете. Тенденции Иммунол. 27, 566–572 (2006).
11. Каваи Т. и Акира С. Сигнализация TLR. Гибель клеток. Разница. 13, 816–825 (2006).
12. Дэн Л. и др. Активация киназного комплекса IkappaB с помощью TRAF6 требует наличия димерного убиквитин-конъюгирующего ферментного комплекса и уникальной полиубиквитиновой цепи. Ячейка 103, 351–361 (2000).
13. Ниномия-Цудзи Дж. и др. Киназа TAK1 может активировать NIK-I kappaB, а также киназный каскад MAP в сигнальном пути IL-1. Природа 398, 252–256 (1999).
14. Такаесу Г. и др. TAB2, новый адаптерный белок, опосредует активацию TAK1 MAPKKK путем связывания TAK1 с TRAF6 в пути передачи сигнала IL-1. Мол. Клетка. 5, 649–658 (2000).
15. Цянь Ю., Коммейн М., Ниномия-Цудзи Дж., Мацумото К. и Ли Х. IRAKm-опосредованная транслокация TRAF6 и TAB2 при интерлейкин-1-индуцированной активации NF-каппа BJ. Биол. хим. 276, 41661–41667 (2001).
16. Инь, К. и др. E2-взаимодействие и димеризация в кристаллической структуре TRAF6. Нат. Структура. Мол. Биол. 16, 658–666 (2009).
17. Ван С. и др. ТАК1 представляет собой убиквитин-зависимую киназу МКК и IKK. Природа 412, 346–351 (2001).
18. Аджибаде А.А., Ван Х.И. и Ван Р.Ф. Типоспецифическая функция TAK1 в передаче сигналов врожденного иммунитета. Тенденции Иммунол. 34, 307–316 (2013).
19. Чжан Дж., Кларк К., Лоуренс Т., Пегги М.В. и Коэн П. Неожиданный поворот в активации IKKbeta: TAK1 запускает IKKbeta для активации путем аутофосфорилирования. Биохим. Дж. 461, 531–537 (2014).
20. Эммерих, CH и др. Активация канонического комплекса IKK с помощью гибридных убиквитиновых цепей, связанных K63/M1-. Учеб. Натл Акад. Sci.110, 15247–15252 (2013).
21. Каваи Т. и др. Индукция интерферона-альфа через Toll-подобные рецепторы включает прямое взаимодействие IRF7 с MyD88 и TRAF6. Нат. Иммунол. 5, 1061–1068 (2004).
22. Китагава Ю. и др. Белок V вируса парагриппа человека типа 2 ингибирует TRAF6-опосредованное убиквитинирование IRF7, предотвращая TLR7- и TLR9- зависимую индукцию интерферона. Дж. Вирол. 87, 7966–7976 (2013).
23. Каваи Т. и др. IPS-1, адаптер, вызывающий индукцию интерферона I типа, опосредованную RIG-I и Mda5-. Нат. Иммунол. 6, 981–988 (2005).
24. Зуст Р. и др. 2'-О-метилирование рибозы обеспечивает молекулярный признак различия собственной и чужой мРНК в зависимости от сенсора РНК Mda5. Нат. Иммунол. 12, 137–143 (2011).
25. Сет, Р.Б., Сан, Л., Эа, К.К. и Чен, З.Дж. Идентификация и характеристика MAVS, митохондриального противовирусного сигнального белка, который активирует NF kappaB и IRF 3. Cell 122, 669–682 (2005).
26. Сюй, Л.Г. и др. VISA представляет собой адаптерный белок, необходимый для запускаемой вирусом передачи сигналов бета-интерферона. Мол. Клетка. 19, 727–740 (2005).
27. Ёсида Р. и др. TRAF6 и MEKK1 играют ключевую роль в противовирусном пути RIG-I-подобной геликазы. Ж. Биол. хим. 283, 36211–36220 (2008).
28. Лю С. и др. MAVS привлекает несколько убиквитин-лигаз Е3 для активации противовирусных сигнальных каскадов. Элайф 2, e00785 (2013).
29. Ивашкив Л.Б. и Донлин Л.Т. Регуляция реакции интерферона I типа. Нат. Преподобный Иммунол. 14, 36–49 (2014).
30. Фу Т.М., Шен К., Ли К., Чжан П. и Ву Х. Механизм переноса убиквитина, стимулируемый TRAF6. Учеб. Натл Акад. наук. 115, 1783–1788 (2018).
31. Бун, Д.Л. и др. Фермент А20, модифицирующий убиквитин, необходим для прекращения ответов Toll-подобных рецепторов. Нат. Иммунол. 5, 1052–1060 (2004).
32. Коваленко А. и др. Супрессор опухоли CYLD отрицательно регулирует передачу сигналов NF kappaB путем деубиквитинирования. Природа 424, 801–805 (2003).
33. Он, Х. и др. USP2a отрицательно регулирует IL-1beta- и вирус-индуцированную активацию NF kappaB путем деубиквитинирования TRAF6. Дж. Мол. Клеточная Биол. 5, 39–47 (2013).
34. Сяо Н. и др. Убиквитин-специфическая протеаза 4 (USP4) нацелена на TRAF2 и TRAF6 для деубиквитинирования и ингибирует миграцию раковых клеток, индуцированную TNF-альфа. Биохим. Дж. 441, 979–986 (2012).
35. Ясунага Дж., Лин Ф.К., Лу Х. и Жанг К.Т. Убиквитин-специфическая пептидаза 20 нацелена на TRAF6 и налог вируса Т-клеточного лейкоза человека типа 1, отрицательно регулируя передачу сигналов NF-kappaB. Дж. Вирол. 85, 6212–6219 (2011).
36. Чжан Х., Чжан Дж., Чжан Л., ван Дам Х. и тен Дейке П. UBE2O отрицательно регулирует TRAF6-опосредованную активацию NF-kappaB, ингибируя полиубиквитинирование TRAF6. Сотовые Рез. 23, 366–377 (2013).
37. Ви, С.М. и др. Комплекс TAK1-ECSIT-TRAF6 играет ключевую роль в сигнале TLR4 для активации NF-kappaB. Ж. Биол. хим. 289, 35205–35214 (2014).
38. Мин, Ю., Ким, М.Дж., Ли, С., Чун, Э. и Ли, К.Ю. Ингибирование активности убиквитин-лигазы TRAF6 с помощью PRDX1 приводит к ингибированию активации NFKB и активации аутофагии. Аутофагия 14, 1347–1358 (2018).
39. Цзяо С. и др. Киназа MST4 ограничивает воспалительные реакции посредством прямого фосфорилирования адаптера TRAF6. Нат. Иммунол. 16, 246–257 (2015).
40. Бодри, М. и Би, X. Кальпейн-1 и Кальпейн-2: Инь и Ян синаптической пластичности и нейродегенерации. Тенденции Неврологии. 39, 235–245 (2016).
41. Франко С. Дж. и Хаттенлохер А. Регулирование миграции клеток: кальпаины делают свое дело. Дж. Клеточная наука. 118, 3829–3838 (2005).
42. Кацубе М. и др. Кальпаин-опосредованная регуляция отдельных сигнальных путей и миграции клеток в нейтрофилах человека. Дж. Леукок. Биол. 84, 255–263 (2008).
43. Шечер К., Гоуст Дж. М. и Баник Н. Л. Влияние ингибирования кальпаина на деградацию IkB альфа после активации РВМС: идентификация сайтов расщепления кальпаина. Нейрохим. Рез. 29, 1443–1451 (2004).
44. Томпа П. и др. О последовательных детерминантах расщепления кальпаина. Ж. Биол. хим. 279, 20775–20785 (2004).
45. Куерье Д., Молдовяну Т. и Дэвис П.Л. Определение специфичности пептидного субстрата для мю-кальпаина с помощью подхода на основе пептидной библиотеки: важность праймированных побочных взаимодействий. Ж. Биол. хим. 280, 40632–40641 (2005).
46. Дюверль Д.А., Оно Ю., Соримачи Х. и Мамицука Х. Прогнозирование расщепления Кальпаина с использованием множественного обучения ядра. ПЛОС Один. 6, e19035 (2011).
47. Ши, К.С. и Керл, Дж.Х. TRAF6 и A20 регулируют лизиновое 63-связанное убиквитинирование Беклина-1 для контроля TLR4-индуцированной аутофагии. наук. Сигнал. 3, ра42 (2010).
48. Лу, Ю.М. и Гейл, М. Иммунная передача сигналов RIG-I-подобными рецепторами. Иммунитет 34, 680–692 (2011).
49. Линг Т. и др. TARBP2 ингибирует активацию IRF7 путем подавления TRAF6-опосредованного K63-связанного убиквитинирования IRF7. Мол. Иммунол. 109, 116–125 (2019).
50. Чжоу З. и др. Рыбка данио otud6b отрицательно регулирует противовирусные реакции, подавляя K63-связанное убиквитинирование irf3 и irf7. Дж. Иммунол. 207, 244–256 (2021).
51. Кобаяши Т., Уолш М.К. и Чой Ю. Роль TRAF6 в передаче сигнала и иммунном ответе. Микробы заражают. 6, 1333–1338 (2004).
52. Ву, Х. и Аррон, Дж. Р. TRAF6, молекулярный мост, соединяющий адаптивный иммунитет, врожденный иммунитет и остеоиммунологию. Биоэссе 25, 1096–1105 (2003).
53. Пиккарт, К.М. и Эддинс, М.Дж. Убиквитин: структуры, функции, механизмы. Биохим. Биофиз. Акта. 1695, 55–72 (2004).
54. Пиккарт, К.М. и Фушман, Д. Цепи полиубиквитина: сигналы полимерных белков. Курс. Мнение. хим. Биол. 8, 610–616 (2004).
55. Ламот Б. и др. Сайт-специфическое аутубиквитинирование фактора 6, связанного с Lys-63-связанным рецептором фактора некроза опухоли, является критическим фактором, определяющим активацию I каппа B киназы. Ж. Биол. хим. 282, 4102–4112 (2007).
56. Хан, Ю., Вайнман, С., Болдог, И., Уокер, Р.К. и Брайзер, А.Р. Индуцируемый фактором некроза опухоли-альфа протеолиз IkappaBalpha, опосредованный цитозольным м-кальпаином. Механизм активации ядерного фактора каппа B, параллельный убиквитин-протеасомному пути. Ж. Биол. хим. 274, 787–794 (1999).
57. Чу, К. и др. Высококонсервативная кольцевая РНК circRasGEF1B усиливает противовирусный иммунитет путем регуляции пути миР-21-3p/MITA у низших позвоночных. Дж. Вирол. 95, e02145–20 (2021).
58. Чен Ю., Цао Б., Чжэн В. и Сюй Т. ACKR4a индуцирует аутофагию, блокируя передачу сигналов NF-kappaB и апоптоз, чтобы облегчить заражение Vibrio harveyi. iScience 26, 106105 (2023).
59. Сепулькре, член парламента и др. Эволюция распознавания и передачи сигналов липополисахаридов (ЛПС): TLR4 рыб не распознает ЛПС и отрицательно регулирует активацию NF kappaB. Дж. Иммунол. 182, 1836–1845 (2009).
60. Чжэн В., Чу К. и Сюй Т. Длинная некодирующая РНК NARL регулирует иммунные ответы посредством микроРНК-опосредованного подавления NOD1 у костистых рыб. Ж. Биол. хим. 296, 100414 (2021).
61. Чжэн В., Су Х., Лв Х., Синь С. и Сюй Т. Экзон-интронная кольцевая РНК circRNF217 способствует врожденному иммунитету и антибактериальной активности у костистых рыб за счет уменьшения miR-130-3p Функция. Дж. Иммунол. 208, 1099–1114 (2022).
62. Сюй Т., Чу К. и Куи Дж. МикроРНК, индуцируемая рабдовирусом-210, модулирует противовирусный врожденный иммунный ответ путем нацеливания на STING/MITA у рыб. Дж. Иммунол. 201, 982–994 (2018).
63. Би Д. и др. Распознавание липополисахарида и активация NF-каппаB цитозольным сенсором NOD1 у костистых рыб. Передний. Иммунол. 9, 1413 (2018).
64. Ян Х., Чжао Х., Хо Р. и Сюй Т. IRF3 и IRF8 регулируют передачу сигналов NF-kappaB путем нацеливания на MyD88 у костистых рыб. Передний. Иммунол. 11, 606 (2020).
65. Чен Ю., Цао Б., Чжэн В., Сан Ю. и Сюй Т. eIF3k ингибирует передачу сигналов NF-kappaB, нацеливаясь на MyD88 для ATG5--опосредованной аутофагической деградации у костистых рыб. Ж. Биол. хим. 298, 101730 (2022).