Аутофлуоресценция как неинвазивный биомаркер старения и конечных продуктов повышенного гликозилирования у Cistanche Tubulosa
Apr 11, 2023
ОБСУЖДЕНИЕ
Ранее аутофлуоресценция использовалась для мониторинга липофусцина, возрастного пигмента, как биомаркера старения.4,13. Хотя мы наблюдали красныйфлфлуоресценция, указывающая на липофусцин, как видно из предыдущих исследований9, синийфлфлуоресценция была обнаружена на более ранней стадии жизни при исследовании червей с помощью М165 ТЦ.флфлуоресцентный стереомикроскоп (Leica Microsystems, Токио, Япония) (данные не показаны). Цель настоящего исследования состояла в том, чтобы изучить, может ли синяя автофлуоресценция служить более чувствительным маркером для отслеживания старения отдельных червей.

Цистанхе ФорАнтистарение
Антивозрастной продукт Cistanche готов к отправке
флфлуоресценция, измеренная у отдельных червей, увеличивалась с возрастом; меньше червейфлчем выше, тем больше продолжительность их жизни. Таким образом, синийфлфлуоресценция может служить альтернативным биомаркером для отслеживания старения. Однако Пинкус и соавт. сообщили, что черви, которые впоследствии погибли (в течение 24 ч)флснижается за счет биосинтеза кинуренина; эти исследователи назвали этот синий свет"смертьфлфлуоресценция". Сообщается, что смертьфлфлуоресценцияфлвыброс ects гликозилированной формой антраниловой кислоты, продуцируемой кинурениновым путем; автофллюоресцирующий материал обнаруживается в лизосомоподобных гранулах кишечника31. Этот синий свет может быть тем же маркером смерти, что и Coburn et al. наблюдается вС. Элегансв течение нескольких часов до и после смерти, и это, как сообщается, наблюдалось как у молодых червей, подвергшихся смертельным травмам, так и у червей, умирающих естественно от старости. Действительно, мы заметили, чтодобрый-1мутант, у которого отсутствует кинурениназная активность, аутофлуоресцировал меньше, чем дикий тип. Однако наши результаты показали, что некоторая часть синегофлфлуоресценция связана со старением, а не со смертью. Примечательно, как показано на рис.3б, у стареющих червей наблюдается усиление синего цветафлфлуоресценция даже при исключении данных, полученных в течение 2 дней, предшествующих смерти. Кроме того, черви по-прежнемуфлувеличивается с возрастом, независимо от состояниякину-1ген. Уменьшенныйфлфлуоресценция вкину-1таким образом, мутант должен быть связан с потерейускорение синтеза КПГ кинуренинами, а не отсутствие гибелифлфлуоресценция32.
Некоторые соединения КПГфлфлуоресцентный27. Мы пришли к выводу, что синийфлфлуоресценция может включать излучение этих КПГ, отдельное от излучения, связанного со смертью.флфлуоресценция. Когда экстрагированные белки червей инкубировали с сахарами in vitro,флИнтенсивность флуоресценции и уровни КПГ увеличивались с течением времени. Черви, культивируемые на среде, содержащей рибозуфлu сократится больше, чем контрольные животные, выращенные в отсутствие дополнительной рибозы, даже когдакину-1был мутирован. Напротив, черви, культивированные в присутствии рифампицина, известного ингибитора продукции КПГ, демонстрировали снижение уровня синего цвета.флфлуоресценция. Действительно, флуоресцентная микроскопия показала, что 13-дневные черви излучают больше синего света, чем 3-дневные молодые взрослые особи. Иммуноокрашивание анти-ХМЛ или анти-пентозидиновыми антителами не выявило присутствия диффузно распространяющихся КПГ с характером распределения, напоминающим голубую окраску.флфлуоресценция.флфлуоресценция может исходить от других обильныхфлфлуоресцирующие КПГ, такие как веспертин А, LM-1 и аргпиримидин33,34.
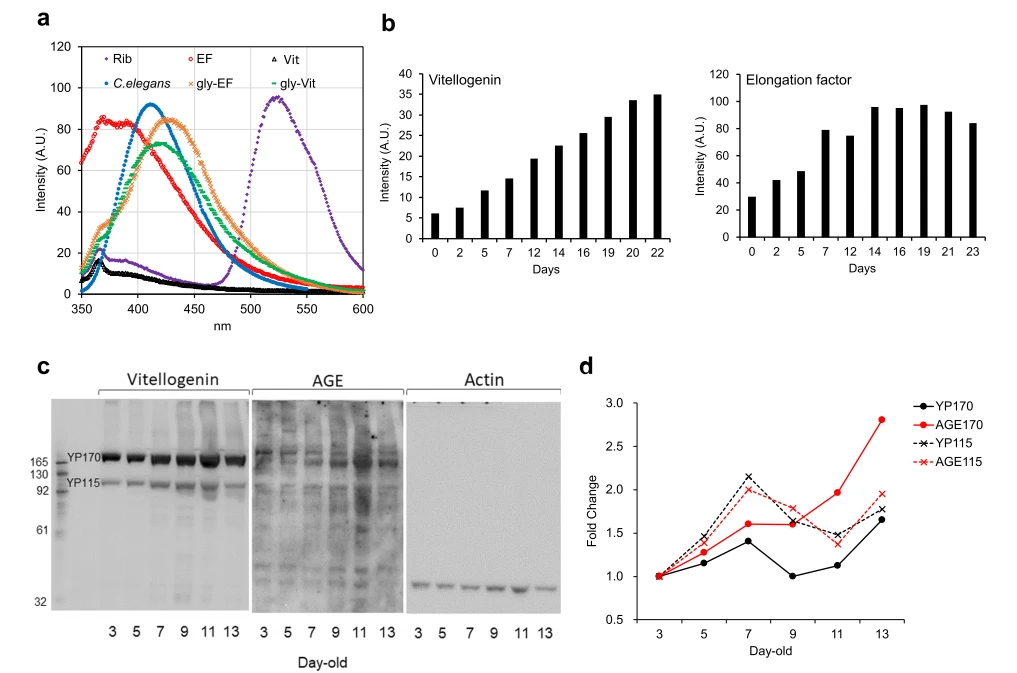
Чтобы обеспечить желток для ооцист,С. Элегансгермафродиты потребляют собственную кишечную биомассу, что приводит к атрофии кишечника и эктопическому отложению желтка в более позднем возрасте. Как сообщалось ранее, вителлогенины (белки желтка) присутствовали в вдвое большем количестве у старых червей (по сравнению с более молодыми животными).35, и показал в шесть раз большефлфлуоресценция после гликирования in vitro. Эти данные свидетельствуют о том, что сами вителлогенины будут генерировать в 12-кратно увеличенныйфлфлуоресценция у старых червей по сравнению с молодыми особями теоретически. Вестерн-блоттинг показал, что основными полосами, реагирующими с антителом против CML, были белки желтка. Это открытие соответствует предыдущим отчетам Nakamura et al., которые обнаружили сильное гликирование вителлогенина.36и Golegaonkar et al., которые обнаружили снижение гликирования вителлогенина -2, вителлогенина -6 и фактора элонгации 1 альфа у нематод, обработанных рифампицином.30. Сообщается, что вителлогенины действуют как антиоксиданты и способствуют долголетию маток медоносных пчел.37. ВС. Элеганс, вителлогенины играют решающую роль в устойчивости к стрессу 38. Поскольку антиоксиданты могут легко окисляться сами по себе, накопление гликированного вителлогенина может ослабить защиту от окислительного повреждения, что приводит к обратной зависимости между ожидаемой продолжительностью жизни и интенсивностью синего цвета.флфлуоресценция, наблюдаемая в настоящем исследовании. Однако Сорнда и соавт. недавно сообщалось, что продолжительность жизни не связана с устойчивостью к окислительному стрессу, опосредованной YP115/YP88 (вителлогенин-6)39. Эти исследователи предположили, что накопление вителлогенина YP170, полученного из вителлогенинов 1–5, вызывает атрофию кишечника и сокращение продолжительности жизни, в то время как накопление YP115/YP88 может замедлять атрофию кишечника и увеличивать продолжительность жизни. Следовательно, гликирование вителлогенина -6 и возникающая в результате дисфункция могут способствовать старению. Хотя факторы удлиненияфлu возрастал в 3 раза интенсивнее после гликирования in vitro, количество этих белков было одинаковым между молодыми и старыми червями. Следовательно, вклад этого фактора в усиленную аутофлуоресценцию может быть меньше, чем вклад вителлогенинов.

Цистанхеобычно используется в качестве модели дляизучатьстарение и антистарение вмешательства. Мы предложили использовать червя в качестве модели для изучения эффектов увеличения продолжительности жизни.молочнокислых бактерий8. Учитывая демонстрацию (в настоящем исследовании), что синийфлфлуоресценция у нематод является возможным индикатором накопления КПГ, мы предполагаем, чтоЦистанхе гермафродиты могут служить моделью для изучения полезности вмешательств против старения, которые действуют посредством подавления продукции КПГ. Напротив, аутофлуоресценция вряд ли может быть биомаркером старения самцов червей, потому что вителлогенинов должно быть мало.
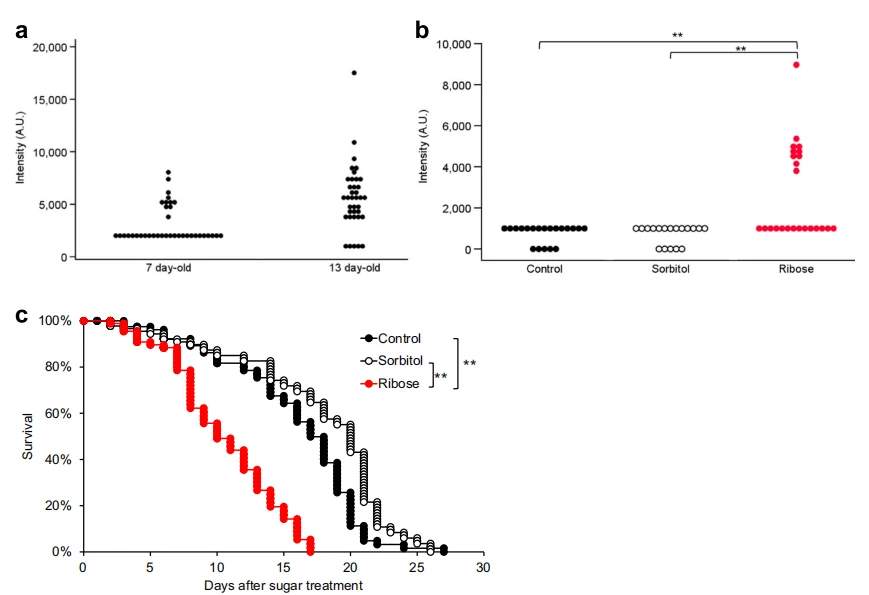
Рис. 5 Синяя флуоресценция мутантов kynu-1, которые не должны излучать флуоресценцию смерти. аИнтенсивность флуоресценции (ex 340/em 430) 7-дневных и 13-дневныхкину-1мутанты (n = по 37); старые черви по-прежнему выделяют большефлфлуоресценцию, чем у более молодых червей, несмотря накину-1мутация. Однако никаких признаковфифиразница не была обнаружена в значениях аутофлуоресценции методом Манна–УитниU тест.b 7-Суточный червь, поддерживаемый рибозой, излучал больше синего цветафлфлуоресценция, несмотря надобрый-1мутация. СинийфлфлуоресценцияС. Элегансвыращенный с рибозой (n = 24) или сорбит (n = 18) сравнивали с контрольными червями без сахаров (n = 20). Значения аутофлуоресценции сравнивали с использованием непараметрической шкалы Steel.–Метод Двасса (**p < 0.01). c Кривые выживанияС. Элегансвыращенный с рибозой (n = 62) или сорбит (n = 84) сравнивали с контрольными червями без сахаров (n = 64). В день 0 червям было 3 дня. Выживаемость нематод рассчитывалась по шкале Каплана.–Мейера, а различия в выживаемости проверяли на значимость с помощью логарифмического рангового критерия (**p < 0.01).
МЕТОДЫ
НематодыЦистанхе Штамм Bristol N2 и его производные мутантные штаммы были любезно предоставлены Центром генетики Caenorhabditis Университета Миннесоты. В этом исследовании использовались мутации CB1370.даф-2 (e1370)и CB1003кину -1 (e1003). Нематоды содержались и размножались на NGM в соответствии со стандартной методикой 40. Яйца червей извлекали из взрослых червей после воздействия раствора гипохлорита натрия/гидроксида натрия, как описано ранее 41. Суспензию яиц инкубировали в течение ночи при червей L1-стадии центрифугировали при 156 ×g на 1 мин. Супернатант удаляли, а оставшихся личинок переносили на свежие, не содержащие пептон, модифицированные NGM (mNGM) чашки, покрытыекишечная палочкаштамм OP50 (ОП50). Штаммы выращивали на чашках с агаром mNGM при 25°, за исключениемдаф-2штамм, который выращивали при 20 градусах до стадии L4. Все анализы начинали с молодых взрослых червей, которые начинали откладывать яйца при 25°С. Для нематод не требовалось этического одобрения.Бактериальные штаммыOP50 использовался в качестве признанного во всем мире корма для нематод. Триптонно-соевый агар (Nissui Pharmaceutical, Токио, Япония) использовали для культивирования OP50. Бактерии (сырая масса 100 мг) суспендировали в 0,5 мл буфера М9; Затем аликвоту 50- мкл бактериальной суспензии распределяли по mNGM в чашках диаметром 5,5- см, если не указано иное.

Многомерный анализ автофлуоресценции
проанализировано с использованием матрицы возбуждения-излучения (EEM)флфлуоресцентная спектроскопия. Многофакторный анализ (одноволновое возбуждение с несколькимиизлучение с длиной волны и синхронное сканированиефлворометрия) дали графики EEM, состоящие из однократного возбуждения и синхронногофлуоресценцияпостроены спектры каждой серии.
Спектры флуоресценции стареющих червей
Модель считывателя микропланшетов SH-9000Lab с программным обеспечением для обработки данных SF6(Corona Electric, Ибараки, Япония). Каждое измерение проводили трижды.

Измерение аутофлуоресценции отдельных живых червей (метод обертки-капли)
Однако пустые (только буфер М9) данные были проверены три раза на наличиекаждую скважину с учетомколебанияот колодца к колодцу. Минимальные пределы обнаружения и количественные пределы определяли на основе контрольных данных в каждый день по мереμ (среднее значение пробела)плюс3.29σ (стандартное отклонение) иμплюс√2 × 10σ, соответственно. Автофлуоресценция в теле каждого червя
был захвачен многорежимным считывающим устройством для микропланшетов. Послеизмерения, каждый червь содержался отдельно на 4,0- смпластина диаметром 0,5 мм, покрытая OP50 (2 мг/10μбуфер L M9) при 25 градусах. Каждыйанализ проводили минимум на 20 червях и повторяли дважды.
Измерение продолжительности жизни
Червей содержали на чашках mNGM, покрытых OP50, при 25° до возраста 13 дней. После оценкифлуоресценцияанализ, по 30 червей.перенесли на отдельные новые планшеты mNGM, покрытые OP50. Планшеты инкубировали при 25°С и каждые 24 часа подсчитывали количество живых и мертвых червей. Червь считался мертвым, если он не реагировал на легкое прикосновение к червячному сборщику.

AGE после гликирования in vitro
добавление 100μл 1 моль/л серной кислоты на лунку. Поглощение каждогохорошо при 450 нм (под: 650 нм), затем сразу же измеряли с помощью устройства для считывания микропланшетов. ELISA проводили три раза для каждого из тестовых условий.
Вестерн-блоттинг для стареющих червей
Образцы были обработаны 4× Bolt™ Буфер для образцов LDS (Thermo Fisher Scientiфифив) и 10× Болт™ Образец восстановителя (Thermo Fisher Scientiфифив), и каждый образец, содержащий 1,5μг общего белка анализировали на Bolt™ 4–12-процентный гель Bis-Tris Plus (Thermo Fisher Scientiфифив). Затем белки переносили из геля на поливинилиденовуюфлфторидную мембрану (ATTO, Токио, Япония) и блокировали 5-процентным обезжиренным молоком в PBS- 0.1 % Tween 20 в течение 1 часа. Мембрану инкубировали в течение ночи при 4 градусах с моноклональным антителом против AGE (анти-CML) (клон № 6D12 в соотношении 1:1 000), промывали PBS-T и затем инкубировали при комнатной температуре в течение 1 h с конъюгированным с пероксидазой козьим антителом против IgG мыши (1:25,000). После промывки PBS-T мембрану инкубировали с реагентом для обнаружения вестерн-блоттинга ECL Prime (GE Healthcare UK, Little Chalfont, England) и сканировали с использованием системы визуализации ChemiDoc Touch (Bio-Rad, Hercules, CA, USA) или ImageQuant. LAS 500 (GE Healthcare UK). Затем мембраны промывали PBS-T, инкубировали со стриппинг-буфером Western BLoT (Takara, Shiga, Japan) в течение 30 минут при комнатной температуре и снова промывали PBS-T. Мембрану повторно зондировали антителами к вителлогенину YP115 и YP170 (каждое 1:10 000) при 4 градусах в течение ночи.42, промывали PBS-T и инкубировали с козьим антителом против крысиного IgG, конъюгированным с пероксидазой (1:2000) (Proteintech, Rosemont, IL, USA) при комнатной температуре в течение 2 часов. Для контроля загрузки мембраны повторно исследовали с использованием анти-актинового антитела (клон № C4; Merck KGaA, Дармштадт, Германия) и антимышиного антитела, конъюгированного с пероксидазой (GE Healthcare UK). Плотности полос вителлогенина (YP170 и YP115) и CML на каждой дорожке нормализовали относительно плотности полос актина на соответствующей дорожке. Плотность полос анализировали с использованием программного обеспечения ImageQuant TL (GE Healthcare). Каждый анализ проводили дважды.
Влияние рибозы и рифампицина на КПГ in vivo
законченныйяйценоскость (в возрасте 7 дней). Чтобы оценить влияние рибозы, мы провели тесты на выживаемость и измерили аутофлуоресценцию. Червь былсчитался мертвым, когда он не реагировал на легкое прикосновение с помощью червячного сборщика. Черви, погибшие в результате прилипания к стенке пластины, в анализ не включались и подвергались цензуре. В отдельном экспериментеMGM, содержащий 50 мкМ (окончательныйконцентрация) рифампицин (растворенный вДМСО). Каждый анализ повторяли дважды.
Идентификация старых специфичных для червей белков
20 мМ (в присутствии двукратного молярного избытка ДТТ); тогда смесь былаинкубируют в темноте при комнатной температуре в течение 30 мин для протекания реакции алкилирования. Трипсин в 50 мМ AmBic смешивали с каждым раствором в соотношении 1:50 (трипсин: концентрация белка). Образцы переваривали не менее 4 ч или в течение ночи при 37°С при встряхивании. Следующийцентрифугирование, ТФУ и АЦН добавляли для полученияокончательныйконцентрации 0.5–1,0% TFA и 2% ACN по объему. Образцы встряхивали в течение 2 ч при 60°С. После центрифугирования при 22 200×g в течение 5 мин супернатантпипеткой во флакон автодозатора. Белки предварительно расщепляли трипсином.для анализа методом обращенно-фазовой жидкостной хроматографии с использованием системы Ultimate3000RSnanoLC (Thermo Fisher Scientific), соединенной с системой ESI-Q-TOF (Impact II Bruker Daltonics). Дрожжевая алкогольдегидрогеназаБелок (ADH1_YEAST) добавляли в образцы в качестве внутреннего стандарта;добавление было выполнено, чтобы обеспечить количество примерно 50 фмольстандарт на колонке.
Автофлуоресценция после гликирования in vitro
Вителлогенин в растворе PBS ({{0}},053 мкМ) был приобретен в Biosense Laboratories AS (Берген, НОРВЕГИЯ). Раствор фактора удлинения (1,17 мкМ) был приобретен у Abnova Corporation (Тайбэй, Тайвань). Эти растворы гликировали 0,1 мМ рибозы в течение 23 дней при 37°С. Рибоfflавин был приобретен у Sigma (Токио, Япония) и растворен в PBS в концентрации 0,1 мМ. Каждый раствор измеряли флуоресцентной спектрофотометрией в одних и тех же условиях.
Иммунофлуоресценциямолодыми и старыми червямиСинхронизированные по возрасту CB1003, которым вводили OP50, инкубировали при 25°С. Трехдневные и 13-взрослые взрослые были пермеабилизированы с помощью Bouin.'s протокол фиксации трубки43.

Рис. 7 Флуоресцентные изображения 3-суточных и 13-суточных мутантов kynu-1. а–сТрехдневные черви иd–f 13-суточные черви с необработанными изображениями в столбце 1. Чтобы исключить возможные последствия гибелифлфлуоресценция, начинающаяся за 2 дня до появления червей' смерть, мутанткину-1был использован. Автофлуоресценция видна на изображениях в колонках 2 и 3. Фотографии в колонке 3 были увеличены с указанных (прямоугольниками) областей изображений в колонке 2. Старые черви ({4}}дневные) autoфлуоресцентныйзнакифифинесколько выше, чем у молодых червей (3-дневных). Каждая шкала показывает 50μm. g Количественная оценкасинегофлуоресценцияс помощью программного обеспечения ImageJ и ImageQuant TL. Каждая полоса представляет средние значенияфлинтенсивность флуоресценции на 1 мм2 из девяти червей. ** указывает на статистически значимоефифиразница между 3-дневными и 13-дневными червями вp значение < 0.01. Столбики погрешностей представляют SE.
1 ч и блокируется буферным раствором антител, содержащим 10% козьей сыворотки.(Cosmo Bio, Токио, Япония) при 4 градусах ночью. Первичные антитела состояли из мышиного моноклонального антитела к AGE (анти-CML) (клон № 6D12; 1:125) и антитела к пентозидину (клон № PEN-12, трансгенный; 1:5). 0). Вторичное антитело состояло из конъюгированного с Alexa Fluor 555- козьего антимышиного антитела (Abcam, Кембридж, Англия; 1:100). Все разведения антител выполняли с использованием буфера для антител, содержащего 0,5% БСА. Образцы монтировали на предметные стекла с использованием среды VECTASHIELD, препятствующей выцветанию (Vector Laboratories, Burlingame, CA, USA).
Флуоресцентная микроскопия
статистический анализ
Корреляцию ожидаемой продолжительности жизни рассчитывали по методу Спирмена.'s ранговый коэффициент корреляции. Уровни аутофлуоресценции после гликирования in vitro сравнивали с использованием двухфакторного факторного дисперсионного анализа и метода Шеффе.'s F тест.Значения ELISA после гликирования in vitro сравнивали с использованием однофакторного ANOVA и теста Даннета для множественных сравнений. Выживание нематодбыл рассчитан методом Каплана–Метод Мейера, и различия в выживаемости были проверены на значимость с использованием критерия логарифмического ранга. Значения аутофлуоресценции после лечения рифампицином и старениядаф-2икину-1мутанты сравнивались для каждого с использованием Стьюдента's t тест, двухфакторный дисперсионный анализ с повторным измерением и метод Манна–УитниU тест. Значения автофлуоресценции после обработки рибозой для N2 иликину-1мутант сравнивали с помощью непараметрической шкалы Steel–Метод Двасса. Плотности, полученные при автофлуоресцентной микроскопии, сравнивали с использованием Стьюдента.'s t-тест. Там, где наблюдалась значимость, данные классифицировались.фифиизд. как *p < 0.05 and **p < 0.01. All статистический анализ проводился с помощью Microsoft Excel, дополненногодополнительное программное обеспечениеплюсStatcel 3 (OMS, Токио, Япония) и JSTAT для Windows(Нанкодо, Токио, Япония).
Сводка отчетов
Дополнительную информацию о дизайне исследования можно найти в журнале Nature Research.Сводка отчетов, связанная с этой статьей.
НАЛИЧИЕ ДАННЫХ
Наборы данных, созданные в ходе текущего исследования, доступны на соответствующемавтора по обоснованному запросу.
ИСПОЛЬЗОВАННАЯ ЛИТЕРАТУРА
22. Мендлер, М., Шлоттерер, А., Моркос, М. и Наврот, П.П. Понимание диабетической полинейропатии и долголетия: чему мы можем научиться у нематодCae norhabditis elegans? Эксп. клин. Эндокринол. Диабет 120, 182–183 (2012).
Попросить больше:
Электронная почта:wallence.suen@wecistanche.com WhatsApp плюс 86 15292862950