ДНК-вакцинация индуцировала защитный иммунитет против инфекции SARS CoV-2 у хомяков
Nov 17, 2023
Абстрактный
Разработка эффективных вакцин против COVID-19 – острая необходимость глобального общественного здравоохранения. Шиповый белок коронавируса 2 тяжелого острого респираторного синдрома (SARS-CoV-2) является основной мишенью вакцины против COVID-19. Чтобы быстро отреагировать на вспышку пандемии SARS-CoV-2, вакцина на основе нуклеиновых кислот является новым вариантом, выходящим за рамки традиционной инактивированной вирусной вакцины или вакцины на основе рекомбинантного белка. Здесь мы сообщаем о ДНК-вакцине, содержащей ген спайка для доставки посредством электропорации. Шиповые гены SARS-CoV и SARS-CoV-2 были кодонно оптимизированы для экспрессии клеток млекопитающих, а затем клонированы в векторы экспрессии клеток млекопитающих, называемые pSARS-S и pSARS2-S соответственно. Экспрессию шипового белка подтверждали с помощью иммуноблоттинга после временной экспрессии в клетках HEK293T. После иммунизации собирали сыворотку для анализа титра антигенспецифических антител и нейтрализующих антител. Мы обнаружили, что иммунизация pSARS-S и pSARS2-S индуцировала одинаковые уровни антител против S2 SARS-CoV-2. Напротив, только иммунизация pSARS2-S индуцировала антитела против рецептор-связывающего домена SARS-CoV-2. Мы также обнаружили, что иммунизация pSARS2-S, но не иммунизация pSARS-S, может вызывать очень высокие титры нейтрализующих антител против SARS-CoV-2. Далее мы проанализировали реакции Т-клеток, специфичные для SARS-CoV-2 S-белка, и обнаружили, что иммунные ответы были смещены в сторону Th1. Важно отметить, что иммунизация хомяков pSARS2-S может вызвать защитный иммунитет против заражения SARS-CoV-2 in vivo. Эти данные позволяют предположить, что ДНК-вакцинация может быть многообещающим подходом к защите от COVID-19.

Преимущества цистанхе – укрепляют иммунную систему
Краткое описание автора
SARS-CoV-2 продолжает угрожать здравоохранению во всем мире, и разработка вакцины против SARS-CoV-2 является неотложным приоритетом для остановки эпидемии COVID-19. Здесь мы разработали ДНК-вакцины, содержащие шиповый ген SARS-CoV-2 и доставленные посредством электропорации. Мы заметили, что ДНК-вакцина вызывала длительный гуморальный ответ против SARS-CoV-2, а выработанные сывороточные антитела эффективно блокировали связывание RBD SARS-CoV-2 с его рецептором входа (ACE2). Важно отметить, что ДНК-вакцина вызывала сильный Th1-иммунный ответ против SARS-CoV-2, который мог обеспечить защитный эффект с низким уровнем побочных эффектов. Наконец, мы продемонстрировали, что ДНК-вакцина SARS-CoV-2 обеспечивает защитную эффективность против инфекции SARS-CoV-2 у сирийских хомяков. Наши результаты показали, что ДНК-вакцинация может стать полезным методом борьбы с пандемией COVID-19 в ближайшем будущем.
Введение
Возникшее инфекционное заболевание COVID-19, вызванное коронавирусом 2, связанным с тяжелым острым респираторным синдромом (SARS-CoV-2), оказало значительное экономическое воздействие на страны, пострадавшие от вспышки заболевания в 2019–2020 гг. [1]. К марту 2021 года во всем мире было зарегистрировано более 118 миллионов подтвержденных случаев заболевания COVID-19, и более 2,6 миллиона человек умерли от COVID-19 [2]. Глобальный уровень смертности составляет примерно 2,2%. Хотя уровень смертности от SARS-CoV-2 ниже, чем от MERS-CoV и инфекции SARS-CoV, его заразность выше. В декабре 2020 года было одобрено несколько вакцин против COVID-19 для экстренного использования, однако на момент написания этой статьи пандемия COVID-19 остается международной угрозой.

цистанхе трубчатой – улучшает иммунную систему
Белок Spike (S) — это поверхностный белок коронавируса, который отвечает за процессы прикрепления вируса к рецептору ангиотензинпревращающего фермента 2 (ACE2) хозяина, проникновение в клетку и слияние мембран вируса и клетки для высвобождения вирусной РНК в клетки-хозяева. Среди структурных белков SARS-CoV белок-шип является доминантным антигеном, индуцирующим нейтрализующие антитела.3]. На основании предыдущих исследований SARS и MERS было доказано, что вакцины на основе S-белка индуцируют нейтрализующие антитела и иммунные реакции Т-клеток на коронавирусы и защищают животных от заражения вирусом.4, 5]. Из-за высокой иммуногенности белка S он может стать потенциальной мишенью для разработки вакцины против SARS-CoV-2 [5–7]. Кандидаты на вакцину против COVID-19 могут быть разработаны с использованием инактивированного вируса, рекомбинантных или синтетических вирусных компонентов, рекомбинантного вируса или вирусной мРНК или ДНК. Последний подход особенно привлекателен, поскольку вирусную ДНК можно быстро производить и легко доставлять по всему миру без системы холодовой цепи. Более того, полностью синтетическая ДНК, полученная из последовательности, кодирующей вирусный белок, может индуцировать как гуморальный, так и клеточный иммунный ответ против патогенов.8, 9].
ДНК-вакцина представляет собой идеальную вакцинную платформу с рядом преимуществ, включая простоту разработки и производства, стабильность в диапазоне температур и низкую стоимость производства. Следовательно, платформа ДНК-вакцин подходит для быстрого и крупномасштабного производства во время вспышек инфекционных заболеваний. Предыдущие исследования показали, что ДНК-вакцины могут эффективно стимулировать клеточные и гуморальные реакции против патогенов в моделях заражения.10]. Кроме того, недавние клинические исследования показали, что ДНК-вакцины являются безопасными и эффективными кандидатами для лечения или профилактики инфекционных заболеваний, таких как ВИЧ-1, вирус Зика, вирус Эбола, MERS-CoV и вирусы гриппа.11]. Поскольку пандемия COVID-19 распространилась по всему миру и серьезно распространилась, недавние исследования показали, что ДНК-вакцины вызывают антигенспецифические реакции Т-клеток и нейтрализующие антитела, а также дополнительно защищают животных от заражения SARS-CoV-2 [12, 13].
Основной проблемой ДНК-вакцин является низкая эффективность доставки ДНК в клетки для экспрессии антигена и, как следствие, низкая эффективность вакцин. Для повышения эффективности доставки ДНК можно использовать физические или химические методы. Физические методы включают поток воздуха под высоким давлением (т.е. биоджектор), доставку ДНК, покрытой золотыми частицами, с помощью генной пушки, микроиглы и электропорацию (EP). Химические методы включают липосомы, виросомы, наночастицы и проникающие в клетку пептиды.14]. Во время вспышки вируса Зика в 2015 году ДНК-вакцина против Зика, доставленная посредством электропорации, была доведена до фазы 1 клинических испытаний в течение 7 месяцев.15]. ЭП в сочетании с ДНК-вакциной значительно повышает эффективность ДНК-вакцин [16–18]. Благодаря успешным результатам экспериментов на животных после вакцинации ДНК ЭП было разработано множество различных устройств электропорации для человека, в том числе Cellectra® (Inovio Inc., США) и TriGrid® (Ichor Medical Systems, США).
В этом исследовании описывается ДНК-вакцинация EP, которая может индуцировать нейтрализующие антитела и Th1-предвзятые иммунные ответы. Хомяки, иммунизированные этим методом, вырабатывали нейтрализующие антитела против SARS-CoV-2. Кроме того, иммунизированные хомяки продемонстрировали защитный иммунитет при заражении вирусом SARS-CoV-2.
Методы
Заявление об этике
Все протоколы экспериментов на животных были одобрены Институциональным комитетом по уходу и использованию животных (IACUC) NHRI (Протокол №: NHRI-IACUC-109077-A).
Сотовые линии
Линию клеток эмбриональной почки человека HEK293T культивировали в модифицированной Дульбекко среде Игла (DMEM, GIBCO) с добавлением 10% термоинактивированной фетальной бычьей сыворотки (FBS, HyClone), 100 ед/мл пенициллина/стрептомицина (GIBCO) и 2 мМ L-глутамина. (ГИБКО). Клетки Vero культивировали в среде M199 (GIBCO) с 5% FBS при 37 градусах.
Титрование вируса
Варианты SARS-CoV-2 (hCoV-19/Taiwan/4/2020 и hCoV-19/Taiwan/78/2020 (вариант D614G)) были получены из Центров по контролю заболеваний (CDC). ) в Тайване. Вирус амплифицировали в клетках Vero, выращенных в среде M199, дополненной 2 мкг/мл TPCK-трипсина (Sigma) при 37 градусах. Титр вируса определяли в пересчете на 50% инфекционную дозу тканевой культуры (TCID50) по стандартной методике.19]. Вкратце, клетки Vero высевали (2,4×10⁴ клеток/лунку) в планшеты с 96-лунками и культивировали в среде M199 с 5% FBS при 37 градусах в течение 24 часов для образования монослоя. На следующий день готовили серийные 10-кратные разведения и разбавленный вирус (100 мкл/лунку) добавляли к монослоям клеток Vero с восемью повторами на разведение. После 4 дней инкубации при 37°C в каждой лунке регистрировали индуцированные вирусом цитопатические эффекты (CPE), и результаты выражали как TCID50/мл согласно методу Рида и Мюнха. Все эксперименты с SARS-CoV-2 проводились в лаборатории уровня биобезопасности 3 (BSL-3) и были одобрены Тайваньским CDC.

Преимущества цистанхе – укрепляют иммунную систему
Нажмите здесь, чтобы просмотреть продукты Cistanche Enhance Immunity
【Запросить дополнительную информацию】 Электронная почта:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
Плазмидная конструкция и характеристика
Последовательности ДНК, кодирующие полноразмерные гены SARS-Spike (номер доступа в GenBank DQ412574) и SARS-CoV-2 (номер доступа в GenBank: MN908947), были оптимизированы для использования кодонов мыши и синтезированы компанией GenScript Biotech. Различные фрагменты S (tRBD, tRBDTM, tSARS2-S, tSdTM) также были сконструированы и индивидуально амплифицированы с помощью ПЦР. Все гены были субклонированы в клинически используемый вектор pVAX1 с последовательностью Козака, включенной в 5'-конец генов. Плазмиду трансформировали в DH5 E.coli для амплификации плазмиды. Плазмиды экстрагировали и очищали с использованием системы колонок Qiagen, не содержащей эндотоксинов (EndoFree Plasmid Mega Kit).
Временная экспрессия и вестерн-блоттинг
Клетки HEK293T трансфицировали указанными ДНК-плазмидами с использованием реагента PolyJet™ (SignaGen Laboratories) в соответствии с протоколом производителя. Через 24 часа после трансфекции клеточные лизаты собирали и подвергали электрофорезу на 8% SDS-PAGE. Затем белки переносили на мембраны из ПВДФ и блотировали кроличьими поликлональными антителами против спайков (40592-T62, Sino Biological). В качестве вторичного антитела использовали антикроличьи антитела, конъюгированные с пероксидазой хрена (HRP). Специфические белки на мембране визуализировали с помощью реагента ECL (Thermo Scientific).
Иммунизация животных
Мыши BALB/c, C57BL/6 и сирийские хомячки были получены из Национального центра разведения и исследования лабораторных животных (Тайбэй, Тайвань). Мышей или хомяков использовали в возрасте от 6 до 12 недель. Анестезированных мышей или хомяков вакцинировали 100 мкл раствора, содержащего указанную ДНК, с интервалом 3-недель, с последующей электропорацией с помощью электропоратора BTX (ECM830) с использованием двухигольных матричных электродов (диаметр 5- мм ( БТХ 45–0121)). Внутримышечную электропорацию проводили при постоянном напряжении 75 В, 10 импульсов с частотой 50 мс/импульс и интервалами между импульсами 100 мс. Образцы крови мышей и хомяков собирали путем подчелюстного или ретроорбитального забора крови соответственно. Все животные содержались в Центре лабораторных животных Национального института медицинских исследований (NHRI) и содержались в соответствии с институциональными протоколами ухода за животными.
Иммуноанализ
Наличие S-специфических антител в сыворотках определяли методом ИФА. Вкратце, 50 мкл 4 мкг/мл рекомбинантного белка (Sino Biological) в 0.1 М карбонатном буфере (рН 9,5) наносили на лунки 96-микропланшетов путем инкубации в течение ночи при 4°С. степень . Планшеты с покрытием дважды промывали 0,05% Tween 20 в PBS, а затем блокировали 3% BSA в PBS при комнатной температуре в течение 2 часов. Разведенную сыворотку иммунизированных животных наносили на лунки при комнатной температуре на 2 часа. После добавления HRP-конъюгированного козьего антимышиного IgG (Thermo Scientific) или HRP-конъюгированного козьего анти-хомячьего IgG (Arigo Biolaboratorie) анализ был разработан с использованием SureBlue TMB 1-компонентного субстрата пероксидазы (KPL). Поглощение измеряли с помощью считывателя ELISA при 450 нм.
Нейтрализация вирусной инфекции SARS-CoV-2
Клетки Vero высевали (2,4×10⁴ клеток/лунку) в планшеты с 96-лунками на 24 часа для формирования монослоя. Преиммунные сыворотки и антисыворотки против S-белка SARS-CoV-2 предварительно обрабатывали при 56 градусах в течение 30 минут для разрушения термолабильных неспецифических вирусных ингибирующих веществ. Сыворотки разводили до первоначального разведения 1/20 средой M199, добавляли в лунку, содержащую 200 TCID50 вируса SARS-CoV-2 в объеме 0,2 мл, а затем инкубировали при 37 градусах в течение 2 часов. Затем смесь вируса и сыворотки инокулировали на монослои клеток Vero и инкубировали при 37 градусах. Для каждого разведения сыворотки готовили четверные экземпляры. Характеристики ЦПЭ в каждой лунке регистрировали через 4–5 дней инкубации. Титр нейтрализации был пропорционален наибольшему разведению сыворотки, что предотвращало инфицирование в 50% четырехкратных инокуляций.
ИФА для соревнований ACE2
Конкурентный ELISA ACE2 проводился с использованием набора для серологического анализа титра нейтрализующих антител Anti-SARS-CoV-2 (ACROBiosystems) в соответствии с рекомендуемым протоколом. Вкратце, 96-луночные планшеты покрывали 0,5 мкг/мл белка SARS-CoV-2-S RBD в течение ночи при температуре 4 градуса. Планшет промывали и блокировали блокирующим буфером при 37 градусах на 1,5 часа. После трех промываний в лунки добавляли биотинилированный человеческий ACE2 (0,12 мкг/мл) с последующим разбавлением образцов сыворотки и инкубацией при 37 градусах в течение 1 часа. Для построения стандартной кривой в качестве эталона использовали нейтрализующее антитело против SARS-CoV-2, входящее в набор. Планшет промывали и в каждую лунку добавляли рабочий раствор стрептавидин-HRP на 1 час при 37 градусах. Затем планшет промывали и анализ проводили путем инкубации с рабочим раствором субстрата ТМВ при 37 градусах в течение 20 минут. Реакцию останавливали с помощью стоп-раствора. Поглощение измеряли с помощью считывателя ELISA при 450 нм. Конкурентную активность сывороточных антител выражали как соответствующий уровень эталонного антитела.
Анализ продукции цитокинов
Т-клеточные ответы оценивали с помощью цитокинового ELISA. Спленоциты иммунизированных мышей высевали с плотностью 5×10⁶ клеток на лунку в 24-луночные планшеты. Клетки стимулировали 5 мкг/мл рекомбинантного белка SARS-CoV-2 Spike (ACROBiosystems) при 37 градусах в течение 3 дней. Супернатант собирали и анализировали на выработку цитокинов. Мышиный IL-2, IL-5, IL-13 и IFN- определяли количественно с помощью ELISA с использованием соответствующего набора антител (Invitrogen) в соответствии с инструкциями производителя.
Вызов животных
Сирийских хомяков (n=8 на группу) иммунизировали внутримышечно путем инъекции иглой плазмидной ДНК (100 мкг/животное) с последующей электропорацией BTX, как указано выше. Через четыре недели после последней вакцинации хомякам вводили интраназально 105 TCID50 SARS-CoV-2 (hCoV-19/Taiwan/4/2020) в 50 мкл под изофлурановой анестезией. Массу их тела (n=4 на группу) регистрировали каждый день в течение 9 дней после заражения. Четырех хомяков в каждой группе умерщвляли на 3-й день после заражения для количественного определения вирусной нагрузки. Для определения вирусной нагрузки в легких ткани левого легкого гомогенизировали в 2 мл PBS с использованием диссоциатора GentleMACS® (MilteNY Biotec). После центрифугирования при 600 g в течение 5 минут осветленный супернатант собирали для титрования живого вируса (анализ TCID50) и количественного определения вирусной РНК.
Количественная оценка нагрузки вирусной РНК
Осветленный супернатант гомогенизированной ткани левого легкого от хомячков, инфицированных SARS-CoV-2-, собирали для определения вирусной нагрузки. Экстракцию РНК проводили из супернатанта ткани, лизированной TRIzol LS (Ambion), и 10 нг РНК использовали в качестве матрицы для реакций RT-qPCR. RT-qPCR выполнялась на системе ПЦР в реальном времени QuantStudio 6 Flex (ABI) с использованием универсального набора для одноэтапной qRT-PCR KAPA PROBE FAST (KR1282, Roche) с праймерами и зондами, специфичными для SARS-CoV-2 (E_Сарбеко вперед: ACAGGTACGTTAATAGTTAATAGCGT, E_Сарбеко назад: ATATTGCAGCAGTACGCACACA, E_Зонд Сарбеко: FAM-ACACTAGCCATCCTTACTGCGCTTCG-BHQ1) [20].

Преимущества цистанхе трубчатой-укрепить иммунную систему
Статистический анализ
Статистические данные были получены с использованием программного обеспечения GraphPad Prism. Статистическую значимость различий между экспериментальными группами определяли с помощью двустороннего критерия Манна-Уитни. Различия считались статистически значимыми, если значение p было меньше или равно 0,05.
Полученные результаты
Плазмидная конструкция и экспрессия антигена вакцин-кандидатов
Были созданы пять вариантов SARS-CoV-2 и одна конструкция SARS-CoV, содержащая различные фрагменты ДНК, кодирующей спайковый белок (Рис. 1А). Поскольку экспрессия антигена сильно коррелирует с эффективностью вакцины, мы разработали различные фрагменты белка-шипа, включая RBD (aa319-aa541), RBD to TM (aa319-aa1236) или Spike с трансмембранным доменом (TM). делеция (aa13-aa1213) с лидерной последовательностью активации тканевого плазминогена человека (tPA), которая может увеличивать секрецию антигенов [21]. Домен RBD-TM может сохранять домен S2, который важен для формирования шестиспиральной структуры для слияния клеток.22, 23]. Эти конструкции были следующими: полноразмерный S SARS-CoV (pSARS-S) и SARS-CoV-2 (pSARS2-S), полноразмерный шип с лидерной последовательностью тканевого плазминогена. активатор (ptSARS2-S), регион RBD (ptRBD), RBD к трансмембранному домену (ptRBDTM) и спайк с делецией трансмембранного домена (PTSD). Вектор, pSARS-S и pSARS2-S трансфицировали и экспрессировали в клетках HEK293T. Клеточные лизаты анализировали с помощью SDS-PAGE. Полноразмерный S может быть обнаружен при соответствующей молекулярной массе (Рис. 1Б). Вариант S SARS2-CoV-2 с лидерной последовательностью тканевого активатора плазминогена был обнаружен с помощью антиспайкового поликлонального антитела. Данные показали, что каждый вариант наблюдался при ожидаемой молекулярной массе (Рис. 1С). Уровни экспрессии вариантов ptSARS2-S, ptRBDTM и ptSdTM были сходными, тогда как экспрессия ptRBD была выше во всех вариантах.

Рис. 1. Дизайн и экспрессия вариантов конструкции шипов SARS-CoV и SARS-CoV-2.
(A) Схематическая диаграмма вариантов конструкции шипов SARS-CoV и SARS-CoV-2. tPA, лидерная последовательность тканевого активатора плазминогена; ТМ, трансмембранный домен. (B, C) Вестерн-блоттинг белка-шипа. Клетки HEK293T трансфицировали указанными плазмидами (вектор, варианты pSARS-S, pSARS2-S и S, слитые с лидерной последовательностью tPA). Клеточные лизаты собирали и исследовали с помощью антитела против спайков, а антитело против - -актина использовали в качестве внутреннего контроля.
Иммуногенность вакцин-кандидатов
Чтобы изучить иммуногенность различных вариантов, мышам BALB/c дважды с 3-недельным интервалом внутримышечно вводили по 100 мкг вектора, pSARS-S и pSARS2-S с последующей электропорацией in vivo (Рис. 2А). Сыворотку собирали на 4-й и 6-й неделе после первой иммунизации. Данные показали, что сыворотка животных, иммунизированных pSARS-S и pSARS2-S, могла распознавать как полноразмерные области S, так и S2 SARS-CoV-2 со схожими титрами антител IgG (Рис. 2Б и 2С.). Напротив, сыворотка животных, иммунизированных pSARS2-S, могла повышать высокие титры антител против RBD (SARS-CoV-2) на 4-й и 6-й неделе (Рис. 2D), по сравнению с группой pSARS-S. Соответственно, сыворотка животных, иммунизированных pSARS2-S, но не животных, иммунизированных pSARS-S, могла нейтрализовать инфекцию SARS-CoV-2 (Рис. 2Е). Средние геометрические титры (log2) нейтрализующих антител в группе иммунизации pSARS2-S на 4-й и 6-й неделе составляли 9,3 и 10,3 соответственно. Эти результаты показали, что иммунизация pSARS-S не может индуцировать антитела перекрестной нейтрализации против инфекции SARS-CoV-2. RBD-специфичные антитела имели решающее значение для нейтрализующей активности против инфекции SARS-CoV-2. Полноразмерный S SARS-CoV-2 действительно может индуцировать высокие уровни титров нейтрализующих антител против инфекции SARS-CoV-2.

Рис. 2. Антительный ответ у мышей после иммунизации ДНК-вакцинами SARS-CoV и SARS-CoV-2 S.
(A) Мышей BALB/c (n=4 на группу) дважды внутримышечно иммунизировали с 3-недельным интервалом 100 мкг указанной плазмиды с последующей электропорацией. Образцы сыворотки собирали в указанные моменты времени после первой иммунизации. (BD, F, G) Антитела против полноразмерного шипового белка SARS-CoV-2, области S2 и RBD оценивали с помощью ELISA. (E, H) Вызванное вакциной нейтрализующее антитело против SARS-CoV-2 оценивали с помощью анализа нейтрализации. Титры антител представлены как среднее значение ± SEM, а титры нейтрализации выражаются как среднее геометрическое с 95% доверительным интервалом. *п<0.05 by the Mann-Whitney test.
Для дальнейшего изучения того, может ли замена лидерной последовательности увеличить секрецию белка, мы использовали лидерную последовательность тканевого активатора плазминогена для слияния различных вариантов S-белка SARS-CoV-2. Все варианты содержат область RBD белка S SARS-CoV-2. После иммунизации двумя дозами ДНК сыворотки, собранные на неделе 4 и неделе 6, анализировали на наличие антител IgG и титров нейтрализующих антител. Иммунизация ptSARS2-S вызывала более высокие титры антител против полноразмерного белка S на неделе 4, чем иммунизация ptRBD, ptRBDTM и ptSdTM (S1A Рис.). Титры антител против RBD при иммунизации ptRBD были выше, чем при иммунизации ptSARS2-S (1496,2 против 530,9, p= 0.057) на 4 неделе (S1B Рис.). Однако иммунизация ptRBD и ptSARS2-S вызывала сходные уровни нейтрализующих антител на 4-й неделе (S1C Рис.). Те же результаты наблюдались при анализе сыворотки на 6 неделе; Иммунизация ptRBD вызывала более высокие уровни антител против RBD по сравнению с иммунизацией ptSARS2-S (12589,3 против 1000,0, p=0.028), но те же уровни нейтрализующих антител (9,3 против 9,6 (log2)) (рис. 2F, 2G и 2H). Поскольку варианты, слитые с лидерной последовательностью tPA, не индуцировали более высокие титры нейтрализующих антител, чем иммунизация pSARS2-S, мы использовали pSARS2-S для дальнейшего исследования.
Конкурентное связывание сывороточных антител и ACE2 с SARS-CoV-2 RBD
Чтобы изучить способность сывороточных антител вмешиваться во взаимодействие ACE2-RBD, мы провели конкурентный серологический анализ SARS-CoV-2. В этом анализе сывороточные антитела добавляли в планшеты для ELISA, предварительно покрытые белком SARS-CoV-2 RBD, с последующим добавлением человеческого белка ACE2. В качестве эталона использовали специфическое нейтрализующее антитело против SARS-CoV-2 RBD. Как показано вРис. 3, сывороточные антитела мышей, иммунизированных pSARS2-S, связывались с RBD и блокировали связывание ACE2, что было эквивалентно приблизительно 353 мкг/мл эталонного антитела, тогда как сыворотка pSARS-S была эквивалентна 56 мкг/мл эталонного антитела. Таким образом, наши данные свидетельствуют о том, что иммунизация pSARS2-S может индуцировать конкурентные антитела, которые эффективно блокируют связывание RBD SARS-CoV-2 с рецептором ACE2. Этот результат соответствовал титру ИФА против SARS-CoV2 RBD (Рис. 2D), и подтверждается исследованием разницы последовательностей RBD между SARS-CoV и SARS-CoV-2 [24].
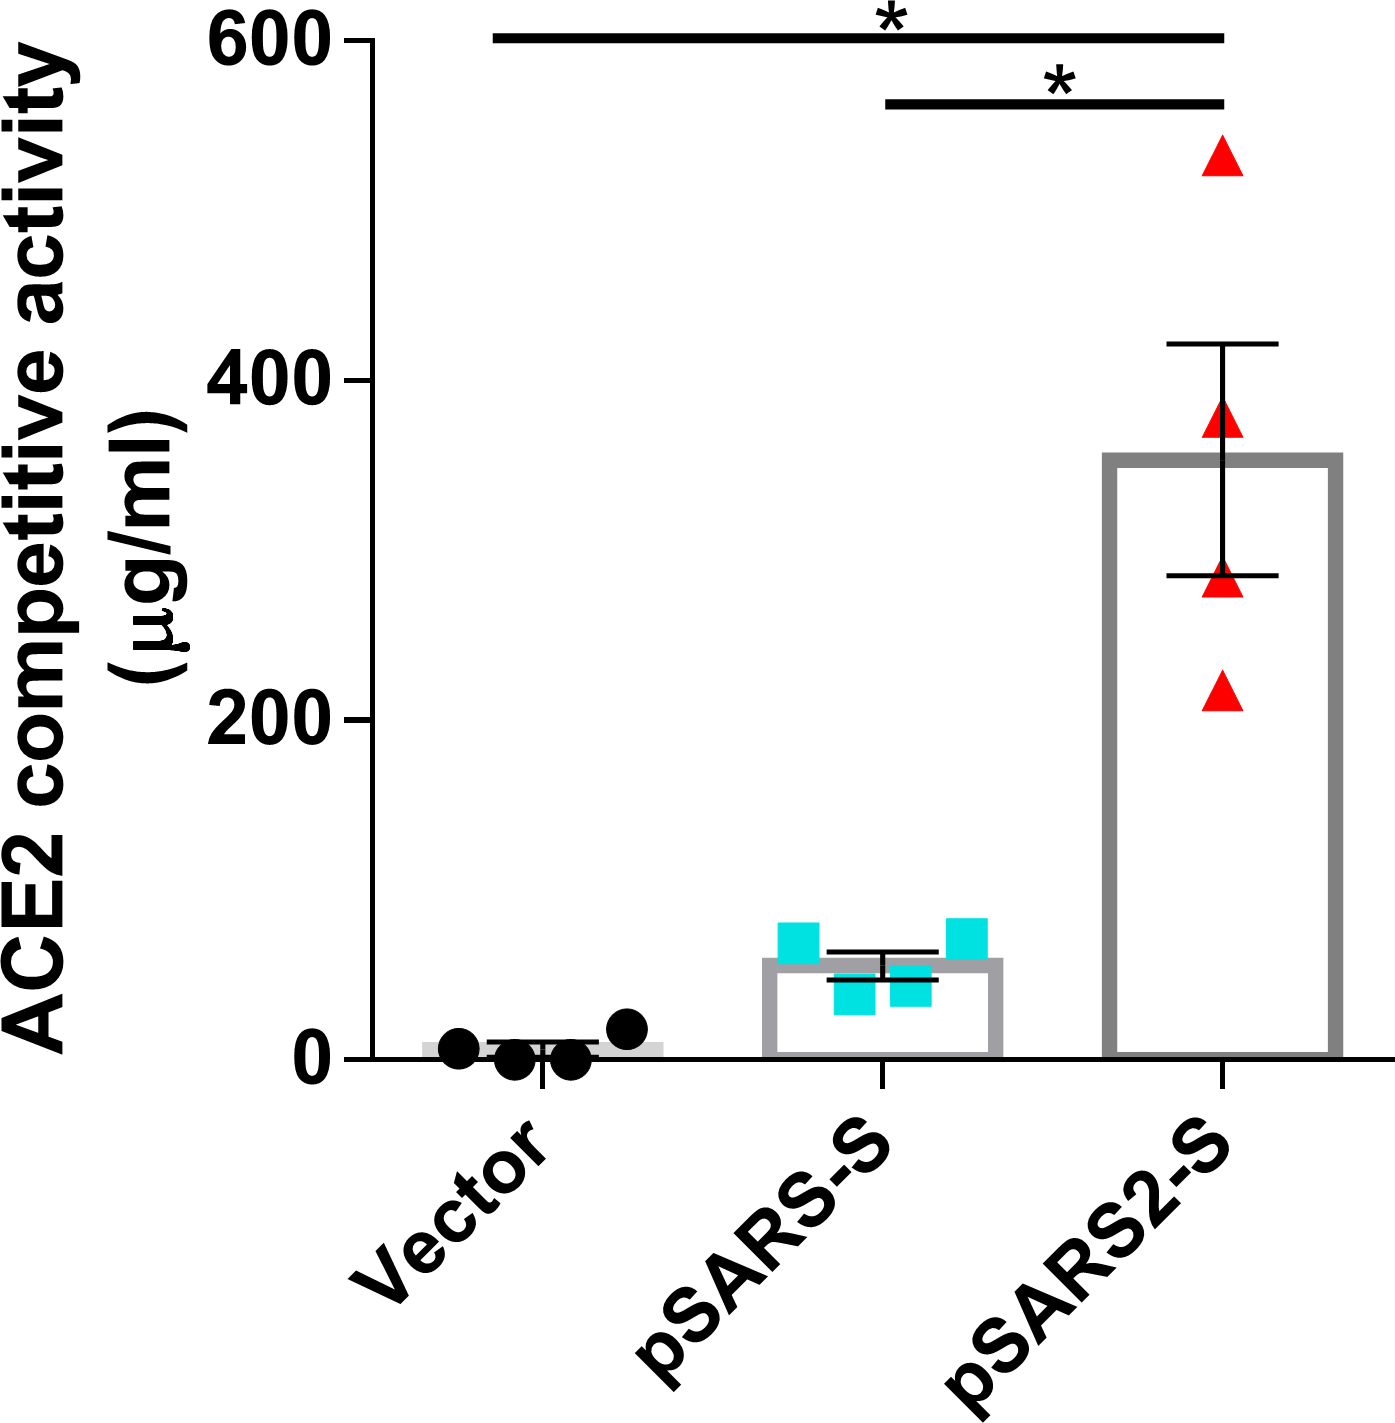
Рис. 3. Конкурентная активность сывороток иммунизированных мышей против взаимодействия RBD/ACE2.
Мышей BALB/c (n=4 на группу) дважды внутримышечно иммунизировали с интервалом 3-недель 100 мкг вектора pSARS-S или pSARS2-S с последующей электропорацией. Образцы сыворотки собирали на 8 неделе после первой иммунизации. Сывороточные антитела, которые конкурируют с ACE2 за связывание RBD, оценивали с помощью конкурентного серологического анализа SARS-CoV-2. Конкурентная активность мышиной сыворотки выражается как эквивалентный уровень антитела против RBD (спайковый белок SARS-CoV-2) (эталонное антитело). Титры антител представлены как среднее ± SEM. *п<0.05 by the Mann-Whitney test.
SARS-CoV-2 S ДНК-вакцина индуцирует долгосрочный гуморальный иммунитет и обеспечивает перекрестную защиту от SARS-CoV-2 с мутацией D614G
Примечательно, что долгосрочное поддержание титров антител IgG против полноразмерного S наблюдалось через 20 недель после первой иммунизации (Рис. 4А.). Среднегеометрические титры (log2) нейтрализующих антител к SARS-CoV-2 достигли 10,8 на 8-й неделе после иммунизации pSARS2-S, слегка снизившись до 9,1 на 12-й неделе и до 8,8 на 20-й неделе (Рис. 4Б.). Эти результаты позволяют предположить, что иммунизация pSARS2-S обеспечивает длительный гуморальный ответ против SARS-CoV-2. Кроме того, ДНК-вакцина pSARS2-S с генотипом D614 индуцировала реакцию нейтрализующих антител против вируса, содержащего мутацию D614G (Рис. 4С), что аналогично титру нейтрализации генотипа D614. Таким образом, pSARS2-S способен обеспечивать перекрестную защиту от наиболее распространенного и доминирующего варианта D614G SARS-CoV-2.

Рис. 4. ДНК-вакцина SARS-CoV-2 S индуцировала долговременный гуморальный иммунитет и перекрестную защиту от SARS-CoV-2 с мутацией D614G.
Мышей BALB/c (n=4 на группу) трижды внутримышечно иммунизировали с 3-недельным интервалом 100 мкг вектора pSARS-S или pSARS2-S с последующей электропорацией. Образцы сыворотки собирали в указанные моменты времени после первой иммунизации. (A) Антитела против полноразмерного шиповидного белка SARS-CoV-2 оценивали с помощью ELISA. (B, C) Индуцированную вакциной нейтрализующую активность против SARS-CoV-2 с генотипами D614 или G614 оценивали с помощью анализа нейтрализации. Титры антител представлены как среднее значение ± SEM, а титры нейтрализации выражаются как среднее геометрическое с 95% доверительным интервалом. *п<0.05 by the Mann-Whitney test.
Индукция Th1- или Th2-предвзятых ответов
Эффекторные CD4+ Т-клетки можно разделить на две основные функциональные подгруппы, Th1 и Th2, в зависимости от секретируемых цитокинов при активации. Клетки Th1 продуцируют воспалительные цитокины (IFN-) и участвуют в клеточно-опосредованном иммунном ответе на внутриклеточные бактерии и вирусы, тогда как секретирование клеток Th2 в основном помогает B-клеткам вырабатывать антитела, но также способствует опосредованному эозинофилами иммунитету (IL-5 и IL{ {9}}), что приводит к гуморальным или аллергическим реакциям [25, 26]. Более того, механизмы, зависимые от клеток Th2, могут способствовать усилению респираторных заболеваний, связанных с вакцинацией (VAERD), как показали исследования кандидатов на вакцину против SARS-CoV.27, 28], которые подчеркивают, что сбалансированный ответ Т-клеток имеет решающее значение для разработки безопасной вакцины против COVID-19 [29]. Чтобы решить эту проблему, мышей BALB/c и C57BL/6 иммунизировали вектором pSARS-S и pSARS2-S дважды с интервалом в 3-недели. Мышей умерщвляли через 7 дней после второй иммунизации, а спленоциты стимулировали S-белком SARS-CoV-2 (5 мкг/мл) в течение 3 дней. У мышей BALB/c (Рис. 5A–5D), секреция цитокинов типа Th1 IFN- (19641,3 пг/мл ± 8823,5) и IL-2 (599,5 пг/мл ± 37,7) была высокой после стимуляции белком S в pSARS2-S В группе иммунизации были обнаружены очень низкие уровни цитокинов Th2-типа IL-5 (18,1 пг/мл ± 11,8) и IL-13 (567,2 пг/мл ± 166,2). Аналогичные результаты наблюдались у мышей C57BL/6, группа иммунизации pSARS2-S индуцировала большее количество IFN- (33918,8 пг/мл ± 11646,1) и IL-2 (800,3 пг/мл ± 109,5), чем эта группа. IL-5 (4,6 пг/мл ± 2,9) и IL-13 (545,7 пг/мл ± 117,4) (Рис. 5E–5H.). Эти данные позволили предположить, что pSARS2-S может вызывать Th1-предвзятые иммунные реакции.

Рис. 5. Т-клеточный ответ у мышей после иммунизации ДНК-вакцинами pSARS-S и SARS2-S.
Мышей BALB/c (AD) и C57BL/6 (EH) (n=4 на группу) дважды внутримышечно иммунизировали с 3-недельным интервалом 100 мкг вектора, pSARS-S или pSARS{{ 8}}S с последующей электропорацией. Спленоциты собирали на 4-й неделе после первой иммунизации и определяли уровни секретируемых IFN- (A, E), IL-2 (B, F), IL-5 (C, G) и IL. -13 (D, H) оценивали после рестимуляции рекомбинантным S-белком SARS-CoV-2. Титры антител представлены как среднее ± SEM. *п<0.05 by the Mann-Whitney test.
Профилактическая эффективность ДНК-вакцин против SARS-CoV-2 Challenge
Чтобы изучить защитную эффективность вакцинации против SARS2-S, сирийских хомяков дважды иммунизировали 100 мкг ДНК с 3-недельным интервалом, а на 7-й неделе интраназально вводили вирус SARS-CoV-2. (Рис. 6А). После иммунизации на 4-й и 6-й неделе собирали сыворотку для анализа титра антиспайковых антител (IgG) и титра нейтрализующих антител. Иммунизация pSARS2-S вызывала более высокие уровни титров антител против Spike, чем иммунизация ptRBD на 4-й неделе (1584,9 против 50,1) и 6 неделе (1995,3 против 63,1) у хомяков (Рис. 6Б.). В соответствии с титром антител против Спайка сыворотка хомяков, иммунизированных pSARS2-S, имела очень высокие титры нейтрализующих антител (6,5 на 4-й неделе и 6,4 на 6-й неделе (log2)), но сыворотки вектор- или хомяки, иммунизированные ptRBD, этого не сделали (Рис. 6С). После заражения SARS-CoV-2 массу тела хомяка контролировали каждый день. Предыдущие исследования показали, что титр вируса в легких хомяков достигал высокого уровня через 3 дня после заражения.30]. Поэтому половину хомяков из каждой группы умерщвляли на 3-й день и анализировали вирусную нагрузку в легких. Масса тела хомяков, вакцинированных вектором, постепенно уменьшалась, и процент потери массы тела составил 11,1% через 6 дней после заражения. Напротив, иммунизация pSARS2-S защищала хомяков от потери массы тела (Рис. 6D). Кроме того, титры инфекционного вируса и количество копий вирусной РНК в группе pSARS2-S показали снижение на 2,29 и 1,37 log10 по сравнению с контрольной группой вектора (Рис. 6E и 6F.). Эти результаты позволяют предположить, что иммунизация pSARS2-S обеспечивает защиту от инфекции SARS-CoV-2 у сирийских хомяков.
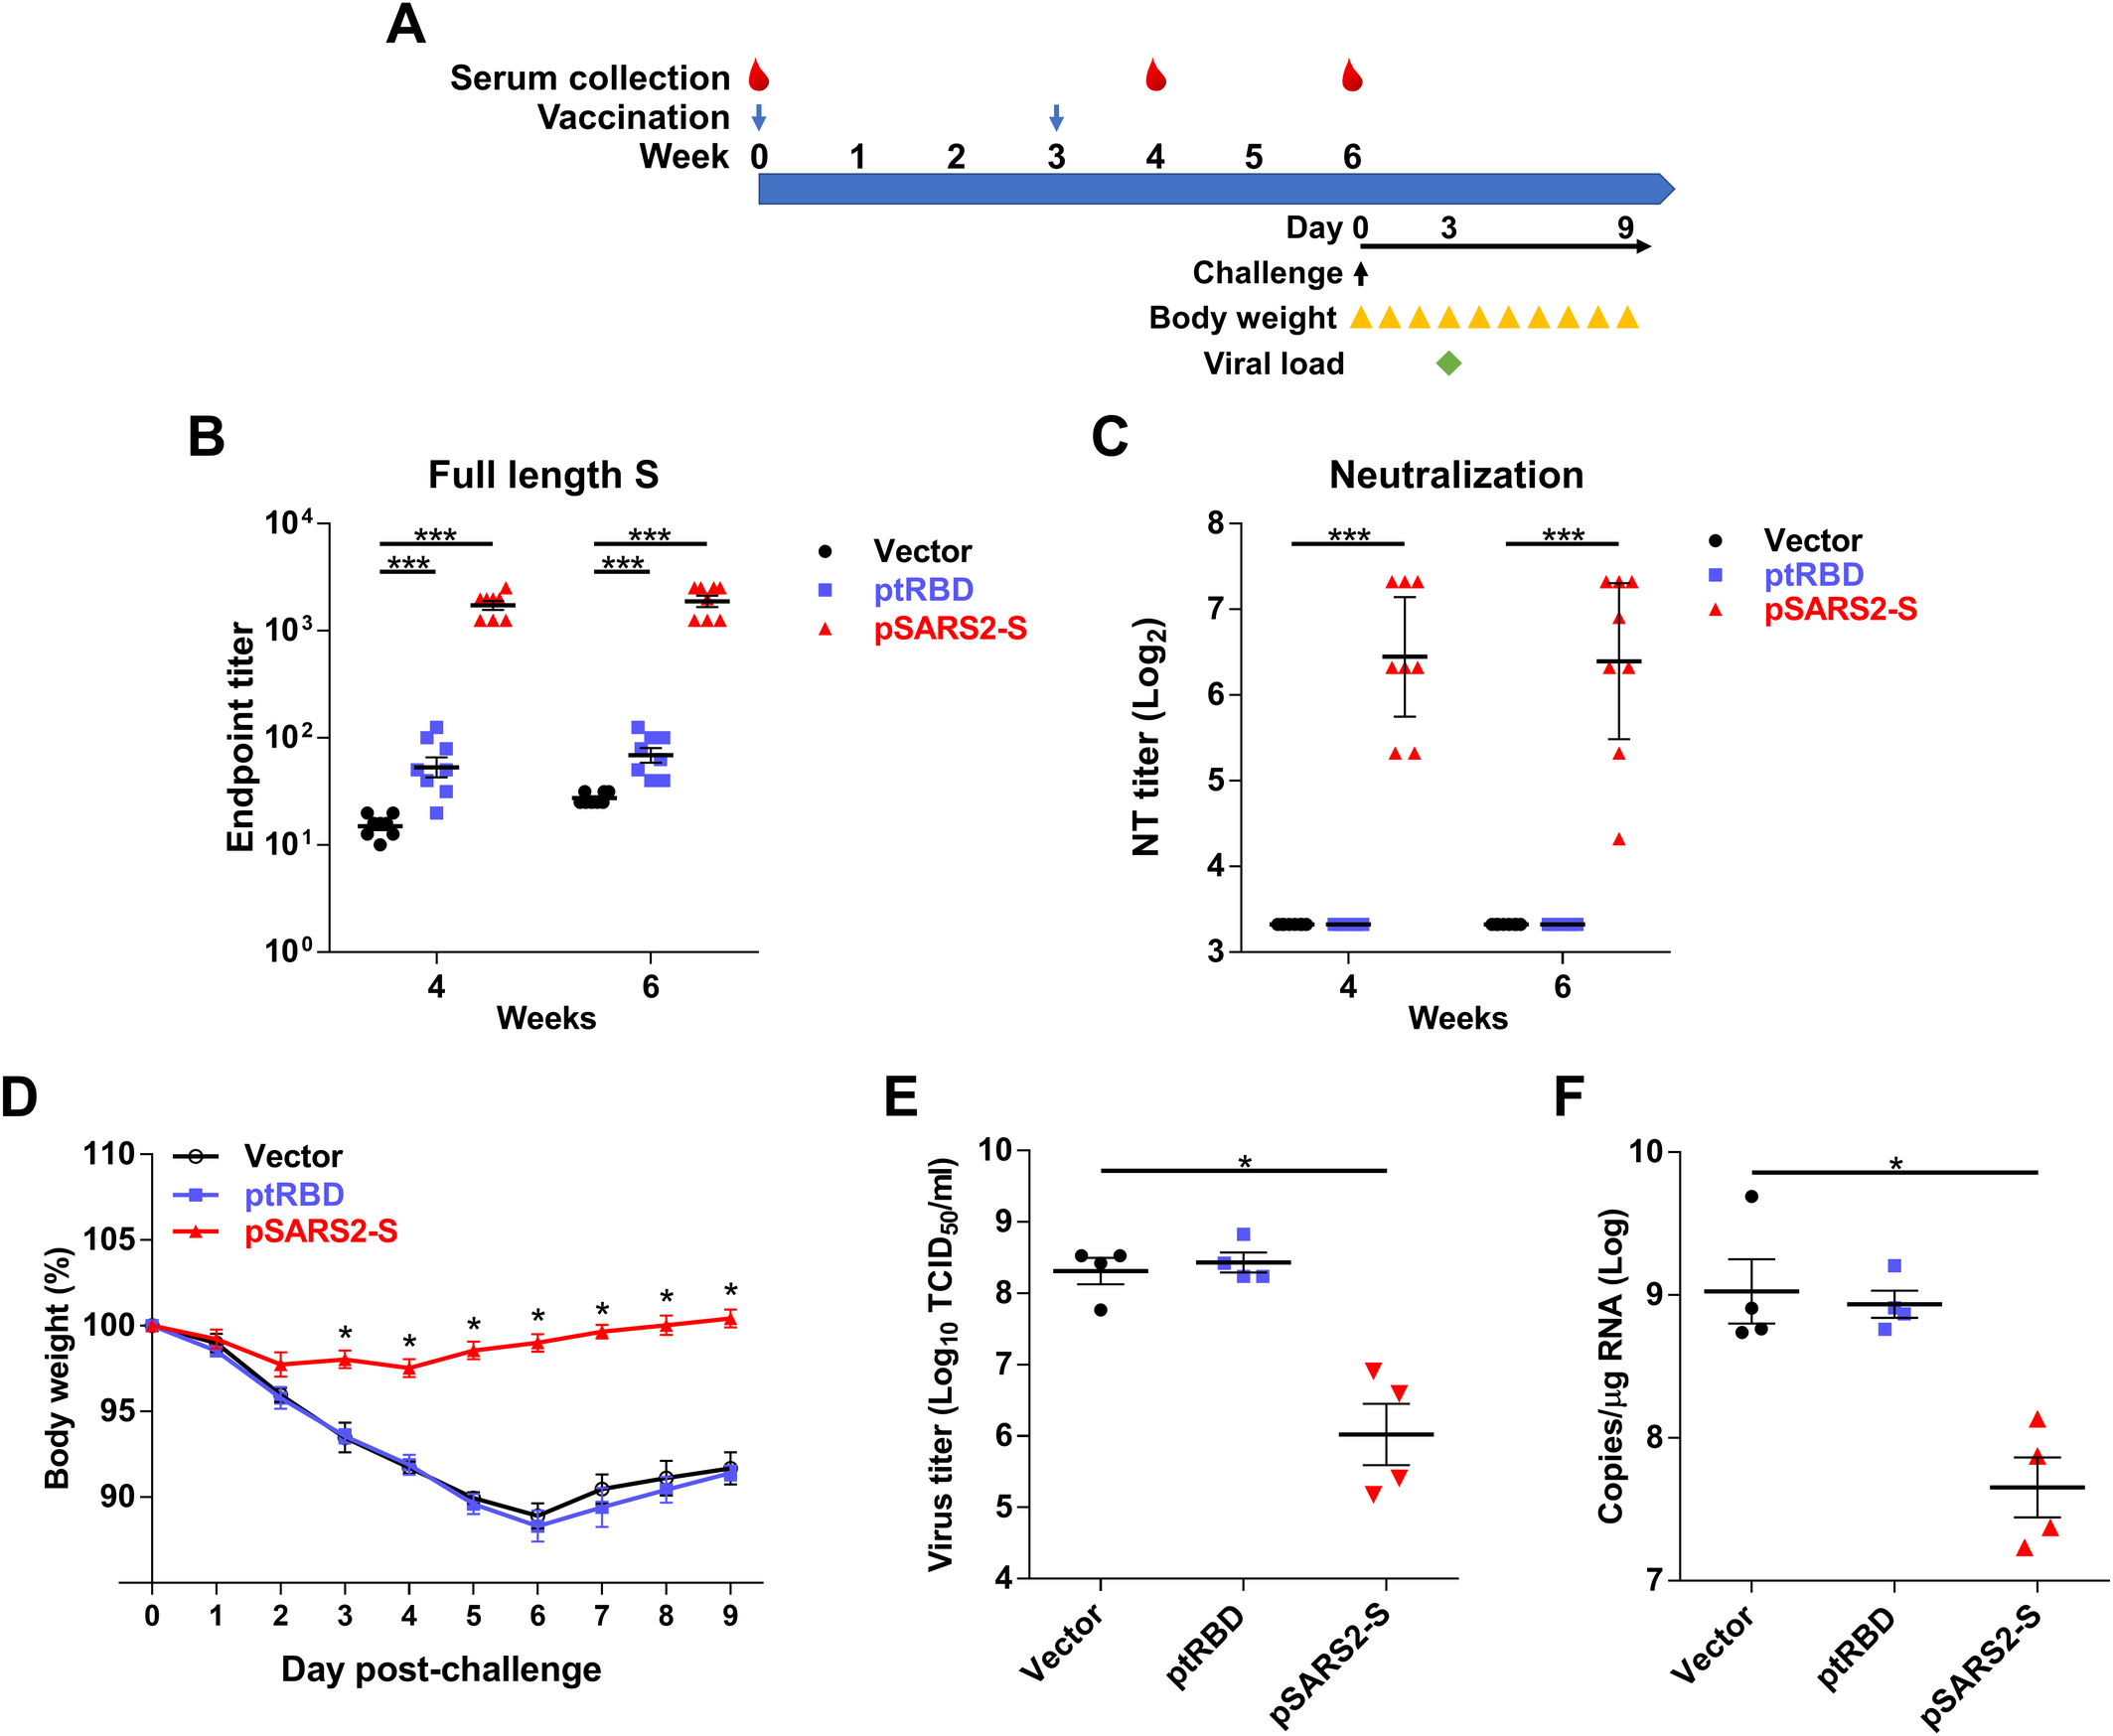
Рис. 6. Профилактическая эффективность ДНК-вакцины SARS-CoV-2 S у хомячков, инфицированных SARS-CoV-2-.
(A) Временной ход ДНК-вакцинации и заражения SARS-CoV-2. Сирийских хомяков дважды внутримышечно иммунизировали с 3-недельным интервалом 100 мкг контрольного препарата pSARS-S или pSARS2-S с последующей электропорацией. Образцы сыворотки собирали ретроорбитально, через 4 и 6 недель после первой иммунизации. Через 4 недели после второй иммунизации сирийским хомякам интраназально вводили 105 TCID50 SARS-CoV-2. (B) Антитела против полноразмерного шиповидного белка SARS-CoV-2 оценивали с помощью ELISA. (C) Индуцированную вакциной нейтрализующую активность против SARS-CoV-2 оценивали с помощью анализа нейтрализации. (D) Изменение массы тела (%) хомяков регистрировали каждый день после заражения SARS-CoV-2. Титры вируса (E) и копии вирусной РНК (F) в легких хомячков, инфицированных SARS-CoV-2-, через 3 дня после заражения определяли с помощью анализа TCID50 и qRT-PCR соответственно. Титры антител представлены как среднее значение ± SEM, а титры нейтрализации выражаются как среднее геометрическое с 95% доверительным интервалом. *п<0.05, ***p<0.001 by the Mann-Whitney test.
Обсуждение
Было начато более 80 клинических испытаний вакцины против COVID-19, а исследования иммуногенности и заражения вирусом на животных являются важнейшими этапами в процессе разработки вакцины. ДНК-вакцины против инфекции SARS-CoV-2 интенсивно разрабатываются для различных способов доставки. Электропорация — многообещающий подход, который может улучшить доставку ДНК и антигенность иммуногенов in vivo. Сообщалось о двух исследованиях ДНК-вакцин, проведенных Yu et al. [13] и Смит и др. [12]. Yu et al. found that rhesus macaques immunized with naked DNA encoding full-length S protein (without electroporation) exhibited >Снижение вирусной нагрузки в бронхоальвеолярном лаваже на 3,1 log10 после заражения по сравнению с контролем. Смит и др. обнаружили, что иммунизация мышей и морских свинок INO-4800 (кодирующим полноразмерный белок S) с помощью электропорации может вызывать нейтрализующие антитела против инфекции SARS-CoV-2 и блокировать связывание белка S с рецептором ACE2, но не не предоставлять данные о заболевании животных. В этом отчете мы оценили различные варианты кандидатов на ДНК-вакцины и обнаружили, что полноразмерный белок S (pSARS2-S) является наиболее подходящим для дальнейшего иммунологического исследования. Хотя SARS-CoV и SARS-CoV-2 имеют 76% гомологии в своих S-белках [31, 32], иммунизация pSARS-S не может индуцировать антитела против RBD белка S SARS-CoV-2 или титры нейтрализующих антител против инфекции SARS-CoV-2 (Рис 2). Действительно, антитела против RBD играют важную роль в блокировании вирусной инфекции. Однако иммунизация только RBD (ptRBD) вызывала высокие титры нейтрализующих антител у мышей, но не у хомяков (рис.2Hи6C). Мы предположили, что этот результат может быть обусловлен тем, что сигнальный пептид (активатор тканевого плазминогена) не способствует секреции белка RBD у хомяков. Детальный механизм требует дальнейшего изучения в будущем. Мы также отметили, что иммунизация ptRBDTM (кодирующая фрагмент от RBD до трансмембранного домена S) индуцировала более низкие титры нейтрализующих антител, чем иммунизация ptRBD (рис.2HиS1C). Результаты могут отражать нестабильную структуру белка RBD-TM. Для дальнейшего изучения иммунных ответов Th1/Th2 спленоциты иммунизированных мышей стимулировали S-белком SARS-CoV-2. Мы обнаружили, что иммунизация pSARS2-S вызывала сильные Th1-смещенные иммунные реакции с более высокими уровнями секреции IFN- - после стимуляции (Рис 5), но иммунизация pSARS-S вызывала лишь низкие уровни секреции IFN- -. Эти данные показали, что перекрестная реактивность Т-клеточных ответов между белком-шипом SARS-CoV и SARS-CoV-2 не высока (Рис 5). Кроме того, анализ IFN-ELISPOT показал, что меньше Т-клеточных ответов было обнаружено против области S1 у мышей C57BL/6 и BALB/c, иммунизированных pSARS-S (S2 Рис.), что также подтверждается исследованием Смита [12]. Эти данные показали, что вакцина против атипичной пневмонии может не обеспечить полного защитного эффекта от инфекции SARS-CoV-2. Разработка ДНК-вакцин важна для быстрого реагирования на пандемию коронавирусной инфекции. Следовательно, успех ДНК-вакцины против SARS-CoV-2 можно применить и к другим возникающим инфекционным заболеваниям.
Различные конструкции, используемые в ДНК-вакцинах SARS-SoV-2, индуцировали разные уровни титров нейтрализующих антител. Лидерная последовательность tPA использовалась для увеличения экспрессии и секреции антигена в ДНК-вакцинах.21, 33–35]. Однако в этом отчете лидерная последовательность tPA не приводила к значительному увеличению титров антител. Для дальнейшего повышения эффективности вакцины можно использовать различные лидерные последовательности для замены нативной лидерной последовательности белка-шипа. Лидерная последовательность IgE использовалась в ДНК-вакцине INO-4800 и вакцине MERS-CoV [5, 12]. Кроме того, модифицированная последовательность белка-шипа также может повысить иммуногенность вакцины. Стабилизированный белок-шип был разработан путем мутации сайта фурина и других областей для создания префузионной структуры (S-2P), которая может увеличить экспрессию белка-шипа примерно в 10- раз [36]. Идеальная ДНК-вакцина должна оптимизировать конструкцию плазмидной ДНК и систему доставки для повышения уровня экспрессии белка.
цистанхе трубчатой – улучшает иммунную систему
Модели животных имеют решающее значение для разработки вакцины против COVID-19. Для оценки эффективности вакцин против COVID-19 использовалось несколько животных моделей, включая приматов [13, 37], трансгенные мыши ACE2 человека [38] и сирийские хомяки [39]. ACE2 сирийского хомячка имеет большое сходство с ACE2 человека, и его аффинность связывания с белком S SARS-CoV-2 была предсказана выше, чем у мышиного ACE2.40]. Именно по этой причине в качестве моделей заражения SARS-CoV-2 использовались трансгенные мыши ACE2 человека, а не мыши дикого типа. Исследования передачи SARS-CoV-2 показали, что вирус может эффективно заражать неопытных хомяков при прямом контакте или через аэрозоли.41]. Интраназальное заражение SARS-CoV-2 может реплицироваться и индуцировать патогенез в легких сирийских хомяков [30]. This study and previous reports also showed that SARS-CoV-2 infection caused approximately a 10% reduction in the initial body weight of hamsters. Clinical manifestations of patients with COVID-19, including changes in smell and taste, and severe respiratory distress, might be accompanied by weight loss (>снижение на 5% по сравнению с исходным уровнем), что было связано с большей продолжительностью заболевания [42]. Эти результаты показывают, что сирийский хомяк также является подходящей животной моделью для оценки вакцин против COVID-19. Учитывая наличие животных моделей, мы выбрали хомяков в качестве модели заражения SARS-CoV-2 для оценки эффективности вакцины. Наши данные показали, что иммунизация pSARS2-S, но не ptRBD, может индуцировать высокие титры антител против Spike IgG и титры нейтрализующих антител (Рис. 6Б и 6С.). Соответственно, хомяки, иммунизированные pSARS2-S, но не хомяки, иммунизированные ptRBD, вызывали иммунные ответы против заражения SARS-CoV-2. Мы отметили, что иммунизация ptRBD может вызывать высокие уровни титров нейтрализующих антител у мышей, но не у хомяков. Противоречивые результаты могут быть связаны с тем, что RBD сам по себе не экспрессируется стабильно у хомяков. Модель хомяка также использовалась для оценки векторной вакцины против COVID-19 на основе аденовируса серотипа 26 (Ad26). Однократная иммунизация векторной вакциной Ad26, экспрессирующей стабилизированный шиповый белок SARS-CoV-2, вызывающий реакцию нейтрализующих антител и защищающий от инфекции SARS-CoV-2, вызывала потерю веса, частичную смертность и репликацию вируса. в легких [39]. Эти результаты показали, что модель хомяка подходит для оценки эффективности вакцин против COVID-19.
Многие усилия по разработке вакцин против SARS-CoV-2 основаны на опыте исследований MERS-CoV и SARS-CoV. В декабре 2020 года во всем мире было одобрено несколько вакцин против COVID-19, в том числе вакцины против COVID-19 на основе векторов РНК и аденовирусов. Обсуждались преимущества и недостатки различных платформ вакцин [43]. Аденовирусные векторные вакцины могут вызывать более сильные иммунные реакции, чем ДНК- и мРНК-вакцины, но эффективность их вакцин может быть снижена из-за уже существующего иммунитета против Ad-векторов.44]. По сравнению с ДНК-вакциной, мРНК-вакцина требует сверхнизкой температуры для хранения и транспортировки.45]. Следовательно, ДНК-вакцина может стать потенциальной платформой для вакцин, особенно во время экстренного использования.
Наше исследование предполагает возможность создания ДНК-вакцины для использования человеком. Дальнейшие исследования могли бы изучить эффективность этой ДНК-вакцины, доставляемой с помощью внутрикожной (внутрикожной) инъекции, что более удобно для клинического применения, поскольку игла для внутримышечной инъекции у людей имеет глубину примерно 18 мм и поражает больше тканей, чем внутрикожная инъекция с помощью EP. Более того, эффективность вакцины следует тестировать на старых мышах в качестве модели для пожилых людей, поскольку эта популяция особенно сильно страдает при заражении SARS-CoV-2. Предыдущие исследования показали, что ответ клеток Th2 был связан с усилением респираторных заболеваний (VAERD) после вакцинации инактивированными вирусными вакцинами против RSV.46], вирус кори [47] и SARS-CoV [27, 48]. Напротив, сообщается о менее тяжелых случаях SARS-CoV, возникающих в результате индукции ответа клеток Th1.49]. Таким образом, сильные Th1-иммунные реакции, вызванные ДНК-вакциной, позволяют предположить, что побочные эффекты вряд ли будут серьезной проблемой.50]. Кроме того, обеспокоенность по поводу вакцин на основе белка возникла из-за использования солей алюминия или адъювантов типа эмульсии масло-в-воде, которые приводят к Th2-предвзятому иммунному ответу и усиливают потенциальные побочные эффекты.51, 52]. Таким образом, ДНК-вакцина COVID-19 может сыграть важную роль в борьбе с пандемией COVID-19 в ближайшем будущем.
Рекомендации
- Пак А., Адегбой О.А., Адекунле А.И., Рахман К.М., Макбрайд Э.С., Эйзен Д.П. Экономические последствия вспышки COVID-19: необходимость готовности к эпидемии. Фронт общественного здравоохранения. 2020;8:241. пмид:325743072. Центр системных наук и инженерии (CSSE) [Интернет]. Панель мониторинга COVID-19. Университет Джонса Хопкинса. [цитировано по 11 февраля 2021 г.]. Доступна с:
- 3. Бухгольц У.Дж., Букреев А., Ян Л., Ламиранде Э.В., Мерфи Б.Р., Суббарао К. и др. Вклад структурных белков коронавируса тяжелого острого респираторного синдрома в защитный иммунитет. Proc Natl Acad Sci US A. 2004;101(26):9804–9. пмид: 15210961
- 4. Ян З.Ю., Конг В.П., Хуан Ю., Робертс А., Мерфи Б.Р., Суббарао К. и др. ДНК-вакцина индуцирует нейтрализацию коронавируса SARS и защитный иммунитет у мышей. Природа. 2004;428(6982):561–4. пмид: 15024391
- 5. Мутумани К., Фальзарано Д., Ройшел Э.Л., Тинги С., Флингай С., Вильярреал Д.О. и др. Синтетическая консенсусная антиспайковая ДНК-вакцина с белком индуцирует защитный иммунитет против коронавируса ближневосточного респираторного синдрома у приматов. Научный перевод Мед. 2015;7(301):301ра132. пмид: 26290414
- 6. Краммер Ф. Вакцины против SARS-CoV-2 в разработке. Природа. 2020;586(7830):516–27. пмид:32967006
- 7. Халадж-Хедаяти А. Защитный иммунитет против субъединичных вакцин-кандидатов против атипичной пневмонии на основе шипового белка: уроки для разработки вакцины против коронавируса. J Иммунол Рез. 2020;2020:7201752. пмид:32695833
- 8.Лу Б, Тао Л, Ван Т, Чжэн Цз, Ли Б, Чэнь Цз и др. Гуморальные и клеточные иммунные ответы, индуцированные ДНК-вакцинами 3а против тяжелого острого респираторного синдрома (ТОРС) или SARS-подобного коронавируса у мышей. Клин Вакцина Иммунол. 2009;16(1):73–7. пмид: 18987164
- 9. Бауэр Дж. Ф., Ян Х, Содроски Дж., Росс Т.М. Выявление нейтрализующих антител с помощью ДНК-вакцин, экспрессирующих растворимые стабилизированные тримеры гликопротеина оболочки вируса иммунодефицита человека типа 1, конъюгированные с C3d. Дж Вирол. 2004;78(9):4710–9. пмид: 15078953
- 10. Захарчук А.Н., Вишванатан С., Мошинский И., Петрич М., Бабюк Л.А. Оптимизация ДНК-вакцины против атипичной пневмонии. ДНК Клеточная Биол. 2007;26(10):721–6. пмид: 17665998
- 11.Гэри Э.Н., Вайнер Д.Б. ДНК-вакцины: лучшее время сейчас. Курр Опин Иммунол. 2020;65:21–7. пмид:32259744
- 12. Смит Т.Р.Ф., Патель А., Рамос С., Элвуд Д., Чжу Х., Ян Дж. и др. Иммуногенность ДНК-кандидатной вакцины против COVID-19. Нац Коммун. 2020;11(1):2601. пмид: 32433465
- 13.Ю Дж, Тостаноски Л.Х., Питер Л., Меркадо Н.Б., МакМахан К., Махрохян Ш.Х. и др. Защита ДНК-вакцины от SARS-CoV-2 у макак-резус. Наука. 2020;369(6505):806–11. пмид:32434945
- 14.Йорритсма ШТ, Гованс Э.Дж., Грубор-Баук Б., Видесундара Д.К. Методы доставки для увеличения клеточного поглощения и иммуногенности ДНК-вакцин. Вакцина. 2016;34(46):5488–94. пмид: 27742218
- 15. Кудчодкар С.Б., Чхве Х., Ройшел Э.Л., Эскивель Р., Джин-А Квон Дж., Чжон М. и др. Быстрое реагирование на возникающее инфекционное заболевание. Уроки, извлеченные из разработки синтетической ДНК-вакцины, нацеленной на вирус Зика. Микробы заражают. 2018;20(11–12):676–84. пмид: 2955534516. Адам Л., Чичек Н., Тодорова Б., Розенбаум П., Жоли С., Пу С. и др. Врожденная молекулярная и клеточная подпись в коже, предшествующая длительным ответам Т-клеток после электропорации ДНК-вакцинации. Дж Иммунол. 2020;204(12):3375–88. пмид:32385135
- 17. Лин Ф., Шен Х., Маккой Дж.Р., Мендоса Дж.М., Ян Дж., Кеммеррер С.В. и др. Новый прототип устройства для доставки ДНК-вакцины, усиленной электропорацией, одновременно и в кожу, и в мышцы. Вакцина. 2011;29(39):6771–80. пмид: 21199706
- 18. Уильямс М., Юинг Д., Блевинс М., Сан П., Сундарам А.К., Равипракаш К.С. и др. Повышенная иммуногенность и защитная эффективность четырехвалентной ДНК-вакцины против денге с использованием электропорации и внутрикожной доставки. Вакцина. 2019;37(32):4444–53. пмид:31279565
- 19. Рамакришнан М.А. Определение 50% конечного титра по простой формуле. Мир Джей Вирол. 2016;5(2):85–6. пмид: 27175354
- 20. Корман В.М., Ландт О., Кайзер М., Моленкамп Р., Мейер А., Чу Д.К. и др. Обнаружение нового коронавируса 2019 года (2019-nCoV) с помощью RT-PCR в реальном времени. Евронаблюдение. 2020. пмид:31992387
- 21. Коу Ю, Сюй Ю, Чжао З, Лю Дж, Ву Ю, Ю К и др. Сигнальная последовательность тканевого активатора плазминогена (tPA) повышает иммуногенность вакцины против туберкулеза на основе MVA. Иммунол Летт. 2017;190:51–7. пмид: 28728855
- 22. Ся С, Чжу Ю, Лю М, Лан Ц, Сюй В, Ву Ю и др. Механизм слияния 2019-nCoV и ингибиторов слияния, нацеленных на домен HR1 в белке-шипе. Клетка Мол Иммунол. 2020;17(7):765–7. пмид:32047258