

Влияние препарата цистанхе из травянистых растений на влияние препарата цистанхе из травянистых растений на экспрессию цитокинов in vitro N Vitro крысиными остеобластами
Mar 04, 2022
Контактное лицо: Одри Ху Whatsapp/hp: 0086 13880143964 Электронная почта:audrey.hu@wecistanche.com
АННОТАЦИЯ
Остеобласты (OB) играют важную роль в ремоделировании кости. Остеобласты (OB) играют важную роль в ремоделировании кости за счет высвобождения цитокинов, таких как gh, высвобождение цитокинов, таких как остеопротегерин (OOPG), активатор рецептора ядерного фактора каппа. лиганд В (RA PG), активатор рецептора ядерного фактора каппа-В (лиганд NKL) и остеопонтин (OPN). Цель нашего исследования состояла в том, чтобы оценить эффекты экстрактов китайских трав.Цистанхе(Cistanche Deserticola) на экспрессию этих цитокинов in vitro в культуре клеток OB крысы. Первичные ОЛ выделяли из черепа крысы путем расщепления трипсином и коллагеназой. Клеточный фенотип определяли методом швейцарской окраски, окрашиванием щелочной фосфатазой, окрашиванием фон Косса и окрашиванием ализариновым красным. Экспрессию генов OPG, RANKL и OPN анализировали с помощью количественной ПЦР в реальном времени. Все обработки экстрактами травянистых растений цистанхе увеличивали экспрессию генов OPG и RANKL через 72 часа культивирования, особенно при концентрациях 5×10⁻² мг/мл, которые значительно отличались от контрольных культур. Лечение значительно снижало экспрессию отношения OPG/RANKL через 48 часов и экспрессию мРНК OPN через 72 часа культивирования. Воздействие in vitro на OB растительного препарата цистанхе способствовало экспрессии генов OPG и RANKL и снижало экспрессию генов OPG/RANKL и OPN и, таким образом, могло поддерживать баланс образования и резорбции кости во время костного метаболизма.
Ключевые слова:Цистанхе, остеобласты, остеопротегерин, RANKL, остеопонтин, крыса
анти-остеобласт:Цистанхе трава
Введение
Прочность костей определяется структурой и составом. Костная ткань адаптируется к различным нагрузкам путем моделирования в фазе роста и ремоделирования на протяжении всей жизни. Ремоделирование кости снижается с возрастом из-за уменьшения объема кости, формируемой в основной многоклеточной единице, дефицита половых гормонов и снижения образования периостальной кости (SEEMAN, 2008). Дисбаланс в ремоделировании кости может вызвать заболевания, связанные с костями, такие как остеопороз, и повышенный риск переломов.
Остеопороз, вызывающий переломы, боль и нарушения опорно-двигательного аппарата, поражает миллионы людей в Соединенных Штатах (NAYAK et al., 2012; SILVERMAN, 2010). Ключевым процессом в предотвращении заболеваний, связанных с костями, является поддержание способности кости к ремоделированию.
Ремоделирование кости представляет собой динамический баланс формирования и резорбции кости (SEEMAN and DELMAS, 2006). Эти процессы в основном контролируются остеобластами (OB) и остеокластами во взрослой кости, а также экспрессией цитокинов, факторов роста и гормонов (PARFITT, 2000). OB, происходящие из первичных мезенхимальных клеток, обнаруживаются на поверхности кости. OB отвечают за формирование кости и косвенно влияют на резорбцию кости (MACKIE, 2003). Цитокины, экспрессируемые OB, такие как остеопротегерин (OPG), активатор рецептора лиганда ядерного фактора каппа-B (RANKL) и остеопонтин (OPN), могут способствовать заживлению переломов и увеличивать образование костей при остеопорозе (LINKHART et al., 1996). . Развитие OB представляет собой последовательный процесс, включающий пролиферацию остеопредшественников, созревание матрикса и минерализацию клеток (GIUSTINA et al., 2008). Этот процесс регулируется множеством генов, ассоциированных с OB, и тесно связан с развитием костеобразования (HUNG et al., 2010). Прогрессирование остеогенной минерализации стимулирует образование кости во время заживления переломов костей. Таким образом, исследование экспрессии остеогенных цитокинов и их влияния на минерализацию костей имеет важное значение для поиска инновационного и эффективного терапевтического средства природного происхождения для профилактики заболеваний костей.
Традиционная китайская медицина использовалась на протяжении тысячелетий для лечения заболеваний костей. Травянистое растение цистанхе, широко используемое для укрепления почек и лечения заболеваний костей, принадлежит к роду семейства Orobanchaceae. Сообщалось, что составляющими видов Cistanche являются: фенилэтаноидные гликозиды (PhG), иридоиды, лигнаны, альдиты и олигосахариды (JIANG and TU, 2009; LI et al., 2010). Цистанхе - многолетние травы-паразиты, которые в основном растут в пустынях или на бесплодных солонцах, в основном распространены в засушливых и теплых пустынях на северо-западе Китая. В традиционной китайской медицине цистанхе считается исключительным тонизирующим средством и называется «женьшенем пустыни». Исследование, проведенное на крысах после овариэктомии (LIANG et al., 2011), показало, чтоЭкстракты цистанхеПри пероральном введении значительно увеличивалась минеральная плотность костей и содержание минералов в костях дозозависимым образом. Однако подробные механизмы действия цистанхе на костеобразование до сих пор неясны. Таким образом, целью данного исследования было оценить влияние цистанхе на экспрессию in vitro генов цитокинов OPG, RANKL и OPN в культурах клеток OB крыс, а также оценить механизмы, с помощью которых цистанхе способствует заживлению костей или предотвращает/контролирует заболевания, связанные с костями.
Цистанхе для профилактики заболеваний костей
материалы и методы
Получение крысиных остеобластов. OB крыс готовили из костей свода черепа новорожденных крыс (<24 hours)="" and="" processed="" by="" the="" trypsin="" (sigma,="" usa)="" and="" collagenase="" ii(sigma,="" usa)digestion="" methods.="" the="" cells="" were="" cultured="" in="" dulbecco's="" modified="" eagle="" medium="" (dmem,="" gibco,="" usa)="" supplemented="" with="" 15="" %="" inactivated="" fetal="" calf="" serum,="" penicillin="" (100="" iu/ml),="" streptomycin="" (100="" iu/ml)="" and="" l-glutamine="" in="" 6="" well="" culture="" plates,="" and="" incubated="" at="" 37="" °="" c="" with="" 5="" %="" co2="" in="" the="" air.="" the="" cellular="" phenotype="" was="" determined="" by="" the="" swiss="" dyeing="" method,="" alkaline="" phosphatase="" staining,="" and="" von="" kossa="" and="" alizarin="" red="" dye="">
Приготовление водных экстрактов цистанхе в серийных разведениях. Цистанхе, использованный в этом исследовании, был получен из аптеки Tongrentang в Китае. Сухие кусочки Цистанхе растирали в порошок. Жидкие экстракты цистанхе готовили путем отваривания 5 0 г травяного порошка в течение 1 часа. Далее препарат концентрировали до 100 мл на роторном испарителе и фильтровали через фильтры 0,22 мм. Фильтрат хранили при 4 градусах в темноте. Жидкий экстракт цистанхе разбавляли до серийных концентраций в диапазоне от 5×10 -1 до 5×10⁻⁴ мг/мл жидкостью DMEM.
Выделение РНК и ПЦР с обратной транскрипцией. Третье поколение культивируемых ОЛ обрабатывали различными концентрациями экстрактов цистанхе в течение 24, 48 и 72 часов. Обработку клеточной культуры OB проводили трижды. Клетки дважды промывали фосфатно-солевым буфером (PBS) и выделяли РНК из клеток с помощью реагента TransZol (Beijing TransGen Biotech Co., Ltd.; Пекин, Китай) в соответствии с инструкциями производителя, экстрагировали хлороформом, осаждали изопропиловым спиртом. спирта, промывали 75-процентным этиловым спиртом и затем растворяли в воде. Обратную транскрипцию РНК (5 мкл) проводили с использованием супермикса для синтеза кДНК TransScript First-Strand (Trans, Пекин, Китай).
Подтверждение продуктов ПЦР в реальном времени. После электрофореза в 1,5% агарозном геле проводили секвенирование ДНК, чтобы доказать, что продукты ПЦР являются кодирующими генными сегментами OPG, RANKL и OPN в крысином OB.
Создание плазмиды, содержащей целевой ген. Последовательность ДНК в 2-процентном агарозном геле очищали и выделяли с помощью гель-экстракции EZNA (Kangweishiji, Китай) и переносили в набор для клонирования pEASY-T3 (Beijing TransGen Biotech Co., Ltd.; Пекин, Китай). Трансформацию клеток осуществляли с помощью сконструированной плазмиды, содержащей целевой ген. Положительные колонии подвергали скринингу с помощью скринингового теста сине-белых пятен, а затем секвенировали. Плазмиды, извлеченные из положительных колоний, содержащих целевой ген, пропорционально разбавляли деионизированной водой для получения стандартной кривой. Количественная ПЦР в реальном времени (RTQ PCR). Конкретные праймеры были сконструированы в соответствии с опубликованными последовательностями генов (NCBI, база данных нуклеотидов) и синтезированы с помощью Liuhe-Nuada Gene (Пекин, Китай), как показано в таблице 1.

Экспрессию мРНК в образцах определяли количественно, используя стандартные кривые для конкретных плазмид, описанные выше. Продукты сравнивали с геном домашнего хозяйства актином. Количество гена-мишени определяли с помощью RTQ-ПЦР с использованием смеси SYBR Green RealMaster Mix (TIANGEN, Китай) в соответствии с протоколом производителя. Условия ПЦР были следующими: 94 градуса в течение 1 минуты, 58 градусов в течение 30 секунд, 68 градусов в течение 1 минуты и повторялись в течение 40 циклов. Данные рассчитывали с использованием системы ПЦР в реальном времени 7500 (Applied Biosystems; Уолтем, Массачусетс, США).
Статистический анализ. Данные обрабатывали однофакторным дисперсионным анализом с использованием коммерческого статистического программного обеспечения (SPSS 17.0, IBM Corporation; Армонк, штат Нью-Йорк, США). Результаты выражали как среднее ± стандартное отклонение генов-мишеней и отношения -актина. Различия считались значимыми при P<0.05>

Польза травы цистанхе: профилактика заболеваний костей
Полученные результаты
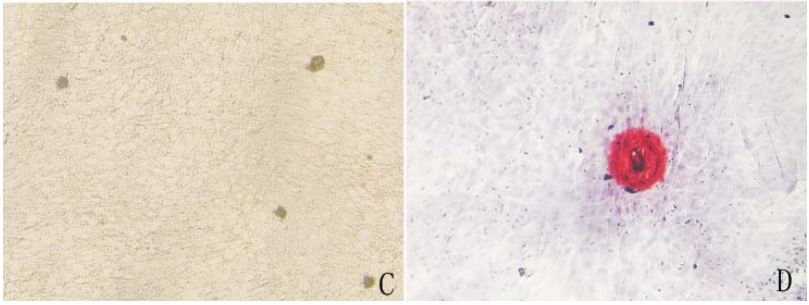
Идентификация OB крыс. OB были идентифицированы специальными методами окрашивания клеток и фенотипически продемонстрированы, как показано на рисунке 1. (A, B, C и D)


Подтверждение целевых генов. Размеры полос генов-мишеней анализировали в 2% агарозном геле, и было обнаружено, что они соответствуют ожидаемому размеру (рис. 2).
Результаты, полученные для сегментов генов OPG, RANKL, OPN и -actin, которые содержали плазмидные последовательности гена-мишени, сравнивали с соответствующими последовательностями генов, ранее опубликованными в GENBANK, с помощью анализа BLAST-N, и было обнаружено, что они составляют: 100%, 100% , 100 процентов и 99 процентов идентичны соответственно.
Влияние жидких экстрактов цистанхе на экспрессию OPG, RANKL и OPN. Уровни мРНК OPG снижались, когда OB подвергались воздействию всех применяемых концентраций Cistanche в течение 24 часов и 48 часов (таблица 2).
Значительные различия наблюдались при концентрациях 5×10⁻¹, 5×10⁻² и 5×10⁻⁴ мг/мл через 24 часа, а также при концентрациях 5×10⁻¹ и 5 ×10⁻² мг/мл через 48 часов культивирования (P<0.05). however,="" when="" compared="" with="" control="" cultures,="" the="" expression="" of="" opg="" was="" significantly="" increased="" after="" treatment="" with="" cistanche="" for="" 72="" hours,="" cistanche="" concentrations="" of="" 5×10-2="" mg/ml="" and="" 5×10-3="" mg/ml="" had="" particularly="" increased="" opg="" expression=""><0.01). in="" contrast,="" the="" rankl="" mrna="" expression="" was="" down-regulated="" after="" 24="" hours="" with="" the="" concentration="" of="" 5×10-1="" mg/ml="" and="" 5×10-2="" mg/ml="" cistanche="" extracts="" compared="" to="" the="" controls.="" however,="" rankl="" mrna="" was="" up-regulated="" after="" culturing="" with="" cistanche="" extracts="" for="" 48="" hours="" and="" 72="" hours,="" especially="" the="" cistanche="" extract="" concentrations="" of="" 5×10-2="" mg/ml,="" 5×10-3="" mg/mland="" 5×10-4="" mg/ml="" (table="" 3).="" the="" rankl="" content="" continued="" to="" increase="" signifi="" cantly="" after="" 72="" hours="" of="">

Обсуждение
Остеобласты (OBs) играют важную роль не только в создании костной архитектуры, но и в гомеостазе кальция, регулируя активность остеокластов (MACKIE, 2003). Существуют определенные заболевания костей, связанные с функцией или дисфункцией ОЖ, такие как остеопороз. Фенотипическими маркерами возникновения ОБ являются в первую очередь их пролиферация и дифференцировка, а во вторую очередь - минерализация костных узелков (PAN et al., 2005). OPG и RANKL являются членами семейства цитокинов фактора некроза опухоли (TNF) и представляют собой OB-производные белки, имеющие решающее значение для регуляции и поддержания костной массы (HUMPHREY et al., 2006; REINHOLZ et al., 2002). RANKL регулирует дифференцировку, активацию и выживание остеокластов. RANKL может также усиливать резорбцию кости за счет взаимодействия со своим рецептором на остеокластической мембране (SODEK et al., 2000). OPG является рецептором-приманкой для RANKL и предотвращает связывание RANKL с его рецептором (RANK). Взаимосвязь RANK/RANKL/OPG контролирует баланс между образованием и резорбцией кости, регулируя активность OB и остеокластов (SODEK et al., 2000; HUMPREY et al., 2006; MAZZIOTI et al., 2012). Соответственно, можно сделать вывод, что пониженное соотношение OPG/RANKL может индуцировать резорбцию кости за счет усиления активации остеокластов.
В этом исследовании все обработки травяными препаратами цистанхена повышали экспрессию генов OPG и RANKL через 72 часа, особенно в концентрациях 5×10⁻² мг/мл и 5×10⁻³ мг/мл, которые были значительно отличаются от контрольных культур.
Напротив, экспрессия OPG значительно снижалась после 24 и 48 часов культивирования с экстрактами цистанхе. Экспрессия отношения OPG/RANKL значительно снижалась, когда OB лечили Cistanche в течение 24 часов и 48 часов. Кроме того, экстракт цистанхе не оказывал значительного влияния на культуры OB после 72 часов обработки. Мы предполагаем, что жидкие экстракты цистанхе могут улучшать активацию остеокластов через 24 часа и 48 часов за счет регулируемой экспрессии OPG/RANKL, но могут не оказывать никакого влияния на активацию остеокластов через 72 часа. OPN имеет несколько функциональных различий в формировании и ремоделировании кости, связанных с фундаментальной ролью OPN в защите хозяина и восстановлении тканей. Основная роль OPN, по-видимому, заключается в регуляции отрицательной обратной связи на системном уровне, стимулировании адгезии клеток OB, индукции событий ранней кальцификации, а также в контроле размера и формы минеральных кристаллов (SODEK et al., 2000). Более того, было подтверждено, что OPN может представлять собой мостиковый белок, увеличивать жесткость артерий во время воспаления и, следовательно, вызывать повреждение суставов и повышать сердечно-сосудистый риск у пациентов с ревматоидным артритом (BAZZICHI et al., 2009).
В нашем исследовании мы показали, что жидкий экстракт цистанхе снижает экспрессию OPN. Тенденция к снижению концентрации OPN в культурах OB по сравнению с контрольными культурами, наблюдаемая через 24 часа и 48 часов культивирования, и значительно более низкие уровни, зарегистрированные через 72 часа, позволяют предположить, что Cistanche может улучшать формирование костей, как показано в эксперименте in vitro.
Воздействие цистанхе in vitro на OB-культуры значительно повышало экспрессию генов OPG и RANKL через 72 часа, снижало экспрессию генов OPG/RANKL через 24 часа и 48 часов и снижало экспрессию OPN через 72 часа культивирования.
Цистанхе трававсегда используется в качестве рецепта, состоящего из нескольких китайских трав, поэтому клиническая эффективность цистанхе, используемого в этом исследовании, и компонентов жидкого экстракта сложны и еще не ясны. Результаты нашего исследования показывают, что экстракт цистанхе влияет на экспрессию OPG и RANKL при применении к крысиным ОБ в культуре клеток, но уровень экспрессии варьирует в зависимости от концентрации экстрактов цистанхе и продолжительности культивирования. Соответствующая концентрация жидких экстрактов цистанхе пустынного в сочетании с соответствующей продолжительностью воздействия крысиных OB может поддерживать баланс образования и резорбции кости во время костного метаболизма.
Необходимы дальнейшие исследования, чтобы улучшить наши знания о биоактивных ингредиентах цистанхе и их концентрациях в препаратах, чтобы они могли быть проверены в качестве модуляторов цитокинов для восстановления и восстановления костей.
добавка цистанхе: предотвращает потерю костной массы
использованная литература
БАЗЗИЧИ Л., Л. ГЬЯДОНИ, А. РОССИ, М. БЕРНАРДИНИ, М. ЛАНЦА, Ф. ДЕ ФЕО, К. ДЖАКОМЕЛЛИ, И. МЕНКАРОНИ, К. РАЙМО, М. РОССИ, А. М. МАЗЗОНЕ, С. ТАДДЕИ, С. BOMBARDIERI (2009): Остеопонтин связан с повышенной жесткостью артерий при ревматоидном артрите. Мол. Мед. 15, 402-406.
GIUSTINA, A., G. MAZZIOTTI, E. CANALIS (2008): Гормон роста, инсулиноподобные факторы роста и скелет. Эндокр. Откр. 29, 535-559.
HUMPHREY, EL, JH WILLIAMS, MW DAVIE, MJ MARSHALL (2006): Влияние диссоциированных глюкокортикоидов на OPG и RANKL в остеобластных клетках. Кость 38, 652-661.
HUNG, TY, TL CHEN, MH Liao, WP HO, DZ LIU, WC CHUANG, RM CHEN (2010): Drynaria удачи J. Sm. способствует созреванию остеобластов, индуцируя экспрессию генов, связанных с дифференцировкой, и защищая от апоптотических нарушений, вызванных окислительным стрессом. Ж. Этнофармакол. 131, 70-77.
JIANG, Y., PF TU (2009): Анализ химических компонентов видов Cistanche. Ж. Хроматогр. А. 1216, 1970-1979.
LI, Y., Y. SONG, H. ZHANG (2010): Успехи в исследованиях химических компонентов и лекарственной активности цистанхе. Китайские ресурсы диких растений 29, 7-11.
LIANG, H., F. YU, Z. TONG, Z. HUANG (2011): Влияние водного экстракта Cistanches Herba на потерю костной массы у крыс после овариэктомии. Междунар. Дж. Мол. науч. 12, 5060-5069.
LINKHART, TA, S. MOHAN, DJ BAYLINK (1996): Факторы роста для роста и восстановления костей: IGF, TGF бета и BMP. Кость 19, S1-S12.
МАККИ, Э.Дж. (2003): Остеобласты: новые роли в оркестровке скелетной архитектуры. Междунар. Дж. Биохим. Клеточная биол. 35, 1301-1305.
MAZZIOTTI, G., J. BILEZIKIAN, E. CANALIS, D. COCCHI, A. GIUSTINA (2012): Новое понимание и методы лечения остеопороза. Эндокринный 41, 58-69.
NAYAK, S., MS ROBERTS, SL GREENSPAN (2012): Влияние общей стоимости алендроната на экономическую эффективность скрининга и лечения остеопороза. PLoS ONE 7(3): e32879. doi:10.1371/journal.pone.0032879.
ПАН, В., LD QUARLES, LH SONG, YH YU, C. JIAO, HB TANG, CH JIANG, H.
W. Deng, YJ LI, HH ZHOU, ZS XIAO (2005): Генистеин стимулирует дифференцировку остеобластов через NO/цГМФ в культуре костного мозга. J. Cell Biochem. 94, 307-316.
PARFITT, AM (2000): Механизм сцепления: роль сосудистой системы. Кость 26, 319-323. REINHOLZ, MM, SJ ITURRIA, JN INGLE, PC ROCHE (2002): Дифференциальный ген
экспрессия членов семейства TGF и остеопонтина в анализе ткани опухоли молочной железы с помощью количественной ПЦР в реальном времени. Рак молочной железы Res. Удовольствие. 74, 255-269.
Симэн Э. (2008 г.): Качество костей: материальная и структурная основа прочности костей. Дж. Боун Шахтер. Метаб. 26, 1-8.
SEEMAN, E., PD DELMAS (2006): Качество костей — материальная и структурная основа прочности и хрупкости костей. Н. англ. Дж. Мед. 354, 2250-2261.SILVERMAN, SL (2010): Терапия остеопороза: данные из баз данных здравоохранения и обсервационных исследований населения. кальциф. Ткань внутр. 87, 375-384.
SODEK, J., B. GANSS, MD MCKEE (2000): Остеопонтин. крит. Преподобный Орал Биол. Мед. 11, 279- 303.


