Изучение роли нового гомолога интерлейкина-17 из беспозвоночных морских мидий Mytilus Coruscus во врожденном иммунном ответе: является ли отрицательное регулирование Mc-Novel_miR_145 ключом?
Dec 11, 2023
Абстрактный: Интерлейкин-17 (IL-17) представляет собой класс провоспалительных цитокинов, участвующих в хронических воспалительных и дегенеративных заболеваниях. До этого исследования было предсказано, что гомолог IL-17 может быть нацелен на Mc-novel_миР_145 для участия в иммунном ответе Mytilus coruscus. В этом исследовании использовались различные методы молекулярной и клеточной биологии для изучения связи между Mc-novel_miR_145 и гомологом IL-17 и их иммуномодулирующими эффектами. Прогноз биоинформатики подтвердил принадлежность гомолога IL-17 к семейству IL-17 мидий, после чего были проведены количественные ПЦР в реальном времени (qPCR), чтобы продемонстрировать, что McIL-17-3 высоко экспрессируется в иммуноассоциированных тканей и ответили на бактериальные вызовы. Результаты репортерного анализа люциферазы подтвердили способность McIL-17-3 активировать нижестоящий NF-κb и его нацеливание с помощью Mc-novel_miR_145 в клетках HEK293. В ходе исследования также была получена антисыворотка McIL-17-3 и обнаружено, что Mc-novel_miR_145 отрицательно регулирует McIL-17-3 с помощью вестерн-блоттинга и анализов qPCR. Кроме того, анализ проточной цитометрии показал, что Mc-novel_miR_145 отрицательно регулирует McIL-17-3, облегчая LPS-индуцированный апоптоз. В совокупности текущие результаты показали, что McIL-17-3 играет важную роль в иммунной защите моллюсков от бактериального нападения. Более того, McIL- 17-3 отрицательно регулировался Mc-novel_miR_145 для участия в апоптозе, индуцированном ЛПС. Наши результаты дают новое представление о регуляции некодирующих РНК на моделях беспозвоночных.

Польза цистанхе для мужчин – укрепление иммунной системы
Ключевые слова: Mytilus кускус; интерлейкин-17; микроРНК; апоптоз; врожденный иммунитет
1. Введение
Иммунная система играет решающую роль в защите организма от вторжения экзогенных патогенов. Условно систему защиты разделяют на врожденный иммунитет и приобретенный иммунитет. Врожденный иммунитет представляет собой первую линию защиты организма от патогенов, которая может обнаружить инвазию патогенов и частично устранить их [1]. Врожденный иммунитет опосредован множеством клеток, включая естественные клетки-киллеры, моноциты, нейтрофилы, эозинофилы, базофилы и циркулирующие дендритные клетки, которые вместе известны как клетки врожденного иммунитета. Эти клетки выделяют большое количество цитокинов, которые участвуют в клеточной коммуникации и тем самым помогают координировать иммунные реакции [2]. В случае инфекции и воспаления цитокины действуют как модуляторы: одни цитокины ухудшают течение заболевания (провоспалительные), тогда как другие способствуют здоровью (противовоспалительные) [3]. Цитокины подвергаются высокому эволюционному давлению и, таким образом, демонстрируют диверсификацию последовательностей [4], тогда как семейство цитокинов IL-17 демонстрирует высокую консервативность, что проявляется в виде складки цистеинового узла в функциональной архитектуре, образующейся в результате взаимодействия между четырьмя консервативные остатки цистеина [5]. Недавние исследования показали, что IL-17 представляет собой класс провоспалительных цитокинов, участвующих в хронических воспалительных и дегенеративных заболеваниях [6]. IL-17 действуют путем специфического связывания с рецепторами, способствуя развитию воспаления, иммунному отторжению и кроветворению. Семейство цитокинов IL-17 у человека состоит из шести членов (от IL-17A до IL-17F), которые продуцируются активированными Т-лимфоцитами и другими популяциями врожденных клеток в ответ на IL. -1 и IL-23 [7,8]. Однако все больше данных свидетельствует о том, что семейство IL-17 претерпело заметное распространение среди морских моллюсков и видов иглокожих. В геноме пурпурного морского ежа Strongylocentrotus purpuratus обнаружено около 30 генов IL-17 [9]. Аналогичным образом, 31 IL-17-подобный ген осьминога был обнаружен у колеоидных головоногих моллюсков, причем 27 генов имеют сильную экспрессию в присосках и коже [10]. Сако и др. [11] получили 379 уникальных последовательностей IL-17 из 15 повторно секвенированных геномов мидий и эталонного генома M. Galloprovincialis [12] и разделили их на 23 изоформы посредством филогенетического анализа. Кроме того, они обнаружили, что изоформы IL-17 видов Mytilidae консервативны среди особей и являются общими для близкородственных видов. Помимо видов Mytilidae, крупные семейства IL-17 обнаружены и у других видов моллюсков, включая Crassostrea gigas, Mizuhopecten Yessoensis и Pinctada fucata martensii [13]. Морская вода кишит болезнетворными микроорганизмами, а морские моллюски находятся с ними в постоянном контакте, поэтому необходим мощный арсенал иммунных молекул, в связи с чем расширение семейства IL-17 наделяет этих животных более эффективными иммунными реакциями.
Было проведено несколько исследований, указывающих на важную роль, которую IL-17 играют во врожденном иммунитете моллюсков. Например, исследования показали, что при заражении Vibrio harveyi уровень мРНК IL-17D значительно повышался у Tegillarca granulosa [14], тогда как у C. gigas уровень CgIL17-5 демонстрировал отчетливая реакция на Vibrio splendidus [15]. Кроме того, было показано, что IL -17 моллюсков реагируют на многие патоген-ассоциированные молекулярные структуры (PAMP), такие как липополисахарид (LPS), полиинозиновая: полицитидиловая кислота (polyI: C) и пептидогликан (PGN). ЛПС является основным компонентом внешней стенки клеточной стенки грамотрицательных бактерий и представляет собой один из наиболее часто используемых стимуляторов иммунитета. С другой стороны, полиI:C представляет собой аналог двухцепочечной РНК, который часто используется в качестве симулятора вируса в научных исследованиях. После стимуляции ЛПС транскрипционная экспрессия генов семейства IL-17 быстро запускалась у тихоокеанской устрицы C. gigas и жемчужной устрицы P. fucata [16,17]. Также у жемчужных устриц было обнаружено участие PfIL-17 в иммунном ответе на стимуляцию полиI:C [17].

цистанхе трубчатой – улучшает иммунную систему
Кроме того, двойной анализ люциферазы показал, что PfIL-17 способен активировать гены-мишени позвоночных, содержащие сайты связывания NF-kB, и участвовать в сигнальном пути NF-kB в клетках HEK293 [17]. PGN присутствует в клеточной стенке грамположительных бактерий и часто используется в качестве имитации грамположительных бактерий. Было доказано, что рекомбинантный IL17-5 C. gigas обладает сильным сродством к PGN, о котором никогда не сообщалось у интерлейкинов позвоночных [18]. Эти исследования послужили прелюдией к выявлению иммуномодулирующей функции IL-17 у моллюсков. Как класс провоспалительных цитокинов, чрезмерная экспрессия IL-17 может вызвать серьезное повреждение клеток. Организмы разработали различные механизмы контроля чрезмерной реакции IL-17, из которых микроРНК (миРНК) представляют собой наиболее мощный и хорошо изученный класс некодирующих РНК. МикроРНК представляют собой семейство коротких РНК длиной около 22 нт, которые могут регулировать экспрессию генов-мишеней путем репрессии трансляции или деградации мРНК [19]. Текущие исследования регуляции IL-17 с помощью микроРНК в основном сосредоточены на их синергическом эффекте при аутоиммунных заболеваниях человека, таких как рассеянный склероз, ревматоидный артрит, псориаз и другие [20]. Разработка методов высокопроизводительного секвенирования и биологических расчетов позволяет сканировать микроРНК моллюсков на геномном уровне, и большое количество консервативных и новых микроРНК было идентифицировано у таких видов моллюсков, как плоская устрица Ostrea edulis, тихоокеанская устрица C. gigas. , Lymnaea stagnalis, мидия M. Galloprovincialis и др. [21–29]. Эти исследования предоставляют базовые данные и большую поддержку для функциональной интерпретации микроРНК у моллюсков. Что касается иммунорегуляторной роли некоторых микроРНК у моллюсков, Tian и соавт. [30] обнаружили, что Pm-miR-29a может положительно регулировать IL-17 в Pinctada martensii; после сверхэкспрессии Pm-miR-29a экспрессия IL-17 в мантии и жабрах этого вида повышалась. У C. gigas cgi-miR-2d усиливал фагоцитоз гемоцитов устриц, отрицательно регулируя CgIκB2 [31] и отрицательно регулируя экспрессию гена, подобного транспортеру холина, на ранней стадии инфекции, который участвовал в сложной иммуномодуляции. [32].

растение цистанхе, повышающее иммунную систему
Нажмите здесь, чтобы просмотреть продукты Cistanche Enhance Immunity
【Запросить дополнительную информацию】 Электронная почта:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
Было обнаружено, что во время высыхания cgi-miR-365 индуцируется норадреналином и напрямую способствует экспрессии CgHSP90AA1 [33]. Недавние исследования показали, что каркас микроРНК659_26519 нацелен на кальмодулин, регулируя экспрессию IL-17 на ранней фазе иммунного ответа C. gigas [34]. Кроме того, специфические функции некоторых микроРНК описаны и у других беспозвоночных, таких как трепанг Apostichopus japonicus [35–39] и креветка Litopenaeus vannamei [40]. Эти исследования открыли завесу над механизмами, лежащими в основе микроРНК у беспозвоночных, а также предоставили технические и методологические ссылки для наших текущих исследований. В нашем предыдущем исследовании 26 микроРНК и 667 генов M. coruscus были биологически рассчитаны на предмет дифференциальной экспрессии после заражения Vibrio alginolyticus, из которых Mcnovel_миР_145 может нацеливаться на гомолог IL-17. и участвовать в иммунном ответе на бактериальную инфекцию [41]. Целью настоящего исследования является идентификация гена IL-17 и изучение его потенциальной роли во врожденном иммунитете и его регуляции с помощью миРНК Mcnovel_miR_145 у M. coruscus. Благодаря этому исследованию мы стремимся лучше понять механизмы иммунного ответа моллюсков и пролить свет на молекулярные основы их иммунной защиты от патогенов. Это исследование также может дать представление о регуляции некодирующей РНК на моделях беспозвоночных.
2. Результаты
2.1. Характеристика McIL-17-3
Последовательность кДНК McIL-17-3, содержащая полную ORF, 30 -UTR и частичную 50 - UTR, была клонирована in silico из полноразмерного транскриптома M. coruscus (инвентарный номер: PRJNA798880, F{ {5}}расшифровка_12404). McIL-17-3 содержит область ORF длиной 585 п.о., кодирующую 194 аминокислоты. Прогнозируемая молекулярная масса составляет 21,77 кДа, а изоэлектрическая точка — 5,21. Анализ SMART выявил типичный домен IL-17 в этом белке (рис. 1А). Филогенетическое дерево было построено путем набора членов IL-17 позвоночных и видов Mytilidae, а IL2 использовались в качестве внешней группы. Как показано на рисунке 1B, эти IL-17 собраны в определенную ветвь, чтобы отличить их от IL-2. Внутри кластера IL-17 были показаны две очевидные клады: одна состоит из IL-17 позвоночных, а другая состоит из IL-17 мидий. В группе IL-17 мидий McIL-17-3 сначала кластеризовался с соответствующей молекулой из другого вида Mytilus, M. Galloprovincialis (рис. 1B).
2.2. Множественное выравнивание и прогнозирование третичной структуры
Ядро McIL-17-3 состоит из двух пар антипараллельных -цепей; одна пара включает цепи 1 (остатки 52–58) и 2 (остатки 66–72 и 77–79), а другая – цепи 3 (остатки 89–103) и 4 (остатки 110–125) (рис. 2Б, В). . Два дисульфидных мостика (Cys97/Cys134 и Cys125/Cys169) соединяют цепи 1 и 3, 2 и 4 соответственно (рис. 2А, В). Соответственно, другие IL-17 моллюсков также обладают этими двумя дисульфидными мостиками между нитями 1 и 3, 2 и 4 (рис. 2A, C). Примечательно, что хотя IL-17 позвоночных также имеют два дисульфидных мостика, их существует от 2 до 4 (рис. 2A, C).
2.3. Транскрипционная экспрессия McIL-17-3
Профиль тканевого распределения транскриптов McIL{{0}} оценивали с помощью кПЦР. Транскрипты McIL-17-3 экспрессировались во всех тестируемых тканях, а уровни экспрессии в гемоцитах и жабрах были значительно выше, чем в приводящей мышце (рис. 3А). Также оценивали временную экспрессию транскриптов McIL-17-3 гемоцитов в ответ на введение V. alginolyticus. Уровень мРНК McIL-17-3 значительно повышался при 3 и 12 HPC (увеличение в 3,13- или 4,35- раза по сравнению с 0 HPC, соответственно), но не было обнаружено никаких изменений. очевидная временная закономерность в целом (рис. 3Б).

Рисунок 1. Молекулярная характеристика McIL-17-3. (A) Анализ архитектуры консервативных доменов в McIL-17-3 с использованием SMART. Был показан консервативный домен IL-17. (B) Филогенетический анализ McIL-17-3. Филогенетическое дерево было построено с использованием программного обеспечения MEGAX с 2000 повторениями начальной загрузки с использованием метода объединения соседей. McIL-17-3 был помечен зеленым треугольником. Все виды, включенные в филогенетическое дерево, были извлечены из базы данных банка генов, и в дереве также были указаны номера доступа. Зеленый треугольник от имени McIL-17-3. (Для интерпретации ссылок на цвет в легенде к рисунку читатель отсылается к веб-версии этой статьи.)
2.4. Активация нисходящего потока McIL-17-3
Как показано на рисунке 4, рекомбинантный McIL-17-3 увеличивал люциферазную активность pGLNF-κB-luc дозозависимым образом. При 0.5 и 1.0 мкг/лунку люциферазная активность pGLNF-κB-luc увеличивалась в 2.07- и 11.07- раз соответственно.
2.5. Подтверждение того, что McIL-17-3 является целевым геном Mc-новой_миР_145
Согласно прогнозам биоинформатики, ген McIL{{0}} содержит стандартную целевую последовательность для Mc-новеллы_миР_145 в ее 30 UTR (рис. 5А). Мимик и ингибитор Mc-novel_miR_145 были котрансфицированы репортерной плазмидой McIL-17-3-30 UTR дикого типа в клетки HEK293 для подтверждения их корреляции. Как показано на рисунке 5B, имитатор Mc-novel_miR_145 может ингибировать люциферазную активность McIL-17-3-30 UTR-WT (0.{{2{{58}) }}}кратное снижение по сравнению с контролем), в то время как ингибитор Mc-novel_miR_145 значительно смягчает эффекты (увеличение в 1,64-раза по сравнению с Mc-novel_ miR_145 имитирует как просто добавленную группу). Чтобы оценить, воздействует ли Mc-novel{{30}}миР_145 непосредственно на ген McIL-17-3 через целевой сайт в 30 UTR, мы сконструировали мутантную версию репортерной плазмиды люциферазы. который мутировал нацеливающие последовательности Mc-novel_miR_145 в UTR McIL-17-3 30. Как показано на рисунке 5C, имитатор Mc-novel_miR_145 значительно снижал люциферазную активность клеток, трансфицированных McIL-17-3-30 UTR-WT (0,27- раз). снижение), тогда как в клетках, трансфицированных McIL-17-3-30 UTR-MUT, не наблюдалось никаких изменений в активности люциферазы. Кроме того, дозозависимые эффекты Mc-novel_miR_145, имитирующие ингибирование активности люциферазы McIL-17-3-30 UTR-WT, также можно наблюдать через 24 часа после трансфекции (0 .71-, 0.43- и 0.20-кратное снижение по сравнению с контролем соответственно, рисунок 5D).

Рисунок 2. Множественное выравнивание McIL-17-3 с другими членами семейства IL-17. (A) Аминокислотная последовательность McIL-17-3 была согласована с последовательностью других IL-17, полученных от мидий и позвоночных, включая мышей и рыбок данио. Эти цистеины, образующие канонический узел, отмечены зеленым цветом, а замененные аминокислотные остатки отмечены красным. Цистеиновый узел обозначен цветными линиями: синий означает их наличие у моллюсков, а красный означает их присутствие у позвоночных. Примечание. Для визуализации сохраняется только вторая половина выравнивания последовательности. (B) Третичная структура белка McIL-17-3 была предсказана с использованием швейцарской модели и программного обеспечения pyMol. Эти цистеины, образующие канонический узел, были отмечены. (C) Карикатурное изображение канонической складки цистеинового узла. Остатки цистеина обозначены закрашенными кружками; те, которые присутствовали в белках IL-17, были желтыми, тогда как два пропущенных были серыми. (Для интерпретации ссылок на цвет в легенде к рисунку читатель отсылается к веб-версии этой статьи.)

Рисунок 3. Анализ профиля экспрессии транскриптов McIL-17-3. (A) Распределение транскриптов McIL-17-3 в тканях обыкновенных мидий. (B) Изменения временной экспрессии транскриптов McIL-17-3 в ответ на введение V. alginolyticus. Результаты выражали как среднее ± SD (n=3, * p < 0. 0 5, ** p < 0,01). (Для интерпретации ссылок на цвет в легенде к рисунку читатель отсылается к веб-версии этой статьи.)
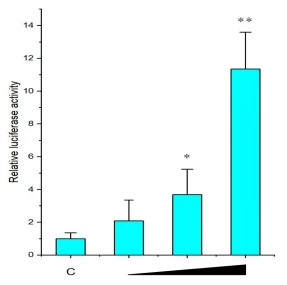
Рисунок 4. Активация репортера NF-κB с помощью McIL-17-3. Рекомбинантный вектор pEGFP-McIL- 17-3 в трех концентрациях (0.1, 0.5 и 1.{{10}} мкг/лунка) котрансфицировали. в клетки HEK293 с использованием Lipo6000TM в течение 24 часов. Относительную активность люциферазы рассчитывали путем нормализации к значению pRLTK. Результаты эксперимента выражали в виде кратности изменений путем сравнения активности люциферазы клеток, индуцированных рекомбинантным вектором, с активностью клеток, индуцированных пустым вектором, в той же концентрации. Каждое значение было показано как среднее ± SD (n=3), а столбцы со звездочкой значительно отличались (* p <0,05, ** p <0,01).

Рисунок 5. Mc-novel_miR_145 нацелен на McIL-17-3. (А) Последовательность UTR McIL-17-3 30 была встроена в вектор pmiR-RB-Report™, сконструированный соответственно дикого типа и мутантной плазмиды. Последовательность Mcnovel_miR{{10}} и целевой сайт McIL-17-3-30 UTR и последовательность мутантного сайта были помечены красными маркерами. (B) Плазмиду McIL-17-3-30 UTR-WT котрансфицировали с имитатором Mc-novel_miR_145 или Mc-novel_miR{{2{{37} }}} ингибитор в клетках HEK293. (C) Клетки HEK293 трансфицировали McIL-17-3-30 UTR-WT или мутантным типом McIL-17-3-30 UTR-MUT вместе с Mc-novel_miR_145 или NC. , в течение 24 часов. Активность люциферазы измеряли с использованием репортерной системы с двойной люциферазой. (D) Эксперименты с градиентом концентрации проводились для трансфекции Mc-novel_miR_145. Все данные представлены как средние значения ± стандартное отклонение по крайней мере из трех независимых трехкратных экспериментов. **, р < 0,01, *, р < 0,05 по сравнению с контролем. (Для интерпретации ссылок на цвет в легенде к рисунку читатель отсылается к веб-версии этой статьи.)
2.6. Mc-novel_miR_145 отрицательно регулирует экспрессию McIL-17-3
Гемоциты M. coruscus трансфицировали миметиком Mc-novel_miR_145, ингибитором Mcnovel_miR_145 и их соответствующими контролями, а также наблюдали изменения в McIL{{ Экспрессию 5}} оценивали на уровне транскрипции и белка. Как показано на рисунке 6A, экспрессия Mc-novel_miR_145 значительно повышалась (увеличение в 8,83- раз) за счет ее мимикрии и подавлялась ({{14 }}.41-кратное снижение) его репрессором в гемоцитах, что позволяет предположить эффективное действие этих синтетических соединений. На рисунке 6B экспрессия эндогенного McIL-17-3 была значительно ингибирована (0.51-кратное снижение) миметиком Mc-novel_miR_145 на рисунке 6B. уровень транскрипции и значительно индуцируется (увеличение в 2,42- раза) ингибитором Mcnovel_miR_145. Чтобы исследовать влияние Mc-novel_миР_145 на экспрессию McIL-17-3 на уровне белка, было получено поликлональное антитело против McIL-17-3. Как показано на дорожках 2 и 3 на рисунке 6C, рекомбинантный белок McIL-17-3 был успешно экспрессирован в E. coli. Специфичность антител исследовали с помощью белка мидий из гемоцитов с помощью вестерн-блоттинга. Наблюдалась единственная полоса около 22 кДа, соответствующая молекулярной массе McIL-17-3 (дорожка 4 на рисунке 6C). Результаты вестерн-блоттинга на рисунке 6D показали негативную регуляцию McIL-17-3 на уровне белка с помощью Mc-novel_миР_145.
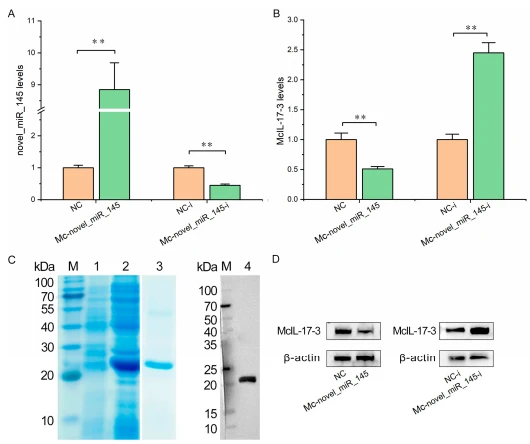
FРисунок 6. Mc-novel_miR_145 ингибировал экспрессию McIL-17-3 в гемоцитах M. coruscus. (A) Экспрессию Mc-novel_miR_145 оценивали с помощью кПЦР в гемоцитах, трансфицированных 145 миметиками, 145 ингибиторами и их соответствующим контролем. (B) После трансфекции в течение 24 часов уровни транскрипции McIL-17-3 определяли с помощью кПЦР. (C) Рекомбинантная экспрессия, очистка и приготовление антисыворотки для McIL-17-3. Лейн М, стандартный маркер молекулярной массы белка. Дорожка 1, отрицательный контроль (без индукции). Дорожка 2 — индуцированный рекомбинантный белок McIL-17-3. Дорожка 3, очищенный McIL- 17-3. Дорожка 4, вестерн-блоттинг с антителом против McIL{{20}} в гемоцитах M. coruscus. (D) После трансфекции в течение 24 часов уровни белка McIL-17-3 определяли с помощью вестерн-блоттинга. ** p < 0,01 по сравнению с контролем
2.7. Апоптоз гемоцитов
Скорость апоптоза гемоцитов четырех групп, т.е. NC+LPS, McIL-17-3+LPS, Mcnovel_miR_145+McIL-17-3+LPS и Mc-novel{{6} }miR_145-i+McIL-17-3+LPS анализировали методом проточной цитометрии с использованием двойного окрашивания. После сверхэкспрессии McIL-17-3 скорость апоптоза гемоцитов, подвергнутых воздействию LPS, значительно повышалась по сравнению с контрольной группой (рис. 7A(a,b), B). Когда McIL-17-3 котрансфицировали Mc-novel_миР_145, скорость апоптоза гемоцитов, индуцированная LPS, значительно снижалась по сравнению с таковой для McIL-17-3, трансфицированного отдельно (рис. 7A( б, в), Б). Напротив, скорость апоптоза гемоцитов продемонстрировала заметное увеличение в группе Mc-novel_miR_145-i+ McIL-17-3+LPS по сравнению с группой McIL-17-3+LPS (рис. 7A). (б,г), Б).

Рисунок 7. Скорость апоптоза гемоцитов оценивали с помощью проточной цитометрии с использованием йодида пропидия (PI) и окрашивания FITC-аннексином-V.
3. Обсуждение
IL-17 признан одним из важных семейств провоспалительных цитокинов, которые могут эффективно участвовать в патогенезе различных заболеваний [42]. В нашем предыдущем исследовании гомолог IL-17 M. coruscus продемонстрировал дифференциальную экспрессию до и после заражения V. alginolyticus посредством секвенирования транскриптома [41], что указывает на его потенциальную роль во врожденном иммунном ответе на бактериальное воздействие. Здесь мы охарактеризовали этот гомолог IL-17 и назвали его McIL-17-3. Прогнозирование функционального домена выявило типичный домен IL-17, обеспечивающий принадлежность идентифицированного в настоящее время гена к семейству цитокинов IL-17. На филогенетическом дереве этот новый ген IL-17 показал очень близкое родство с IL-17- 3 другого вида Mytilus, M. Galloprovincialis. Кроме того, они имели очень высокую идентичность аминокислот (95%), и поэтому мы номинировали текущий новый ген IL-17 как McIL-17-3, чтобы следовать соглашению об именах, используемому у видов Mytilus. Семейство IL-17 состоит из шести членов и пяти рецепторов у человека [43], но оно претерпело огромное генетическое распространение у морских беспозвоночных, особенно у мидий [11]. На основании этого наши данные показали, что McIL-17-3 не имеет прямого отношения к определенным генам семейства IL-17 человека. Складка цистеинового узла, расположенная на -листах, является типичной характеристикой семейства IL-17 [5]. Ожидалось, что предсказание третичной структуры выявило складку цистеинового узла в белке McIL-17-3, что еще больше углубляет принадлежность McIL-17-3 к семейству цитокинов IL-17. Для дальнейшего изучения дифференциации аминокислотных последовательностей IL-17 среди разных видов мы использовали некоторые типичные IL-17 мидий и IL-17-A Mus musculus к IL-17-F и Danio rerio. От IL-17-1 до IL-17-3 были выбраны для выполнения анализа множественного выравнивания. Результаты показали интересный факт: положение дисульфидных связей IL-17 у мидий и позвоночных было непостоянным: эти две дисульфидные связи существовали между -цепями 1 и 3, 2 и 4 соответственно у мидий, но только между -цепи 2 и 4 у позвоночных. В первом и четвертом сайтах цистеина IL-17 позвоночных заменяют цистеин серином; напротив, во втором сайте цистеина IL-17 мидий заменяют цистеин на треонинентацию по дисульфидной связи у мидий и позвоночных, и лежащий в основе этого механизм неясен и требует дальнейшего изучения. Учитывая полиморфизм IL-17 у мидий, дисульфидная связь между -нитями 1 и 3 может быть не такой сильной, как между 2 и 4, что придает им большую пластичность у мидий. В любом случае, анализ функциональных доменов и третичной структуры предполагает, что идентифицированный в настоящее время McIL-17-3 типичен для цитокина IL-17 мидий и может играть аналогичную функциональную роль, что и его аналоги у моллюсков. Экспрессия генов IL-17 в тканях человека широко варьируется: некоторые экспрессируются лишь в нескольких клетках, а другие - в большом количестве тканей [44,45]. Большинство исследований на моллюсках показали, что IL-17 имеют конститутивный профиль экспрессии [13,15,17,46,47]. Тем не менее, Ли, Чжан, Чжан, Сян, Тонг, Цюй и Юй [47] показали противоречивый результат в C. gigas IL-17s: CgIL-17-2, -3, {{ 65}} и -6 были высоко экспрессированы в жабрах, пищеварительных железах и мантии C. gigas, но практически не экспрессировались в других тканях. Здесь транскрипты McIL-17-3 были обнаружены во всех исследованных тканях, что указывает на его множественную функциональную роль в различных физиологических процессах. Однако высокие уровни экспрессии McIL-17-3 в некоторых тканях моллюсков, связанных с иммунной системой, таких как гемоциты, жабры и пищеварительные железы, предполагают его более тесное участие в иммунном ответе. Кроме того, его быстрая реакция на атаку V. alginolyticus усугубляет этот вопрос. Инъекция V. alginolyticus значительно повышала экспрессию McIL-17-3, и аналогичные результаты наблюдались и у других IL-17 моллюсков. Инъекция V. anguillarum в C. gigas вызывала быстрое увеличение количества транскриптов CgIL-17 в гемоцитах, что позволяет предположить, что это ген ранней фазы иммунитета [46]. Когда C. gigas подвергся атаке другого патогена, V. splendidus, уровень мРНК CgIL-17-5 в гемоцитах также был значительно повышен [15]. Стимуляция ЛПС, основного патогенного компонента бактерий, резко увеличивала экспрессию PfIL-17 в пищеварительных железах жемчужницы P. fucata [17]. Кроме того, ЛПС может индуцировать экспрессию CgIL-17-3 у C. gigas [47] и PmIL-17-2 у P. fucata martensii [13]. В совокупности эти результаты показали, что IL-17 играет важную роль в иммунной защите моллюсков от бактериального нападения. В этом исследовании McIL-17-3 продемонстрировал способность активации нижестоящего пути NF-κB. Подобные результаты наблюдались и у некоторых видов моллюсков. У жемчужницы P. fucata PfIL-17 также продемонстрировал активацию пути NF-κB в клетках HEK293 с помощью репортерного анализа люциферазы [17]. У C. gigas CgIL-17-5 способствовал активации CgMAPK и ядерной транслокации CgRel и CgAP-1, способствуя экспрессии мРНК цитокинов и антибактериальных пептидов [15]. Показано, что механизм действия IL-17 основан на его объединении в димеры (гомодимеры или гетеродимеры), активность которых сильно зависит от их прикрепления к рецепторам (IL-17Rs), которые они цель. Эти рецепторы содержат консервативный цитоплазматический домен (SEFIR), который взаимодействует с адаптерными белками, инициируя последующие пути передачи сигнала для активации факторов транскрипции, таких как NF-κB, и стимулирования экспрессии иммунных и провоспалительных генов-мишеней, таких как цитокины и антимикробные пептиды. 11,48,49].

цистанхе трубчатой – улучшает иммунную систему
Эти результаты позволяют предположить, что IL-17 моллюсков могут иметь тот же механизм действия, что и их аналоги у позвоночных. Это необходимо подтвердить в будущих исследованиях. Корреляции между микроРНК и IL-17 были обнаружены в нескольких моделях заболеваний человека. Ниимото и др. [50] подтвердили положительную корреляцию между экспрессией миР-146a и IL-17a в мононуклеарных клетках периферической крови и синовиальной оболочке пациентов с ревматоидным артритом и обобщили жизненно важную функцию миР-146a в дифференцировка клеток, продуцирующих IL-17-. У пациентов с псориазом миР-146a действует как мощный ингибитор воспаления кожи, вызванного IL-17-, а ее низкие уровни могут способствовать раннему началу заболевания у генетически предрасположенных людей [51]. МиР-146a может облегчить пародонтит за счет снижения экспрессии IL-17 и ингибирования пролиферации стволовых клеток периодонтальной связки человека [52]. МиР-155 отрицательно регулирует экспрессию IL-17, участвуя в иммунном ответе хозяина на поствирусную бактериальную пневмонию в легких мышей; Мыши с ингибированием miR-155 демонстрируют более сильную экспрессию IL-17 в легких, что сопровождается улучшенным бактериальным клиренсом [53]. Эти исследования показывают, что IL-17 регулируется множеством микроРНК и варьируется в зависимости от заболевания и типа клеток [20]. В предыдущем исследовании мы провели комплексный анализ микроРНКома и транскриптома, чтобы изучить интерактивную регуляцию микроРНК-мРНК M. coruscus в ответ на инфекцию V. alginolyticus. Результаты предсказывали, что Mc-novel_miR_145 может нацеливаться на McIL-17-3 для участия во врожденном иммунном ответе на бактериальную инфекцию [41]. С целью более глубокого изучения основного механизма Mcnovel_miR_145 регуляции McIL-17-3 в настоящих исследованиях была проведена серия лабораторных экспериментов. Расчеты показали, что Mc-novel_miR_145 может быть нацелен на 30 UTR McIL-17-3. Следующие репортерные анализы люциферазы выполнены в клетках HEK293, совместно трансфицированных Mc-novel_miR_145 имитатором, имитатором NC, ингибитором, ингибитором NC с McIL-17-3-30 UTR-WT, репортером -MUT плазмиды еще раз подтвердили эту точку зрения. Кроме того, миметик Mc-novel_miR_145, имитатор NC, ингибитор и NC-ингибитор трансфицировали в гемоциты M. coruscus для оценки их влияния на экспрессию McIL-17-3 на уровне транскрипции и белка. . Экспрессия McIL-17-3 была значительно снижена в группе трансфекции мимика Mc-novel_miR_145, но значительно повышена в группе Mc-novel_miR. _145 группа ингибиторов трансфекции, что позволяет предположить негативную регуляцию McIL-17-3 с помощью Mc-новальной_миР_145. Текущие результаты противоречат предыдущим исследованиям. В Pinctada martensii Тиан, Чжэн, Хуан, Цзяо и Ду [30] обнаружили, что, хотя Pm-miR-29a может нацеливаться на IL-17, регуляция была положительной, поскольку экспрессия IL{{ 65}} в мантии и жабрах Pinctada martensii повышалась экспрессия после сверхэкспрессии Pm-miR-29a. Учитывая, что P. martensii и M. coruscus оба принадлежат двустворчатым моллюскам и относительно тесно связаны, эти противоречивые результаты позволяют предположить, что регуляция IL-17s у моллюсков может варьировать в зависимости от miRNAs. Кроме этого, ни в одной литературе не сообщалось о корреляции между микроРНК и IL-17 у моллюсков, и поэтому больше нет параллельных исследований для сравнения текущих результатов. Однако в нескольких исследованиях сообщалось о таргетных связях между специфическими микроРНК и специфическими генами, связанными с иммунитетом, у моллюсков.
Например, cgi-miR-2d усиливает фагоцитоз гемоцитов устриц, отрицательно регулируя CgIκB2 у Crassostrea gigas [31]. Кроме того, cgi-miR-2d также отрицательно регулирует экспрессию одного гена, подобного транспортеру холина, который участвует в сложной иммуномодуляции гемоцитов устриц на ранней стадии инфекции [32]. Эти исследования, по крайней мере, предполагают, что miRNAs играют потенциальную роль в передаче сигналов врожденного иммунитета, воздействуя на специфические гены у моллюсков, так же, как они это делают у позвоночных. Далее мы попытались изучить потенциальную функцию взаимодействия между Mcnovel_miR_145 и McIL{{10}} во врожденном иммунитете M. coruscus и их роль в В центре нашего внимания находится апоптоз, индуцированный ЛПС. ЛПС представляет собой высокопровоспалительную молекулу, которая является компонентом внешней оболочки всех грамотрицательных бактерий. Было показано, что ЛПС индуцирует апоптоз в различных клетках и тканях, таких как макрофаги [54], эндотелиальные клетки [55] и легкие мыши [56]. Предварительный эксперимент показал, что воздействие ЛПС в номинальной концентрации 0,1 мг/мл в течение 24 ч существенно индуцирует апоптоз гемоцитов M. coruscus. После сверхэкспрессии McIL-17-3 уровень апоптоза гемоцитов M. coruscus был значительно повышен по сравнению с контрольной группой, что позволяет предположить, что McIL-17-3 может усиливать LPS-индуцированный апоптоз гемоцитов M. coruscus. Текущие результаты согласуются с некоторыми предыдущими исследованиями. В нейтрофилах человека IL-17A может уменьшать антиапоптотические эффекты, опосредованные фактором, стимулирующим колонии гранулоцитов-макрофагов [57]. IL-17 индуцирует апоптоз сосудистых эндотелиальных клеток, что является потенциальным механизмом острого коронарного синдрома [58]. Генетическая делеция IL-17A снижает апоптоз альвеолярных клеток типа II и, таким образом, облегчает хроническую обструктивную болезнь легких [59]. Однако до сих пор существуют противоположные аргументы. Когда мыши инфицированы вирусом мышиного энцефаломиелита Тейлера, IL-6 и IL-17 синергически способствуют персистенции вируса, ингибируя клеточный апоптоз [60]. Эти конфликты позволяют предположить, что основной механизм IL-17-опосредованного апоптоза сложен, и IL-17 могут играть противоположные функции в зависимости от типа инфекции.
Когда McIL-17-3 были котрансфицированы с Mc-novel_миР_145, уровень апоптоза, индуцированного LPS, был значительно снижен по сравнению с единственным трансфицированным McIL-17-3 В группе, соответственно, уровень апоптоза значительно повышался после совместной трансфекции McIL-17-3 с ингибитором Mc-novel_miR_145. Было показано, что Mc-novel_miR_145 отрицательно регулирует McIL-17-3, и поэтому мы пришли к выводу, что McIL-17-3 усугубляет апоптоз гемоцитов, индуцированный ЛПС, тогда как Mc-novel _miR_145 смягчил последствия. За последние несколько лет у моллюсков было идентифицировано несколько микроРНК, которые, как было показано, участвуют в апоптозе клеток человека и мыши. Например, miR-125b и miR- 335 были обнаружены у плоской устрицы Ostrea edulis [21], miR-184 обнаружены в гемоцитах устрицы Crassostrea gigas [23], а miR{{ 26}}, -29, -96, -182 и -193 обнаружены в регенерирующей центральной нервной системе L. stagnalis [25]. Эти связанные с апоптозом микроРНК, идентифицированные с помощью высокопроизводительного секвенирования и биологических расчетов, подтверждают существование микроРНК-опосредованного апоптоза у моллюсков. Чен и др. сообщили о повышении регуляции miR-2d после заражения Vibrio splendidus в гемоцитах Crassostrea gigas. Сверхэкспрессия miR-2d коррелировала с нокдауном экспрессии IκB2 и значительным увеличением скорости фагоцитоза гемоцитов, связанным с подавлением апоптоза [31]. Результаты согласуются с нашим текущим исследованием, в совокупности, по-видимому, подразумевающим, что микроРНК оказывают ингибирующую функцию на апоптоз клеток у моллюсков. Фактически, большинство микроРНК, связанных с апоптозом, у людей оказывают ингибирующее действие на апоптоз. МиР-146 защищает клетки A549 и H1975 от LPS-индуцированного апоптоза и воспалительного повреждения посредством активации Sirt1, тем самым блокируя пути NF-κB и Notch [61]. Кроме того, миР-146 ослабляет апоптоз гепатоцитов, индуцированный облучением и ЛПС, посредством ингибирования пути TLR4 [62]. МиР-93 ингибирует апоптоз хондроцитов при остеоартрите, воздействуя на сигнальный путь TLR4/NF-κB [63]. МиР-129-5p облегчает повреждение спинного мозга у мышей путем подавления апоптоза через путь HMGB1/TLR4/NF-κB [64]. Однако все еще существуют некоторые специфические микроРНК, которые оказывают усиливающее действие на апоптоз. Например, было обнаружено, что miR-203 ускоряет апоптоз, индуцированный ЛПС, путем нацеливания на PIK3CA в альвеолярные эпителиальные клетки [65]. Эти результаты указывают на сложность основного механизма микроРНК-опосредованного апоптоза.
4. Материалы и методы.
4.1. Экспериментальная дизайн
Во-первых, McIL-17-3 был идентифицирован и охарактеризован у M. coruscus посредством биоинформационного анализа. После этого распределение транскриптов McIL-17-3 в тканях, а также его ответ на бактериальное воздействие оценивали с помощью количественного анализа ПЦР в реальном времени (кПЦР). Затем связь между McIL-17-3 и Mc-novel_миР_145 определяли с помощью репортерного анализа люциферазы, проведенного в клетках HEK293 и гемоцитах M. coruscus. Кроме того, с помощью проточной цитометрии оценивали их функциональную роль в апоптозе, индуцированном ЛПС.
4.2. Искусственная морская вода
После трех дней аэрации городской водопроводной воды добавляли растворимый морской кристалл (Haiding LTD, Цзиань, Китай), тщательно перемешивали и расплавляли до достижения солености 30‰. Перед использованием настроенную искусственную морскую воду необходимо аэрировать в течение 2 часов.
4.3. Животные
Толстоскорлупная мидия M. coruscus (длина раковины 9,82 ± 0,53 см, ширина раковины 4,68 ± 0,45 см, сырая масса 71,2 ± 2,7 г) приобретена на рынке Дунхэ. в Чжоушань, провинция Чжэцзян, Китай. Перед последующими экспериментами все мидии содержались в резервуарах, заполненных АСВ с температурой около 25 ◦C и соленостью 30 ‰, более недели.
4.4. Идентификация кДНК McIL-17-3
Гомолог IL-17 (McIL-17-3) был клонирован in silico из полноразмерного транскриптома M. coruscus (номер доступа: PRJNA798880, F01_транскрипт_12404). Процедура Blast была выполнена для предсказания предполагаемой аминокислотной последовательности McIL-17-3 с последующим анализом функционального домена с помощью SMART и оценкой филогенетического родства с помощью MEGA-X. Множественное выравнивание выполнялось с использованием процедуры ClustalW. Швейцарская модель и пул использовались для предсказания третичной структуры белка McIL-17-3. Подробная процедура соответствовала нашему предыдущему исследованию [66].
4.5. Количественные ПЦР в реальном времени
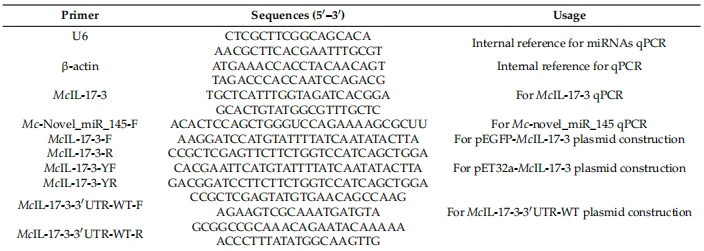
Количественный ПЦР в реальном времени (кПЦР) — мощный инструмент для обнаружения и измерения уровней экспрессии генов. Здесь распределение McIL-17-3 в тканях оценивалось с помощью метода qPCR. Кроме того, с помощью кПЦР также были обнаружены изменения в экспрессии мРНК McIL-17-3 в ответ на бактериальную инфекцию. Профиль распределения McIL-17-3 в тканях определяли в жабрах, мантии, пищеварительных железах, гонадах, приводящих мышцах и гемоцитах с помощью кПЦР, запрограммированной при 95 ◦C в течение 10 мин, с последующими 40 циклами по 95 ◦С в течение 10 с, 60 ◦С в течение 45 с. Эти ткани были выделены из девяти особей мидий и объединены вместе, чтобы облегчить индивидуальную дифференциацию. В эксперименте по заражению бактериями в качестве иммунных стимулов использовали живой V. alginolyticus. В аддуктор мидий вводили объем 100 мкл растворенных в морской воде бактерий (1 × 10⁸ КОЕ мл-1). В качестве контроля не использовали инъецированные мидии. Из каждой группы случайным образом отбирали девять мидий через 0, 3, 6, 12, 24 и 36 часов после заражения (hpc). Гемоциты трех мидий были объединены вместе, чтобы считаться одним образцом, и для каждого момента времени было по три образца. МикроРНК экстрагировали с использованием набора для экстракции микроРНК (HaiGENE, кат. №: B1802), кДНК синтезировали с использованием набора кДНК первой цепи miRcute Plus miRNA (Tiangen, кат. №: 4992786) и проводили кПЦР с использованием Набор miRcute Plus для кПЦР микроРНК (Tiangen, кат. номер: 4992887). Гены U6 и -актина использовались в качестве внутренних эталонов для кПЦР и кПЦР микроРНК соответственно. Конкретные пары праймеров, использованные в этом эксперименте, перечислены в таблице 1. Относительные уровни экспрессии измерялись с использованием метода 2-∆∆Ct [67].
Таблица 1. В настоящем исследовании использовались пары праймеров для ПЦР.
4.6. Культура клеток
Клетки млекопитающих HEK293 (RiboBio Ltd., Гуанчжоу, Китай) использовали для проведения репортерных анализов люциферазы для определения последующей активации McIL- 17-3, а также связи между Mc-novel_miR{{ 4}} и McIL-17-3. Клетки HEK293 культивировали в среде OPTI-MEM (GIBCO) при 37 ◦C, 5% CO2. Для дальнейшего изучения регуляции McIL-17-3 с помощью Mc-novel_миР_145 и их функциональной роли в апоптозе, индуцированном ЛПС, гемоциты M. coruscus были извлечены из приводящей мышцы каждого мидии с помощью одноразовой иглы диаметром 0,5 мм (25 G), содержащей 0,5 мл антикоагулянта. Гемоциты собирали центрифугированием в течение 5 мин при 3000 об/мин, 4°С и добавляли 0,25% трипсин (Solarbio). Гемоциты суспендировали в среде L-15, содержащей 15% фетальной бычьей сыворотки (Solarbio), и культивировали при 26 ◦C с 5% CO2.
4.7. Синтез миметика и ингибитора микроРНК
Мак-новелла_miR_145 миметик, ингибитор и контрольные нуклеотиды были составлены компанией GenePharma (Шанхай). Их последовательность следующая: Mc-novel_miR_145 имитатор, 52032- UCCAGAAAAGCGCUUCGGACG-30; Ингибитор Mc-novel_miR_145, 50 -CGUCCGAAGCG CUUUUCUGGA-30 (химически модифицированный 20 Оме); имитатор отрицательного контроля, 50 -UUGUA CUACACAAAAGUACUG-30; и ингибитор отрицательного контроля 50 -CAGUACUUUUGUGU AGUACAA-30 (химически модифицированный 20 Оме).
4.8. Репортерный анализ люциферазы
Репортерные анализы люциферазы широко используются для изучения экспрессии генов и регуляторной активности. Количество генерируемого света пропорционально количеству вырабатываемого фермента люциферазы, что, в свою очередь, отражает активность регуляторного элемента. Затем активность люциферазы измеряют с помощью люминометра, результаты анализируют и интерпретируют для определения регуляторной активности изучаемого элемента. Репортерные анализы люциферазы использовали для анализа последующей активации McIL{{0}}. В этом эксперименте плазмида pEGFP-McIL-17-3 (0.1, 0.5 и 1.0 мкг/лунку) вместе с pGLNF-κb- Репортерную плазмиду luc (0,25 мкг/лунку) котрансфицировали в клетки HEK293 с использованием Lipo6000TM в течение 24 часов. В качестве контроля использовали пустую плазмиду pEGFP-N1. Активность люциферазы измеряли с использованием репортерной системы анализа Dual-Luciferase® (Promega, Madison, WI, USA) согласно спецификации, с использованием люциферазы Renilla в качестве промежуточного контроля. Mc-novel_miR_145, нацеленный на McIL-17-3, также был подтвержден репортерными анализами люциферазы. Биоинформатические расчеты предсказали, что Mc-novel_miR_145 может нацеливаться на 30 -UTR McIL-17-3, и впоследствии клонировали 30 -UTR McIL{{ 29}} в репортерный вектор люциферазы pmiR-RB-ReportTM для конструирования дикой репортерной плазмиды McIL-17-3-30 UTR-WT. Репортерный вектор McIL-17-3-30 UTR-MUT мутантного типа был сконструирован путем мутации нуклеотида в сайтах 1023–1040: TCCGAAGCGCTTTTCTGG на AGGCTTCGCGAAGACC. ОлигоРНК (Mc-novel_miR_196 NC, миметик, NCi, ингибитор) трансфицировали вместе с McIL-17-3- 3 0 UTR-WT или McIL-17-3-30 UTR-MUT в HEK293. клетки с использованием Lipo6000TM.
4.9. Рекомбинантная экспрессия, очистка и получение антисыворотки
Для оценки влияния Mc-novel_miR_145 на экспрессию белка McIL-17-3 была приготовлена антисыворотка к McIL-17-3. Фрагмент кДНК, покрывающий открытую рамку считывания (ORF) McIL-17-3, амплифицировали с одной конкретной парой праймеров (таблица 1) и встраивали в вектор pET-32a. Рекомбинантную плазмиду pET-32a-McIL{{10}} трансформировали в Escherichia coli (DE3) (Takara) и инкубировали в среде LB (содержащей 50 мг/л-1). канамицин) при 37 ◦С со встряхиванием при 130 об/мин в течение 4 ч. После того, как оптическая плотность достигла поглощения 0.6 при 600 нм, к бактериальному раствору добавляли изопропил-бета-D-тиогалактопию (IPTG) с конечной концентрацией 1 мМ, чтобы индуцировать экспрессию рекомбинантного McIL{ {24}} белок (rMcIL-17-3). После инкубации при 37 ◦C в течение 6 ч среду центрифугировали при 8000 об/мин в течение 30 мин для сбора бактерий с последующим суспендированием в буфере TBS (20 мМ Tris-HCl, 150 мМ NaCl, pH 8,0). rMcIL-17-3 очищали аффинной хроматографией на Ni-нитрилотриуксусной кислоте (NI-NTA), а очищенный белок диализовали из имидазола в течение 24 часов. Полученный белок выделяли путем электрофореза в восстанавливающем 12% ДСН-полиакриламидном геле (ДСН-ПААГ). Очищенный белок рефолдировали в градиентном глицериновом буфере мочевина-TBS (50 мМ Трис-HCl, 50 мМ NaCl, 2 мМ восстановленного глутатиона, 10% глицерина, 0,2 мМ оксида глутатиона, градиентная концентрация мочевины 6, 4, 3, 2). , 1 и 0 М мочевины в каждом градиенте, рН 7,4, каждый градиент при 4 ◦С в течение 12 ч). Затем полученный белок использовали для иммунизации мышей 6-недельного возраста для приобретения поликлональных антител.
4.10. Вестерн-блоттинг
Образцы белка экстрагировали из гемоцитов с помощью лизирующего буфера RIPA (Beyotime), а затем концентрацию определяли с помощью набора BCA. После выделения методом SDS-PAGE белок переносили на ПВДФ-мембраны с запечатыванием 5%-ным сухим обезжиренным молоком в TBST (20 ММ Трис-HCl, 150 мМ NaCl, 1% Твин-20, pH 8.0), с последующей инкубацией антитела против McIL-17-3 в течение ночи. Затем мембраны инкубировали с разбавленным раствором козьего антимышиного IgG-антитела и конъюгата щелочной фосфатазы (Thermo Fisher Scientific, Кат. №: 31324) в буфере для разведения вторичных антител (Beyotime, P0258) в течение 3 часов. Наконец, иммунореактивные белки были обнаружены с помощью системы обнаружения ECL.
4.11. Апоптоз
Апоптоз гемоцитов оценивали с помощью проточной цитометрии в соответствии с руководством к набору для обнаружения апоптоза FITC-Annexin-V (Beyotime). Вкратце, собранные гемоциты обрабатывали в течение 24 часов ЛПС (0,1 мг/мл), 20 нМ плазмиды pEGFP-McIL-17-3, Mc новой_миР{{9} } имитатор и ингибитор Mc-novel_miR_145. После промывки PBS клетки ресуспендировали в среде L15 до конечной концентрации 1 × 10⁶ клеток/мл и окрашивали FITC-аннексином-V и PI, инкубируя при комнатной температуре в течение 25 минут в темноте. . Наконец, для обнаружения клеточного апоптоза использовали прибор проточной цитометрии (Beckman CytoFLEX FCM), а данные анализировали с использованием программного обеспечения FlowJoTM 10. 4.12. Статистический анализ. Экспериментальные результаты были представлены как среднее ± стандартное отклонение (SD). Результаты были обработаны с использованием двустороннего дисперсионного анализа с использованием теста множественных сравнений Тьюки, а для анализа данных и построения цифр использовалось программное обеспечение Origin2021.

растение цистанхе, повышающее иммунную систему
5. Выводы
В этом исследовании у M. coruscus был идентифицирован новый гомолог IL-17, McIL-17-3, который играет решающую роль в иммунной защите моллюсков от бактериального нападения. Более того, было обнаружено, что McIL-17-3 негативно регулируется Mc-novel_miR_145, что способствует его участию в LPS-индуцированном апоптозе. Результаты этого исследования дают ценную информацию о регуляторной роли IL-17 в иммунном ответе мидий и подчеркивают потенциал некодирующей РНК в регуляции механизмов иммунной защиты беспозвоночных. Однако важно отметить, что в этом исследовании существуют некоторые ограничения. В частности, механизм действия McIL-17-3 не изучен и требует дальнейшего изучения. Кроме того, это исследование было сосредоточено только на взаимодействии между Mc-novel_miR_145 и McIL-17-3 и не изучало возможное участие других микроРНК в иммунном ответе. В целом, это исследование подчеркивает важную роль некодирующих РНК в механизмах иммунной защиты и предполагает, что их модуляция может служить потенциальной стратегией таргетной терапии различных заболеваний.
Рекомендации
1. Меджитов Р.; Джейнвей К.-младший. Врожденный иммунитет. Н. англ. Дж. Мед. 2000, 343, 338–344. [Перекрестная ссылка] [PubMed]
2. Лейси, П.; Стоу, Дж. Л. Высвобождение цитокинов из клеток врожденного иммунитета: связь с разнообразными путями мембранного транспорта. Блад Дж. Ам. Соц. Гематол. 2011, 118, 9–18. [Перекрестная ссылка] [PubMed]
3. Динарелло, К.А. Провоспалительные цитокины. Сундук 2000, 118, 503–508. [Перекрестная ссылка] [PubMed]
4. Раута, ПР; Наяк, Б.; Дас, С. Иммунная система и иммунные реакции у рыб и их роль в сравнительном изучении иммунитета: модель для высших организмов. Иммунол. Летт. 2012, 148, 23–33. [Перекрестная ссылка]
5. Химовиц, С.Г.; Фильваров, Э.Х.; Инь, Дж.; Ли, Дж.; Кай, Л.; Риссер, П.; Маруока, М.; Мао, В.; Фостер, Дж.; Келли, РФ IL-17 принимает складку цистинового узла: структура и активность нового цитокина, IL-17F, и значение для связывания с рецептором. ЭМБО Дж. 2001, 20, 5332–5341. [Перекрестная ссылка]
6. Бакли, К.М.; Хо, ЕСХ; Хибино, Т.; Шранкель, CS; Шу, Северо-Запад; Ван, GZ; Rast, JP Факторы IL17 являются ранними регуляторами эпителия кишечника во время воспалительной реакции на вибрион у личинки морского ежа. eLife 2017, 6, e23481. [Перекрестная ссылка]
7. Куа, диджей; Тато, К.М. Клетки, продуцирующие врожденный ИЛ-17-: стражи иммунной системы. Нат. Преподобный Иммунол. 2010, 10, 479–489. [Перекрестная ссылка]
8. Миллс, К. Х. IL-17 и клетки, продуцирующие IL-17-, в защите от патологии. Нат. Преподобный Иммунол. 2022, 10, 479–489. [Перекрестная ссылка]
9. Хибино, Т.; Лоза-Колл, М.; Мессье, К.; Мажеске, Эй Джей; Коэн, А.Х.; Тервиллигер, ДП; Бакли, КМ; Броктон, В.; Наир, СВ; Берни, К. Репертуар иммунных генов закодирован в геноме пурпурного морского ежа. Дев. Биол. 2006, 300, 349–365. [Перекрестная ссылка]
10. Альбертин, CB; Симаков О.; Митрос, Т.; Ванга, З.Ы.; Пунгор, младший; Эдсингер-Гонсалес, Э.; Бреннер, С.; Рэгсдейл, штат Вашингтон; Рохсар Д.С. Геном осьминога и эволюция головоногих нейральных и морфологических новинок. Природа 2015, 524, 220–224. [Перекрестная ссылка]
11. Сако, А.; Рей-Кампос, М.; Розани, У.; Новоа, Б.; Фигерас, А. Эволюция и разнообразие интерлейкинов-17 подчеркивают распространение среди морских беспозвоночных и его консервативную роль в иммунитете слизистых оболочек. Передний. Иммунол. 2021, 12, 692997. [CrossRef] [PubMed]
12. Гердол, М.; Морейра, Р.; Круз, Ф.; Гомес-Гарридо, Дж.; Власова А.; Розани, У.; Веньер, П.; Наранхо-Ортис, Массачусетс; Мургарелла, М.; Греко, С. Массивные вариации присутствия-отсутствия генов формируют открытый пангеном средиземноморских мидий. Геном Биол. 2020, 21, 1–21. [Перекрестная ссылка]
13. Цао Ю.; Ян, С.; Фэн, К.; Жан, В.; Чжэн, З.; Ван, К.; Дэн, Ю.; Цзяо, Ю.; Ду, X. Эволюция и функциональный анализ гена интерлейкина -17 Pinctada fucata martensii. Рыба Моллюски Иммунол. 2019, 88, 102–110. [Перекрестная ссылка] [PubMed]
14. Ван, К.; Сяо, Г.; Обнимать.; Чен, Р.; Ли, М.; Тенг, С. Интерлейкин-17D опосредует изменения, связанные с инфекцией Vibrio harveyi, в Tegillarca granulosa посредством активации белка-активатора 1 in vivo. Аквакультура 2023, 566, 739178. [CrossRef]
15. Льв, Х.; Сан, Дж.; Ли, Ю.; Ян, В.; Ван, Л.; Ленг, Дж.; Ян, Х.; Го, З.; Ян, К.; Ван, Л. CgIL17-5 регулирует экспрессию мРНК иммунных эффекторов путем индукции фосфорилирования CgMAPK и ядерной транслокации CgRel и CgAP-1 у тихоокеанской устрицы Crassostrea gigas. Дев. Комп. Иммунол. 2022, 127, 104263. [CrossRef] [PubMed]
16. Ван, Л.; Сан, Дж.; Ву, З.; Лиан, X.; Хан, С.; Хуанг, С.; Ян, К.; Ван, Л.; Сонг, Л. А.П.-1 регулирует экспрессию IL17-4 и IL17-5 у тихоокеанской устрицы Crassostrea gigas. Рыба Моллюски Иммунол. 2020, 97, 554–563. [Перекрестная ссылка]
17. Ву, С.-З.; Хуан, X.-D.; Ли, К.; Он, М.-Х. Интерлейкин-17 в жемчужной устрице (Pinctada fucata): молекулярное клонирование и функциональная характеристика. Рыба Моллюски Иммунол. 2013, 34, 1050–1056. [Перекрестная ссылка]
18. Синь, Л.; Чжан, Х.; Чжан, Р.; Ли, Х.; Ван, В.; Ван, Л.; Ван, Х.; Цю, Л.; Сонг, L. CgIL17-5, древний воспалительный цитокин Crassostrea gigas, проявляющий функции гетерогенности по сравнению с молекулами интерлейкина17 позвоночных. Дев. Комп. Иммунол. 2015, 53, 339–348. [Перекрестная ссылка]
19. Денли, AM; Топы, ББ; Пластерк, Р.Х.; Кеттинг, РФ; Хэннон, Г.Дж. Обработка первичных микроРНК микропроцессорным комплексом. Природа 2004, 432, 231–235. [Перекрестная ссылка]
20. Хан, Д.; Ансар Ахмед, С. Регуляция IL-17 при аутоиммунных заболеваниях с помощью транскрипционных факторов и микроРНК. Передний. Жене. 2015, 6, 236. [CrossRef]
21. Мартин-Гомес, Л.; Вильяльба, А.; Керховен, Р.Х.; Аполло, Э. Роль микроРНК в процессе иммунитета плоской устрицы Ostrea edulis против бона-миоза. Заразить. Жене. Эвол. 2014, 27, 40–50. [Перекрестная ссылка] [PubMed]
22. Сюй, Ф.; Ван, X.; Фэн, Ю.; Хуанг, В.; Ван, В.; Ли, Л.; Фанг, X.; Ке, Х.; Чжан Г. Идентификация консервативных и новых микроРНК у тихоокеанской устрицы Crassostrea gigas путем глубокого секвенирования. PLoS ONE 2014, 9, e104371. [Перекрестная ссылка]
23. Чжоу, З.; Ван, Л.; Песня, Л.; Лю, Р.; Чжан, Х.; Хуанг, М.; Чен, Х. Идентификация и характеристики иммунно-связанных микроРНК в гемоцитах устрицы Crassostrea gigas. PLoS ONE 2014, 9, e88397. [Перекрестная ссылка] [PubMed]
24. Бургос-Асевес, Массачусетс; Коэн, А.; Смит, Ю.; Фаджио, К. Потенциальная регуляция микроРНК генов, связанных с иммунитетом, в гемоцитах беспозвоночных. наук. Тотальная среда. 2018, 621, 302–307. [Перекрестная ссылка]
25. Уокер, SE; Спенсер, GE; Нечаков А.; Карлоне, Р.Л. Идентификация и характеристика микроРНК во время регенерации центральной нервной системы моллюсков, вызванной ретиноевой кислотой. Межд. Дж. Мол. наук. 2018, 19, 2741. [CrossRef] [PubMed]
26. Або-Аль-Эла, Х.Г.; Фаджио, К. Реакция на стресс, опосредованная микроРНК, у двустворчатых моллюсков. Экотоксикол. Окружающая среда. Саф. 2021, 208, 111442. [CrossRef] [PubMed]
27. Хуанг, С.; Ёситаке, К.; Асадуззаман, М.; Киношита, С.; Ватанабэ, С.; Асакава, С. Открытие и функциональное понимание микроРНК у моллюсков: подход к полногеномному профилированию. РНК Биол. 2021, 18, 1702–1715. [Перекрестная ссылка]
28. Розани, У.; Бортолетто, Э.; Бай, К.-М.; Новоа, Б.; Фигерас, А.; Веньер, П.; Фромм, Б. Изучение микроРНК двустворчатых моллюсков: между сохранением и инновациями. Филос. Пер. Р. Сок. Б 2021, 376, 20200165. [CrossRef]
29. Вс, Х.; Чжан, Т.; Ли, Л.; Ту, К.; Ю, Т.; Ву, Б.; Чжоу, Л.; Тиан, Дж.; Лю, З. Характер экспрессии микроРНК в поперечнополосатых и гладких приводящих мышцах гребешка Йессо Patinopecten Yessoensis. Геномика 2022, 114, 110409. [CrossRef]
30. Тиан Р.; Чжэн, З.; Хуанг, Р.; Цзяо, Ю.; Du, X. miR-29a участвовала в формировании перламутра и иммунном ответе, нацеливаясь на Y2R в Pinctada martensii. Межд. Дж. Мол. наук. 2015, 16, 29436–29445. [Перекрестная ссылка]
31. Чен, Х.; Чжоу, З.; Ван, Х.; Ван, Л.; Ван, В.; Лю, Р.; Цю, Л.; Сонг, Л. Специфичная для беспозвоночных и иммунозависимая микроРНК усиливает фагоцитоз гемоцитов устриц, нацеливаясь на CgIκB2. наук. Отчет 2016, 6, 1–10. [Перекрестная ссылка] [PubMed]
32. Чен, Х.; Чжоу, З.; Ван, Л.; Ван, Х.; Лю, Р.; Чжан, Х.; Сонг, Л. МикроРНК, специфичная для беспозвоночных, воздействовала на древнюю холинергическую нейроэндокринную систему устриц. Открытая биол. 2016, 6, 160059. [CrossRef]
33. Чен, Х.; Синь, Л.; Песня, X.; Ван, Л.; Ван, В.; Лю, З.; Чжан, Х.; Ван, Л.; Чжоу, З.; Цю, Л. Чувствительная к норэпинефрину микроРНК напрямую способствует экспрессии CgHSP90AA1 в гемоцитах устриц во время высыхания. Рыба Моллюски Иммунол. 2017, 64, 297–307. [Перекрестная ссылка] [PubMed]
34. Хан, З.; Ли, Дж.; Ван, В.; Ли, Дж.; Чжао, К.; Ли, М.; Ван, Л.; Сонг, Л. Кальмодулин, на который нацелен каркас микроРНК659_26519, регулирует экспрессию IL-17 в раннем иммунном ответе устрицы Crassostrea gigas. Дев. Комп. Иммунол. 2021, 124, 104180. [CrossRef] [PubMed]
35. Льв, З.; Ли, К.; Чжан, П.; Ван, З.; Чжан, В.; Джин, К.-Х. миР-200 модулирует антибактериальную активность целомоцитов и праймирование ЛПС посредством нацеливания на Tollip у Apostichopus japonicus. Рыба Моллюски Иммунол. 2015, 45, 431–436. [Перекрестная ссылка]
36. Ли, К.; Чжао, М.; Чжан, К.; Чжан, В.; Чжао, X.; Дуань, X.; Сюй, W. miR210 модулирует респираторный взрыв в целомоцитах Apostichopus japonicus путем воздействия на Toll-подобный рецептор. Дев. Комп. Иммунол. 2016, 65, 377–381. [Перекрестная ссылка]
37. Льв, М.; Чен, Х.; Шао, Ю.; Ли, К.; Чжан, В.; Чжао, X.; Джин, К.; Сюн, Дж. miR-92a регулирует апоптоз целомоцитов трепанга Apostichopus japonicus посредством нацеливания на Aj14-3-3ζ in vivo. Рыба Моллюски Иммунол. 2017, 69, 211–217. [Перекрестная ссылка]
38. Шао, Ю.; Ли, К.; Сюй, В.; Чжан, П.; Чжан, В.; Чжао, X. miR-31 связывает липидный метаболизм и апоптоз клеток у зараженных бактериями Apostichopus japonicus посредством нацеливания на CTRP9. Передний. Иммунол. 2017, 8, 263. [CrossRef]
39. Го, М.; Ван, Ю.; Фу, Х.; Тао, В.; Li, C. circRNA1149 из Apostichopus japonicus подавляет апоптоз целомоцитов, действуя как миР-92губка, регулируя экспрессию Bax в ответ на инфекцию Vibrio splendidus. Аквакультура 2023, 562, 738812. [CrossRef]
40. Цзо, Х.; Венг, К.; Луо, М.; Ян, Л.; Венг, С.; Он, Дж.; Сюй, X. МикроРНК-1-опосредованное ингибирование пути NF-κB путем JAK-STAT у беспозвоночных Litopenaeus vannamei. Дж. Иммунол. 2020, 204, 2918–2930. [Перекрестная ссылка]
41. Ян, Х.; Сюй, З.; Го, Б.; Чжан, X.; Ляо, З.; Ци, П.; Ян, X. Комплексный анализ микроРНКома и транскриптома выявляет регуляцию сети микроРНК-мРНК у толстопанцирной мидии Mytilus coruscus, инфицированной Vibrio alginolyticus. Мол. Иммунол. 2021, 132, 217–226. [Перекрестная ссылка] [PubMed]
42. де Моралес, JMGR; Пуч, Л.; Дауден, Э.; Каньете, доктор медицинских наук; Паблос, Дж.Л.; Мартин, АО; Хуанатей, CG; Адан, А.; Монтальбан, X.; Борруэль, Н. Критическая роль интерлейкина (IL)-17 при воспалительных и иммунных нарушениях: обновленный обзор данных, посвященных противоречиям. Аутоиммун. Ред. 2020, 19, 102429. [CrossRef] [PubMed]
43. Кавагути, М.; Адачи, М.; Ода, Н.; Кокубу, Ф.; Хуанг, С.-К. Семейство цитокинов IL-17. Дж. Аллергическая клиника. Иммунол. 2004, 114, 1265–1273. [Перекрестная ссылка] [PubMed]
44. Старнс, Т.; Броксмейер, HE; Робертсон, MJ; Хромас, Р. Передовые технологии: IL-17D, новый член семейства IL-17, стимулирует выработку цитокинов и ингибирует гемопоэз. Дж. Иммунол. 2002, 169, 642–646. [Перекрестная ссылка] [PubMed]
45. Гаффен, С.Л.; Крамер, Дж. М.; Джеффри, JY; Шен, Ф. Семейство цитокинов IL-17. Витам. Горм. 2006, 74, 255–282. [ПабМед]
46. Робертс, С.; Геген, Ю.; де Лоржериль, Ж.; Гетц, Ф. Быстрое накопление транскрипта гомолога интерлейкина 17 в гемоцитах Crassostrea gigas после бактериального воздействия. Дев. Комп. Иммунол. 2008, 32, 1099–1104. [Перекрестная ссылка] [PubMed]
47. Ли, Дж.; Чжан, Ю.; Чжан, Ю.; Сян, З.; Тонг, Ю.; Цюй, Ф.; Ю, З. Геномная характеристика и анализ экспрессии пяти новых генов IL-17 у тихоокеанской устрицы Crassostrea gigas. Рыба Моллюски Иммунол. 2014, 40, 455–465. [Перекрестная ссылка]
48. Гаффен С.Л. Структура и передача сигналов в семействе рецепторов IL-17. Нат. Преподобный Иммунол. 2009, 9, 556–567. [Перекрестная ссылка]
49. Хата, К.; Андох, А.; Шимада, М.; Фуджино, С.; Бамба, С.; Араки, Ю.; Окуно, Т.; Фудзияма, Ю.; Бамба, Т. IL -17 стимулирует воспалительные реакции через пути NF-κB и MAP-киназы в миофибробластах толстой кишки человека. Являюсь. Дж. Физиол. -Гастроинтест. Физиол печени. 2002, 282, G1035–G1044. [Перекрестная ссылка]
50. Ниимото, Т.; Накаса, Т.; Исикава, М.; Окухара, А.; Идзуми, Б.; Дей, М.; Сузуки, О.; Адачи, Н.; Очи, М. МикроРНК-146a экспрессируется в Т-клетках, продуцирующих интерлейкин-17, у пациентов с ревматоидным артритом. БМК Опорно-двигательный аппарат. Разлад. 2010, 11, 1–11. [Перекрестная ссылка]
51. Шривастава, А.; Никамо, П.; Лохчароенкал, В.; Ли, Д.; Мейсген, Ф.; Ланден, Северная Каролина; Столе, М.; Пиварчи, А.; Сонколи, E. МикроРНК- 146a подавляет IL-17-опосредованное воспаление кожи и генетически связано с псориазом. Дж. Аллергическая клиника. Иммунол. 2017, 139, 550–561. [Перекрестная ссылка] [PubMed]
52. Чжао, С.; Ченг, Ю.; Ким, Дж.Г. МикроРНК-146a подавляет IL-17 и IL-35 и ингибирует пролиферацию стволовых клеток периодонтальной связки человека. Дж. Селл. Биохим. 2019, 120, 13861–13866. [Перекрестная ссылка] [PubMed]
53. Подсиад А.; Стэндифорд, Ти Джей; Баллинджер, Миннесота; Икин, Р.; Парк, П.; Кункель, СЛ; Мур, Б.Б.; Бхан, У. МикроРНК-155 регулирует иммунный ответ хозяина на поствирусную бактериальную пневмонию через путь IL-23/IL-17. Являюсь. Дж. Физиол. -Легочная клетка. Мол. Физиол. 2016, 310, Л465–Л475. [Перекрестная ссылка]
54. Ксаус, Дж.; Комалада, М.; Валледор, AF; Льоберас, Дж.; Лопес-Сориано, Ф.; Аргилес, Ж.М.; Богдан, К.; Селада, А. ЛПС индуцирует апоптоз макрофагов главным образом за счет аутокринной продукции TNF-. Блад Дж. Ам. Соц. Гематол. 2000, 95, 3823–3831.
55. Баннерман, Д.Д.; Голдблюм, С.Е. Механизмы бактериального липополисахарид-индуцированного апоптоза эндотелия. Являюсь. J. Physiol.-Lung Cell. Мол. Физиол. 2003, 284, Л899–Л914. [Перекрестная ссылка]
56. Латунь, Дм; Холлингсворт, JW; Чинкве, М.; Ли, З.; Поттс, Э.; Толоза, Э.; Фостер, В.М.; Шварц, Д.А. Хроническое вдыхание ЛПС вызывает эмфиземоподобные изменения в легких мышей, которые связаны с апоптозом. Являюсь. Дж. Респир. Клетка Мол. Биол. 2008, 39, 584–590. [Перекрестная ссылка]
57. Дракон, С.; Саффар, А.С.; Шан, Л.; Гунни, А.С. IL-17 ослабляет антиапоптотические эффекты GM-CSF в нейтрофилах человека. Мол. Иммунол. 2008, 45, 160–168. [Перекрестная ссылка] [PubMed]
58. Чжу, Ф.; Ван, К.; Го, К.; Ван, X.; Цао, X.; Ши, Ю.; Гао, Ф.; Ма, К.; Чжан, Л. IL-17 индуцирует апоптоз сосудистых эндотелиальных клеток - потенциальный механизм острого коронарного синдрома у человека. Клин. Иммунол. 2011, 141, 152–160. [Перекрестная ссылка]
59. Чанг, Ю.; Аль-Алван, Л.; Одюссо, С.; Чуяли, Ф.; Карлеваро-Фита, Дж.; Ивакура, Ю.; Баглол, CJ; Эйдельман, Д.Х.; Хамид, К. Генетическая делеция IL-17A уменьшает воспаление, вызванное сигаретным дымом, и апоптоз альвеолярных клеток II типа. Являюсь. Дж. Физиол. -Легочная клетка. Мол. Физиол. 2014, 306, Л132–Л143. [Перекрестная ссылка]
60. Хоу, В.; Джин, Ю.-Х.; Канг, HS; Ким, Б.С. Интерлейкин-6 (IL-6) и IL-17 синергически способствуют персистенции вируса, ингибируя клеточный апоптоз и функцию цитотоксических Т-клеток. Дж. Вирол. 2014, 88, 8479–8489. [Перекрестная ссылка]
61. Ван, К.; Ли, Д.; Хан, Ю.; Дин, X.; Сюй, Т.; Тан, Б. МикроРНК-146 защищает клетки A549 и H1975 от апоптоза, вызванного ЛПС, и воспалительного повреждения. Дж. Биоски. 2017, 42, 637–645. [Перекрестная ссылка] [PubMed]
62. Чен Ю.; Ву, З.; Юань, Б.; Донг, Ю.; Чжан, Л.; Зенг, З. МикроРНК-146a-5p ослабляет индуцированную облучением и ЛПС активацию звездчатых клеток печени и апоптоз гепатоцитов посредством ингибирования пути TLR4. Смерть клетки Дис. 2018, 9, 1–16. [Перекрестная ссылка] [PubMed]
63. Дин, Ю.; Ван, Л.; Чжао, К.; Ву, З.; Конг, Л. МикроРНК-93 ингибирует апоптоз и воспаление хондроцитов при остеоартрите, воздействуя на сигнальный путь TLR4/NF-κB. Межд. Дж. Мол. Мед. 2019, 43, 779–790. [Перекрестная ссылка]
64. Ван, Г.; Любой.; Тао, Дж.; Ван, Ю.; Чжоу, К.; Ян, Р.; Лян, К. МикроРНК-129-5p облегчает повреждение спинного мозга у мышей путем подавления апоптоза и воспалительной реакции по пути HMGB1/TLR4/NF-κB. Биология. Реп. 2020, 40, BSR20193315. [Перекрестная ссылка] [PubMed]
65. Ке, Х.-Ф.; Фанг, Дж.; У, Х.-Н.; Ю, Ч.-Х. МикроРНК-203 ускоряет апоптоз в стимулированных ЛПС альвеолярных эпителиальных клетках, нацеливаясь на PIK3CA. Биохим. Биофиз. Рез. Коммун. 2014, 450, 1297–1303. [Перекрестная ссылка] [PubMed]
66. Ци, П.; Тан, З. Молекула Nrf2 запускает антиоксидантную защиту от острого воздействия бензо(а)пирена в толстопанцирной мидии Mytilus coruscus. Акват Токсикол 2020, 226, 105554. [CrossRef]
67. Шмиттген, Т.Д.; Ливак, К.Дж. Анализ данных ПЦР в реальном времени методом сравнительной КТ. Нат. Протокол. 2008, 3, 1101–1108. [Перекрестная ссылка]