Экстракт листьев оливы (OLE) нарушает индуцированный вазопрессином трафик аквапорина-2 посредством активации рецептора, чувствительного к кальцию
Mar 25, 2022
Для получения дополнительной информации. контакт:tina.xiang@wecistanche.com
Вазопрессин (АВП) повышает водопроницаемостьпочечныйсобирательный канал через регуляцию транспорта аквапоринов-2 (AQP2). Некоторые расстройства, в том числе артериальная гипертензия и неадекватная секреция антидиуретического гормона (СНАДГ), связаны с нарушениями водного гомеостаза. Было показано, что некоторые фитосоединения полезны для здоровья человека. Здесь эффекты экстракта листьев оливы (OLE) были оценены с использованием моделей in vitro и in vivo. Конфокальные исследования показали, что OLE предотвращает индуцированную вазопрессином транслокацию AQP2 на плазматическую мембрану в клетках MCD4 и крысах.почки. Инкубация с OLE снижает AVP-зависимое увеличение коэффициента осмотической водопроницаемости (Pf). Чтобы выяснить возможные эффекторы OLE, оценивали внутриклеточный кальций. OLE увеличивает внутриклеточный кальций за счет активации рецептора, чувствительного к кальцию (CaSR). NPS2143. , селективный ингибитор CaSR, устранял ингибирующий эффект OLE на AVP-зависимую водопроницаемость. Эксперименты in vivo показали, что обработка OLE увеличивает экспрессию мРНК CaSR и снижает мРНК AQP2 параллельно с увеличением AQP 2-миРНК-137. В совокупности эти данные свидетельствуют о том, что OLE противодействует действию вазопрессина посредством стимуляции CaSR, что указывает на то, что этот экстракт может быть полезен для ослабления нарушений, характеризующихся аномальной передачей сигналов CaSR и влияющих на реабсорбцию воды в почках.
Листья оливкового дерева широко использовались в качестве традиционных средств для лечения ряда заболеваний, особенно в странах Средиземноморья. Листья обычно употребляются в пищу человеком в виде экстракта или порошка для приготовления настоев или травяного чая. Анализ химических характеристик показал, что листья оливкового дерева содержат несколько биологически активных соединений, которые могут оказывать благотворное влияние при определенных заболеваниях, таких как метаболический синдром, дислипидемия и гипертония. У пациентов с эссенциальной гипертензией OLE снижает артериальное давление и немного снижает гликемию и кальциемию. Было обнаружено, что многочисленные полифенолы, такие как олеуропеин, гидрокситирозол и тирозол, обогащены экстрактом листьев зеленой оливы (OLE)5, и известно, что они участвуют в профилактике некоторых заболеваний, характеризующихся окислительным стрессом. Таким образом, в последние несколько лет среди ученых, занимающихся различными областями исследований, возрастает интерес к изучению потенциальных полезных эффектов экстракта листьев оливы. типа Са2 плюс каналы. Интересно, что OLE оказывает антигипертензивное действие на генетическую гипертензию у крыс со спонтанной гипертензией (SHR), связанное с улучшением сосудистой функции*. Чрезмерная реабсорбция воды играет важную роль в патогенезе повышения артериального давления. У пациентов с артериальной гипертензией, получавших экстракт листьев оливы, было обнаружено значительное снижение ряда воспалительных факторов, связанных со снижением артериального давления. Кроме того, чрезмерная задержка воды характерна для ряда заболеваний, таких как цирроз печени, сердечная недостаточность и неадекватная секреция антидиуретического гормона (СНАДГ). Гомеостаз воды в организме жестко контролируется антидиуретическим гормоном вазопрессином (АВП), который высвобождается в условиях обезвоживания. AVP связывает свой родственный рецептор V2R, локализованный на базолатеральной мембранепочечныйосновные клетки, тем самым активируя сигнальный путь цАМФ, что приводит к перемещению везикул, несущих аквапорин-2(AQP2), из внутриклеточного пула на апикальную плазматическую мембрану, где происходит реабсорбция воды. На молекулярном уровне несколько факторов могут модулировать водный баланс почек. Повышенный уровень кальция в просвете просвета подавляет кратковременную вазопрессин-зависимую транспортировку AOP2 посредством активации рецептора, чувствительного к кальцию (CaSR)1,12. С другой стороны, активация CaSR в условно иммортализованных эпителиальных клетках проксимальных канальцев почек, выделенных из мочи человека, индуцировала значительное увеличение цитозольного кальция и значительно снижала увеличение цАМФ, вызванное форсколином (ФК), прямым активатором аденилатциклазы3. , в клетках MCD4 собирательных трубочек почек, стабильно экспрессирующих водный канал AOP2, стимуляция CaSR ослабляла цАМФ-зависимое увеличение фосфорилирования AQP2 по серину 256, что является ключевым событием в каскаде передачи сигнала, активируемым вазопрессином, и что в конечном итоге увеличивает проницаемость для воды 4 ,15 Кроме того, впочкасрезов внутреннего мозгового вещества почки мыши, активация CaSR с помощью кальцимиметика NPS-R568 вызвала значительное увеличение AQP2-миРНК-137, подтверждая тесное взаимодействие между сигнальным путем CaSR и AQP{ {4}}зависимая водопроницаемостьl.17. В настоящем исследовании оценивали влияние экстракта листьев оливы, полученного из местного сорта Coratina, на индуцированную вазопрессином функцию AQP2 в клетках MCD4 собирательных трубочек почек, стабильно экспрессирующих AOP2, и в dDAVP обработанным крысам инъецировали экстракт. Мы предоставляем доказательства того, что лечение OLE противодействует ответу вазопрессина в почечных клетках, что может частично объяснить его мочегонный эффект. Интересно, что этот эффект, по-видимому, связан с вызванной OLE активацией CaSR, рецептора, который, как известно, имеет негативное взаимодействие с рецептором вазопрессина12.
Узнайте больше о влиянии цистанхе на почки
Полученные результаты
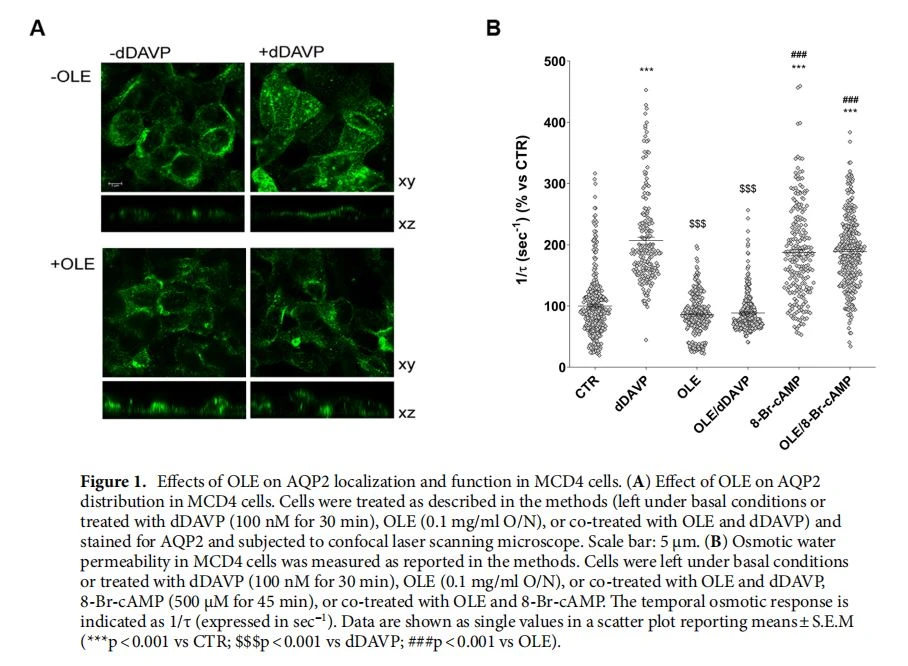
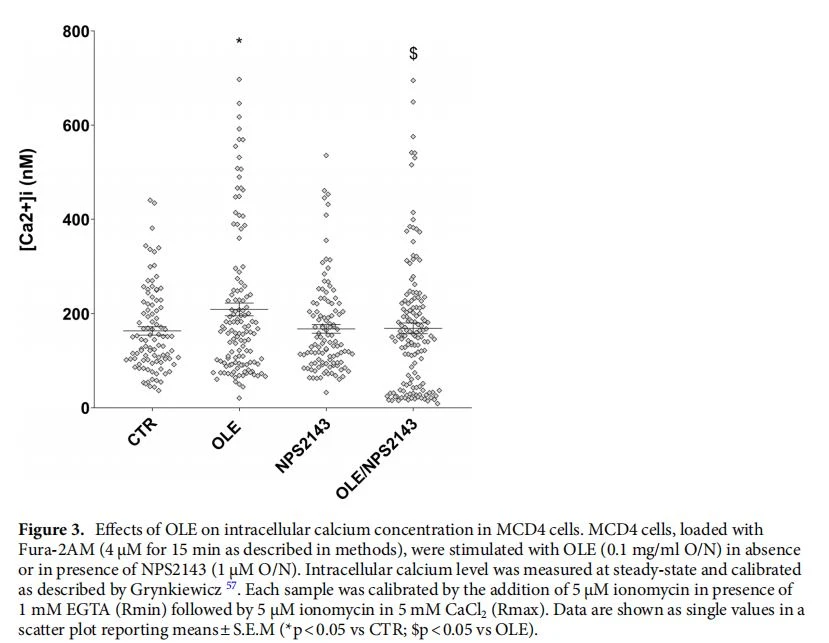
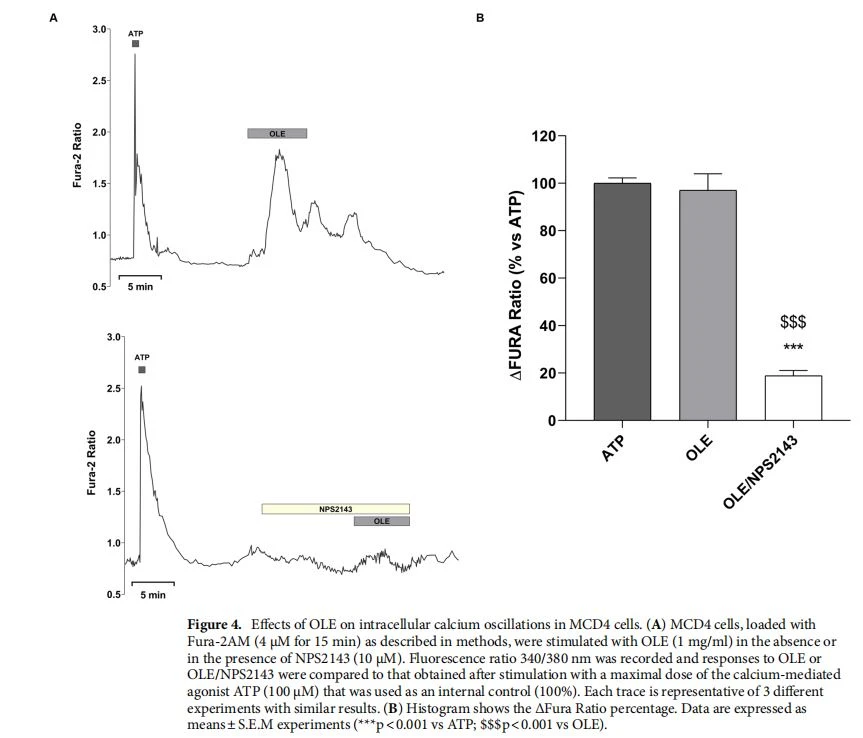
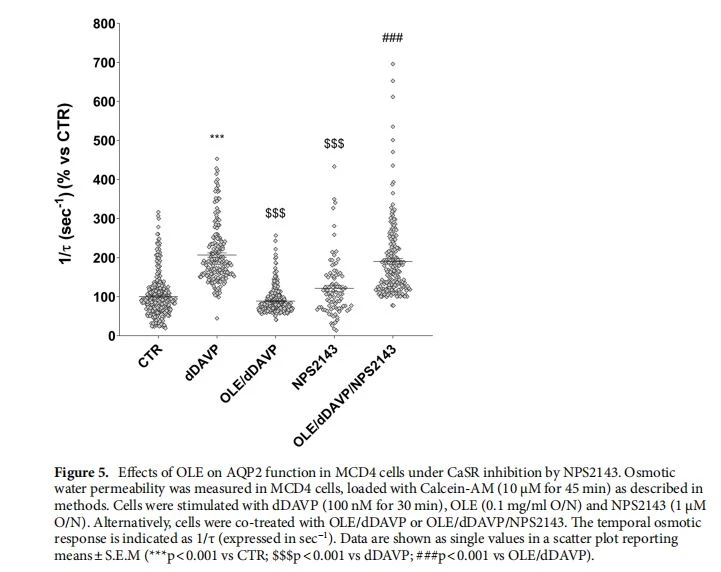
Влияние OLE на индуцированную вазопрессином функцию AQP2 в клетках MCD4. Чтобы исследовать возможное участие OLE в вазопрессин-зависимой функции AQP2,почечныйВ качестве экспериментальной модели использовали клетки MCD4 собирательных протоков, стабильно экспрессирующие рецептор вазопрессина 2 (V2R) и AQP2 человека. Конфокальные исследования (рис. 1А) показали, что по сравнению с обработанными dDAVP клетками, в которых окрашивание AQP2 локализовано на апикальной плазматической мембране, обработка OLE предотвращала локализацию AOP2 в мембране, индуцированную стимуляцией dDAVP. В соответствии с этими наблюдениями лечение OLE нарушало индуцированное dDAVP увеличение временного осмотического ответа (обозначено как 1/t на рис. 1B) (OLE/dDAVP=88,70±1,86 процента, n=292 клеток по сравнению с dDAVP=206,8±5,49%, n=186 клеток;p<0.001).altogether these="" findings="" suggested="" that="" treatment="" with="" ole="" reduced="" principal="" cell="" permeability="" by="" preventing="" aqp2="" translocation="" from="" an="" intracellular="" vesicle="" pool="" to="" the="" apical="" plasma="" membrane.="" vasopressin-induced="" aop2="" trafficking="" is="" controlled="" by="" intracellular="" camp="" which="" stimulated="" the="" camp-dependent="" kinase="" (pka)1.="" further,="" to="" evaluate="" the="" functionality="" of="" the="" v2r="" in="" the="" presence="" of="" ole="" in="" terms="" of="" camp="" production,="" permeable="" 8-br-camp="" was="" used="" as="" an="" external="" source="" of="" camp.="" treatment="" with="" 8-br-camp="" abolished="" the="" inhibitory="" effect="" elicited="" by="" ole="" on="" osmotic="" water="" permeability(ole/8-br-camp="188.7±3.56%,n=293" cells="" vs="" ole="85.93±2.27%," n="238"><0.001).therefore, to="" evaluate="" whether="" treatment="" with="" ole="" regulates="" aqp2="" trafficking="" by="" fine-tuning="" intracellular="" camp="" level,="" fluorescence="" resonance="" energy="" transfer(fret)technology="" was="" applied.="" compared="" to="" untreated="" cells="" (ctr),="" normalized="" netfret="" signals="" are="" reduced="" with="" ddavp="" stimulation(ddavp="77.86±3.13%," n="173" cells="" vs="" ctr="100.00±3.56%,n=276" cells;=""><0.00l; fig.2a),consistent="" with="" a="" significant="" increase="" of="" intracellular="" camp.="" conversely,="" treatment="" with="" ole="" prevented="" the="" ddavp="" dependent="" decrease="" of="" netfront="" signals="" consistent="" with="" a="" decrease="" of="" the="" vasopressin="" dependent="" camp="" release="" (ole/ddavp="92.97±3.46%," n="211" cells="" vs="" ddavp="77.86±3.13%," n="173" cells;=""><0.05; fig.2a).treatment="" with="" ole="" alone="" did="" not="" affect="" the="" intracellular="" cgmp="" level="" compared="" with="" cells="" left="" under="" basal="" conditions(ole="96.15±3.80%," n="184" cells="" vs="" ctr="100.00±3.56%,n=276" cells;=""><0.05).besides, western="" blotting="" studies(fig.2b)revealed="" that="" treatment="" with="" ole="" significantly="" reduced="" the="" ddavp="" induced="" increase="" of="" aqp2="" phosphorylation="" at="" serine="" 256(aqp2-ps256),="" indicating="" that="" aqp2="" phosphorylation="" and="" trafficking,="" in="" response="" to="" ole,="" are="" dependent="" on="" camp-pka="" function.="" the="" phosphorylation="" level="" of="" aqp2-ps256="" in="" response="" to="" ole="" was="" not="" statistically="" different="" from="" the="" control="" even="" though="" it="" tended="" to="" be="" reduced.="" to="" gain="" insight="" into="" the="" molecular="" signals="" underlying="" the="" action="" of="" ole,="" intracellular="" calcium="" dynamics="" were="" evaluated.="" mcd4="" cells="" endogenously="" express="" a="" functional="" calcium-sensing-receptor(casr)20,="" which="" plays="" an="" important="" role="" in="" controlling="" aqp2="" expression="" and="" trafficking'4.long="" term="" incubation="" with="" ole(0.1="" mg/ml)slightly="" increased="" the="" intracellular="" calcium="" level="" compared="" with="" untreated="" cells(fig.3;="" ole="209.0±13.45" nm,n="128" cells="" ys="" ctr="163.3±8.957" nm,n="97cells:"><0.05).co-incubation with="" ole(0.1="" mg/ml)="" and="" the="" selective="" nps2143(1um)antagonist="" of="" the="" casr="" abolished="" the="" ole="" induced="" intracellular="" calcium="" mobilization(ole/nps2143="168.8±11.43" nm,n="144" cells="" ys="" ole="209.0+13.45" nm.="" n="128"><0.05).to dissect="" further="" intracellular="" calcium="" signals="" in="" response="" to="" ole,="" functional="" experiments="" were="" also="" performed="" under="" acute="" stimulation="" with="" ole="" and="" nps2143.="" short-term="" treatment="" with="" ole="" (1="" mg/ml)="" evoked="" specific="" calcium="" oscillations(fig.4a)="" that="" were="" prevented="" when="" cells="" were="" pretreated="" with="" the="" selective="" casr="" inhibitor="" nps2143(10="" μm).="" statistical="" analysis="" of="" the="" fluorescence="" responses(fig.="" 4b)revealed="" that="" incubation="" with="" ole="" increased="" cytosolic="" calcium="" by="" 97.06±6.93%(vs="" atp="" 100.00±2.28%).pretreatment="" with="" nps2143="" reduced="" the="" ole="" induced="" intracellular="" calcium="" increase(ole/nps2143="18.87±2.17%,n=59" cells="" vs="" ole="97.06±6.93%," n="50" cell;=""><0.001).to deeper="" investigate="" whether="" the="" effect="" of="" ole="" on="" avp-dependent="" water="" reabsorption="" occurred="" through="" the="" activation="" of="" the="" casr="" signaling,="" functional="" studies="" were="" performed="" as="" previously="" shown="" (fig.1b).="" interestingly,="" treatment="" with="" nps2143="" abolished="" the="" inhibitory="" effect="" of="" ole="" on="" avp-regulated="" osmotic="" water="" permeability="" (fig.5;="" ole/ddavp/nps2143="190.4±7.15%," n="191 cells" vs="" ole/ddavp="88.70±1.86%,n=292"><0.001), suggesting="" that="" treatment="" with="" ole="" attenuated="" the="" avp-dependent="" water="" reabsorption="" through="" the="" activation="" of="" the="" casr="" signaling.="" compared="" to="" untreated="" cells,="" treatment="" with="" only="" nps2143="" did="" not="" affect="" the="" osmotic="" water="" permeability="" (fig.="">
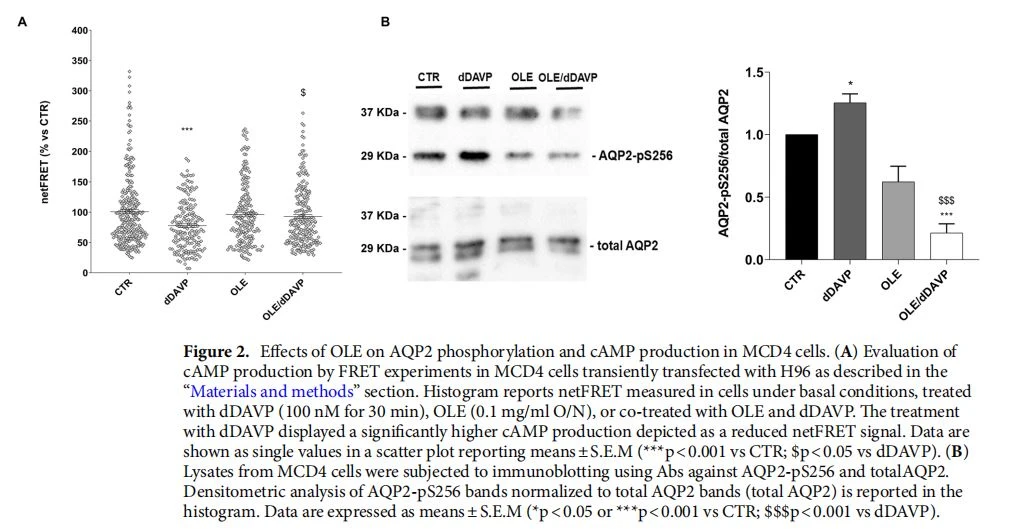 <0.001 vs="" ctr;=""><0.05 vs="" ddavp).="" (b)="" lysates="" from="" mcd4="" cells="" were="" subjected="" to="" immunoblotting="" using="" abs="" against="" aqp2-ps256="" and="" totalaqp2.="" densitometric="" analysis="" of="" aqp2-ps256="" bands="" normalized="" to="" total="" aqp2="" bands="" (total="" aqp2)="" is="" reported="" in="" the="" histogram.="" data="" are="" expressed="" as="" means±s.e.m=""><0.05 or=""><0.001 vs="" ctr;=""><0.001 vs="" ddavp)."="" alt="Figure 2. Efects of OLE on AQP2 phosphorylation and cAMP production in MCD4 cells. (A) Evaluation of cAMP production by FRET experiments in MCD4 cells transiently transfected with H96 as described in the " materials="" and="" methods"="" section.="" histogram="" reports="" netfret="" measured="" in="" cells="" under="" basal="" conditions,="" treated="" with="" ddavp="" (100 nm="" for="" 30 min),="" ole="" (0.1 mg/ml="" o/n),="" or="" co-treated="" with="" ole="" and="" ddavp.="" te="" treatment="" with="" ddavp="" displayed="" a="" signifcantly="" higher="" camp="" production="" depicted="" as="" a="" reduced="" netfret="" signal.="" data="" are="" shown="" as="" single="" values="" in="" a="" scatter="" plot="" reporting="" means±s.e.m=""><0.001 vs="" ctr;=""><0.05 vs="" ddavp).="" (b)="" lysates="" from="" mcd4="" cells="" were="" subjected="" to="" immunoblotting="" using="" abs="" against="" aqp2-ps256="" and="" totalaqp2.="" densitometric="" analysis="" of="" aqp2-ps256="" bands="" normalized="" to="" total="" aqp2="" bands="" (total="" aqp2)="" is="" reported="" in="" the="" histogram.="" data="" are="" expressed="" as="" means±s.e.m=""><0.05 or=""><0.001 vs="" ctr;=""><0.001 vs="" ddavp)."="" width="480" height="320" border="0" vspace="0" style="width: 480px; height: 320px;">
Эффекты OLE в почках крыс, которым вводили OLE.
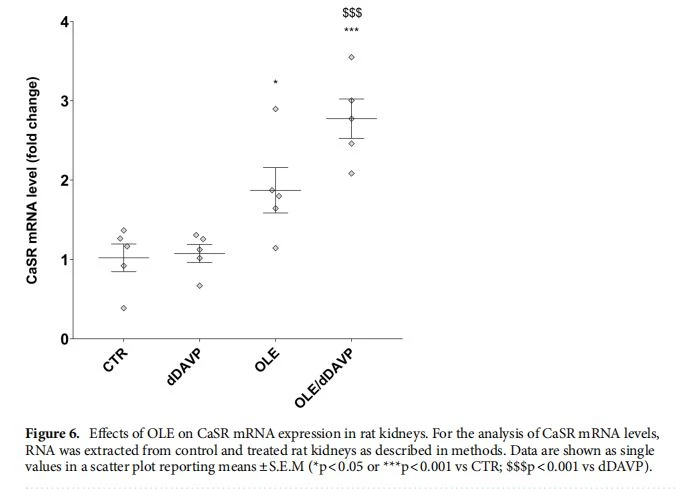
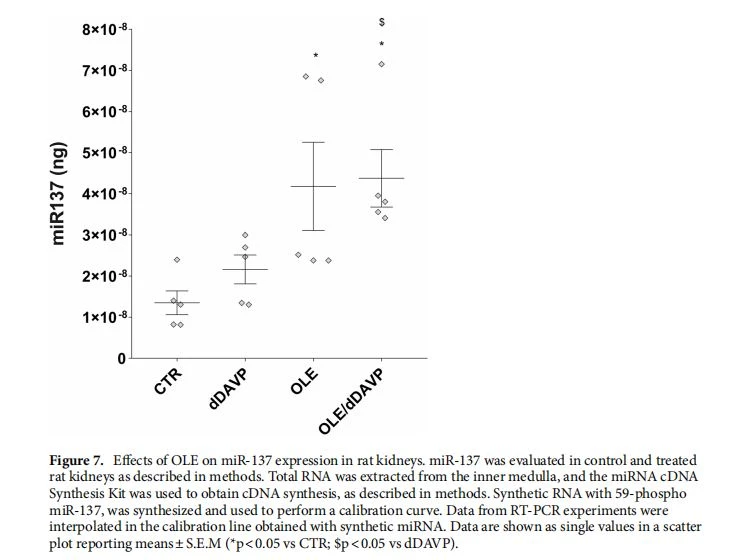
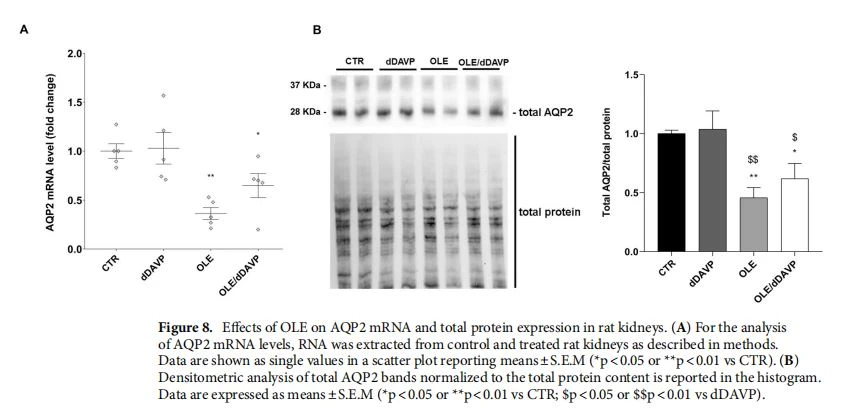
Для дальнейшего изучения действия OLE были проведены исследования in vivo. В частности, крысам вводили OLE (25{8}} мг/кг/день) один раз в день в течение трех дней. В качестве альтернативы крыс одновременно лечили OLE в течение 3 дней и dDAVP в течение 3 0 мин. Оценка мРНК CaSR, выделенной из собирательных трубочек почек крыс и обработанной для ПЦР в реальном времени (рис. 6), выявила значительное увеличение мРНК CaSR при OLE(OLE=1.87±0,29, n{{ 10}} крыс против CTR=1,02±0,17, n=5 крыс; p<0.05) and="" ole/ddavp(ole/ddavp="2.77±0.25," n="5" rats="" vs="" ctr="1.02±0.17,n=5" rats="" and="" ddavp="1.08±0.11," n="5" rats;=""><0.001)injected rats="" compared="" with="" control="" and="" ddavp="" animals,="" casr="" signaling="" can="" regulate="" the="" expression="" level="" of="" selective="" mirnas,="" which="" downregulated="" the="" expression="" level="" of="" aqp216.based="" on="" these="" findings,="" and="" considering="" that="" treatment="" with="" ole="" attenuated="" aqp2="" function,="" the="" level="" of="" mir-137,="" a="" known="" aqp2-targeting="" mir="" in="" the="" renal="" collecting="" duct,="" was="" evaluated.="" compared="" to="" control="" rats="" (fig.7),="" the="" level="" of="" mir-137="" in="" the="" renal="" collecting="" ducts="" of="" ole(ole="4.18.10-8±1.07.10-8ng,n=5" rats="" vs="" ctr="1.35.10-8±2.89.10-ng," n="5" rats;=""><0.05)and ole/ddavp="" rats="" was="" increased="" indicating="" that="" treatment="" with="" ole="" upregulates="" the="" casr="" signaling="" and="" the="" expression="" level="" of="" the="" mir-137(ole/ddavp="4.38.10-8±47.01·10-9ng," n="5" rats="" vs="" ctr="1.35.10-8±2.89.10-ng," n="5" rats;=""><0.01 and="" vs="" ddavp="2.1610-8±3.52.10-°ng," n="5"><0.05). to="" verify="" whether="" the="" increase="" of="" mir-137="" affected="" the="" expression="" level="" of="" aqp2,="" renal="" samples="" were="" processed="" for="" real-time="" pcr.="" data(fig.8a)revealed="" that="" the="" expression="" levels="" of="" aqp2="" mrna="" were="" lower="" in="" ole(ole="0.36±0.06,n=5" rats="" vs="" ctr="1.00±0.08," n="5"><0.01)and ole/ddavp(ole/ddavp="0.65±0.12," n="5" rats="" vs="" ctr="1.00±0.08," n="5" rats="" and="" ddavp="1.03±0.16,n=5" rats;=""><0.05)renal samples="" compared="" with="" specimens="" obtained="" from="" control="" animals.="" besides,="" western="" blotting="" analysis(fig.="" 8b)showed="" that="" treatment="" with="" ole="" reduced="" the="" abundance="" of="" aop2="" regardless="" of="" ddavp="" stimulation(ole/ddavp="0.62±0.13,n=5" rats="" vs="" ddavp="1.04±0.16,n=5"><0.05)indicating that="" the="" ole-induced="" reduction="" of="" aqp2="" mrna="" expression="" level="" coincided="" with="" a="" decrease="" of="" aqp2="" protein="" content.="" to="" evaluate="" the="" effect="" of="" ole="" on="" aqp2="" phosphorylation="" and="" trafficking="" in="">почка, вестерн-блоттинг и конфокальные исследования (рис. 9). У крыс, которым вводили OLE/dDAVP, фосфорилирование AQP2 по серину 256 было значительно снижено по сравнению с почечными тканями животных, получавших dDAVP (OLE/dDAVP =0. 77±0,16, n=5 крыс по сравнению с dDAVP=2,16±0,25,n=5 крыс; p<0.001,fig.9a),thereby confirming="" the="" in="" vitro="" findings(fig.2b).="" besides,="" confocal="" studies="" (fig.9b)="" of="" kidney="" sections="" revealed="" that="" exposure="" to="" ole="" prevented="" the="" aop2="" mem-brane="" localization="" that="" instead="" was="" observed="" in="" ddavp="" treated="">
Обсуждение
Кальций является важным внутриклеточным мессенджером, который модулирует множество клеточных функций2. Аномальная передача сигналов кальция может привести к ряду заболеваний, включая сердечную недостаточность, рак и гипертонию23. Было доказано, что специфический контроль экспрессии и активности белков, контролирующих множественные внутриклеточные кальциевые сигналы, успешно справляется с многочисленными расстройствами и, следовательно, является привлекательным для разработки лекарств. Это исследование дает новое представление о механизме действия OLE, демонстрируя его способность модулировать внутриклеточную передачу сигналов кальция посредством стимуляции CaSR, который участвует в тонкой настройке индуцированного вазопрессином переноса и экспрессии AQP2. В физиологических условиях AQP2 играет важную роль в контроле водного гомеостаза организма25. Стимуляция внутриклеточного механизма, приводящая к локализации AQP2 на апикальной плазматической мембране, приводит к аномальной задержке воды и последующей гипонатриемии, как при синдроме неадекватной секреции антидиуретического гормона (SIADH), циррозе печени и застойной сердечной недостаточности. У мыши модели SIADH, связанной с поликистозной болезнью почек 1 гаплонедостаточности, базальный внутриклеточный уровень кальция был значительно снижен по сравнению с уровнем, измеренным в собирательных трубочках мышей дикого типа. Низкий уровень внутриклеточного кальция снижает активность некоторых ферментов, включая протеинфосфатазу PP2A, что приводит к усилению фосфорилирования AOP2 по серину 2561. Напротив. активация CaSR кальцимиметиком NPS-R568 повышала концентрацию внутриклеточного кальция и снижала уровень цАМФ в клетках с дефицитом PKD1. Важно отметить, что цитозольный кальций может подавлять ингибируемую кальцием аденилатциклазу3, тем самым точно регулируя внутриклеточный уровень цАМФ. cyclase4. В этом исследовании лечение OLE предотвратило вазопрессин-зависимое повышение цАМФ и AOP2-pS256, возможно, вторичное по отношению к увеличению внутриклеточной концентрации кальция. Следует отметить, что воздействие внешнего источника цАМФ с использованием проницаемого 8-Br-цАМФ значительно противодействовало ингибирующему эффекту OLE на путь V2R.
Повышенный уровень цитозольного кальция может привести к гибели клеток и апоптозу. Однако устойчивое увеличение внутриклеточного кальция с 250 нМ до более чем 600 нМ способствовало выживанию нейронов4. В клетках MCD4 обработка OLE в концентрации 0,1 мг/мл не проявляла цитотоксический эффект. В этой концентрации ОЛЭ (0,1 мг/мл) несколько повышал уровень внутриклеточного кальция. Визуализация кальция показала, что острая стимуляция с помощью OLE вызывает временное увеличение внутриклеточного кальция за счет активации CaSR, которая исчезает, когда клетки предварительно инкубируют с селективным антагонистом CaSR NPS2143. В клетках проксимальных канальцев почек аллостерическая активация CaSR с I-орнитином. снижают продукцию АФК, тем самым подавляя митохондриальный окислительный стресс, вызывающий клеточный апоптоз356. Более того, наше предыдущее исследование показало, что экспрессия вариантов CaSR с усилением функции снижает высвобождение АФК и S-глутатионилирование AQP237. Инкубация с OLE снижала образование АФК в клетках MCD435, демонстрируя его антиоксидантную способность. Тем не менее, на данный момент неясно, влияет ли OLE на АОП2-S-глутатионилирование. Многочисленные исследования показали, что OLE или олеуропеин, который является основным компонентом OLE, могут играть защитную роль, подавляя гибель клеток39. Однако у крыс, получавших OLE, были описаны дозозависимые эффекты. Благоприятные ответы были получены при дозах 250 и 500 мг/кг. Напротив, при более высоких концентрациях обработка OLE может иметь вредные последствия, возможно, из-за прооксидантного действия некоторых фитосоединений. В этом исследовании крысам вводили OLE в дозе 250 мг/кг в течение трех дней, что показало активацию CaSR. Уровень экспрессии CaSR повышают некоторые соединения, действующие как аллостерические активаторы рецептора. Кальцимиметики действительно уменьшали кальцификацию сосудов за счет увеличения биосинтеза CaSR в клетках гладкой мускулатуры сосудов человека0. В этом споре нельзя исключить возможность того, что некоторые соединения в OLE могут функционировать как аллостерические модуляторы CaSR. С другой стороны, стимуляция вазопрессином может приводить к высвобождению IL-6, что может способствовать повышению уровня экспрессии CaSR42.
В почках стимуляция передачи сигналов CaSR связана с подавлением экспрессии AQP2, возможно, посредством генерации miR-137. miRNAs являются ключевыми посттранскрипционными модуляторами. Также описано несколько vasopressin-зависимых miRNAs, нацеленных на экспрессию AQP243. Трансфекция miR-32 и miR-137 значительно снижала уровень экспрессии AOP2 в клетках mpkCCDc14. Интересно, что OLE может ослаблять воспалительные сигналы и оказывать защитное действие, модулируя уровень экспрессии нескольких миРНК». сигнальный путь Akt/mTOR 46. Следует отметить, что лечение олеуропеином предотвращает передачу сигналов Akt/mTOR посредством активации индуцированных кальцием CAMK и AMPK». Активация CaSR с помощью NPS-R568 активирует AMPK и снижает активность mTOR в клетках проксимальных канальцев человека3. В соответствии с этими выводами, инкубация с OLE увеличивает цитозольный кальций, подавляет активность PKA и уменьшает размер кисты в 3D-модели клеточной культуры48. В совокупности эти данные свидетельствуют о том, что OLE может быть полезен при лечении расстройств, характеризующихся нарушением регуляции внутриклеточной динамики кальция, связанной с подавлением передачи сигналов CaSR.
Экстракт листьев оливы состоит из нескольких биологически активных компонентов, включая полифенолы, клетчатку и минералы49. На данный момент неясно, могут ли одно соединение или синергетическая комбинация фитосоединений в OLE быть полезными для модулирования внутриклеточных ответов. Экстракт, использованный в этом исследовании, применялся в качестве возможной пищевой добавки, и поэтому важно определить физиологическое воздействие самого экстракта, учитывая, что некоторые фенолы, включая гидрокситирозол, могут фильтроваться почками и выделяться с мочой50. Дальнейшие исследования продемонстрируют эффективность конкретных компонентов, которые могут активно регулировать внутриклеточную передачу сигналов кальция через CaSR. В заключение, это исследование предоставляет доказательства того, что OLE может считаться новым потенциальным адъювантом, полезным для смягчения нарушений, характеризующихся снижением экспрессии CaSR, а также передачей сигналов и влиянием на проницаемость почечной воды.
материалы и методы
Химические вещества и антитела.Все химикаты и антибиотики были приобретены у Merck (Merck KGaA, Дармштадт, Германия). Calcein-AM, Fura-2-AM, среда для культивирования клеток, фетальная телячья сыворотка (FBS) и хемилюминесцентные субстраты Super Signal West Pico были приобретены у компании Thermo Fisher Scientific (Thermo Fisher Scientific, Уолтем, Массачусетс, США). Аквапорин{ {2}}(AQP2) выявляли с использованием специфических антител (C-хвост Ab), выработанных против синтетического пептида, соответствующего последним 15 C-концевым аминокислотам AQP2 человека!. Антитела AQP2-pS256 были любезно предоставлены профессором Питером Дином. Вторичные козьи антикроличьи антитела, связанные с пероксидазой хрена, были получены от Merck (Merck KGaA, Дармштадт, Германия). Вторичное козье антикроличье антитело, связанное с Alexa-488, было приобретено у Thermo Fisher Scientific (Thermo Fisher Scientific, Уолтем, Массачусетс, США).
Производство экстрактов, богатых фенолами, и их химическая характеристика.Получение богатого фенолом экстракта из листьев оливы осуществлялось, как описано в Ranieri et al.35. После измельчения с помощью блендера (Waring-Commercial, Торрингтон, Коннектикут, США) добавляли воду ddH2O (соотношение 1/20, вес/год), а затем трижды подвергали воздействию ультразвука (CEIA, Вичиомаджио, Италия). , в течение 30 мин при 35 ± 5 градусов каждый раз. Наконец, экстракты фильтровали через фильтровальную бумагу, лиофилизировали и хранили при -20 градусах С. Полученные экстракты фильтровали с нейлоновыми фильтрами 0,45 мкм (Merck KGaA, Дармштадт, Германия) и использовали для химической характеристики. Общее содержание фенолов, антиоксидантную активность и идентификацию отдельных фенольных соединений проводили в соответствии с Difonzo et al. OLE показал содержание полифенолов, определенное по Folin-Ciocalteu, равное 195 мг. эквиваленты галловой кислоты (GAE) и антиоксидантная активность, определяемая ABTS (2,2'-азино-бис(3-этилбензотиазолин-6-диаммониевая соль сульфоновой кислоты), что составляет 750 мкмоль TE (эквиваленты Trolox) .
Культура клеток и лечение.Клетки MCD4 кортикального отдела собирательных трубочек мыши, стабильно экспрессирующие AQP2 человека и химерный V2R-Rluc, использовали в качестве экспериментальной модели18. Клетки выращивали в смеси 1:1 модифицированной Dalbec-cos среды Игла и F-12 с добавлением 5% (г/г) эмбриональной бычьей сыворотки. 1 процент (г/г) L-глютамина и 1 процент пенициллина/стрептомицина, 5 мкМ дексаметазона, 400 мкг/мл G418 (для устойчивости к AQP2) и 1 мкг/мл пуромицина (для устойчивости к V2R-Rluc) , во влажной атмосфере 5% CO, при 37 град. Клетки MCD4 оставляли в исходном состоянии (CTR) или длительно обрабатывали OLE при 0,1 мг/мл O/N, dDAVP при 100 нМ в течение 30 минут или совместно обрабатывали OLE и dDAVP или NPS2143 при 1 мкM O/N. В качестве альтернативы клетки подвергали воздействию 8-Br-цАМФ при 500 мкМ в течение 45 минут. Кратковременные эксперименты проводились с OLE при 1 мг/мл в течение 5 минут и NPS2143 при 10 мкМ в течение 15 минут. Эксперименты проводились 3-5 раз независимо с использованием клеток из разных пассажей.
Животная модель и лечение.Все процедуры проводились в соответствии с Датскими национальными рекомендациями по уходу и обращению с экспериментальными животными и опубликованными рекомендациями Национального института здравоохранения. Протоколы были одобрены Институтом клинической медицины. Орхусский университет, согласно лицензии на использование экспериментальных животных, выданной Министерством юстиции Дании (номер разрешения 2015-15-0201-00658). Исследования проводили на половозрелых крысах-самцах линии Вистар с исходной массой 200-225 г. Животные содержались на стандартной диете для грызунов (Altromin, Lage, Germany) и имели свободный доступ к водопроводной воде. Во время экспериментов крыс содержали группами по две в клетке с циклом свет-темнота 12:12, температурой 21±2°С и влажностью 55±2%. Пяти крысам вводили подкожно 1 нг dDAVP (Sigma-Aldrich, Glostrup, Дания) в 200 мкл физиологического раствора на животное, и пять крыс, получавших носитель, служили контролем. Через 30 мин крыс забивали, а почки обрабатывали, как описано ниже.
Клетки и лизаты IMCD.Клетки выращивали на чашках {{0}} мм и ресуспендировали в буфере, содержащем 220 мМ маннита, 70 мМ сахарозы, {{10}}. 5 М ЭГТА рН 8,0, 0,5 М ЭДТА рН 8,0, 1 М Трис-HCl рН 7,4 в присутствии протеаз (1 мМ ФМСФ, 2 мг/мл лейпептина и 2 мг/мл пепстатина А) и фосфатаз (10 мМ NaF и 1 мМ ортованадата натрия) ингибиторы. В качестве альтернативы готовили срезы почек размером примерно 0,5 мм и уравновешивали в течение 10 минут в буфере, содержащем 118 мМ NaCl, 16 мМ Hepes, 17 мМ Na-Hepes, 14 мМ глюкозы, 3,2 мМ KCl, 2,5 мМ CaCl2, 1,8 мМ MgSO4 и 1,8 мМ KH2PO4 (pH 7,4). Сосочки почек измельчали ножницами в том же буфере в присутствии протеаз (1 мМ PMSF, 2 мг/мл лейпептина и 2 мг/мл пепстатина А) и фосфатаз (10 мМ NaF и 1 мМ натрия ингибиторы ортованадата). После обработки ультразвуком (60 кГц в течение 5 с) лизаты центрифугировали при 12,000×g в течение 10 мин. Супернатанты собирали и использовали для иммуноблоттинга'8.
Конфокальная микроскопия.Конфокальные исследования проводились, как описано ранее1. Вкратце, клетки выращивали на вставках ПЭТ для клеточных культур и обрабатывали, как описано выше. Альтернативно, срезы почек, полученные от контрольных, OLE, dDAVP и OLE с обработанными dDAVP крыс, подвергали экспериментам по иммунофлуоресценции, как описано ранее. Изображения получали с помощью конфокального лазерно-сканирующего флуоресцентного микроскопа Leica TCS SP2 (Leica Microsystems, Heerbrugg, Швейцария). Гель-электрофорез и иммуноблоттинг. Белки разделяли на 12-процентных неокрашенных полиакриламидных гелях (Bio-Rad Laboratories, Inc., Геркулес, Калифорния, США) в условиях восстановления, как описано ранее=5,52. Вкратце, белковые полосы переносили на мембраны Immobilon-P (Merck KGaA, Дармштадт, Германия) и подвергали иммуноблотингу с использованием антител против AQP2 (Pre-C-tail Ab) и против AQP2-pS256. Иммунореактивные сигналы получали с использованием хемилюминесцентных субстратов Super Signal West Pico с системой Chemidoc (Bio-Rad Laboratories, Inc., Геркулес, Калифорния, США). Полосы нормализовали по общему белку с использованием технологии без окрашивания (Bio-Rad Laboratories, Inc., Геркулес, Калифорния, США). Денситометрический анализ проводили с помощью ImageLab (Bio-Rad Laboratories, Inc., Геркулес, Калифорния, США) и анализировали с помощью GraphPad Prism (GraphPad Software, Сан-Диего, Калифорния, США).
Анализ водопроницаемости.Осмотическую проницаемость для воды измеряли, как описано ранее43. Вкратце, клетки MCD4 выращивали на покровных стеклах 40- мм. После обработки клетки нагружали 10 мкМ мембранопроницаемого Calcein-AM в течение 45 минут при 37 градусах, 5% CO, в DMEM/F-12. Покровные стекла устанавливали в перфузионную камеру (FCS2 Closed Chamber System, BIOPTECHS, Батлер, США). Измерения проводили с использованием инвертированного микроскопа TE2000-S (микроскоп Nikon Eclipse, Токио, Япония), оборудованного для измерения флуоресценции одиночных клеток. и анализ изображения. Образцы, нагруженные Calcein-AM, возбуждались при 490 нм. Измерения флуоресценции после изоосмотических (140 мМ NaCl, 5 мМ KCl, 1 мМ MgCl, 1 мМ CaCl, 10 мМ Hepes сульфоновой кислоты, 5 мМ глюкозы, pH 7,4) или гиперосмотических (изоосмотический раствор с добавлением 135 мМ маннита) растворов. . проводили с использованием программного обеспечения Metafluor (Molecular Devices, MDS Analytical Technologies, Торонто, Канада). Регистрировали данные флуоресценции во времени после перфузии клеток изо- и гиперосмотическими растворами. Динамику усадки клеток во времени измеряли как постоянную времени (Ki, выраженную как 1/r, с), параметр, коррелирующий с водопроницаемостью, полученный путем сопоставления данных с экспоненциальной функцией, проанализированной с использованием GraphPad Prism (GraphPad Software, San Diego). , Калифорния, США).
Измерения переноса энергии флуоресцентного резонанса.Для оценки внутриклеточных изменений цАМФ применяли технологию переноса энергии флуоресцентного резонанса (FRET). Для экспериментов FRET клетки трансфицировали плазмидой, кодирующей сенсор H96, содержащий цАМФ-связывающий консенсусный мотив EPAC1, встроенный между голубым флуоресцентным белком (CFP) и cp173Venus-Venus, как показано ранее32.33.54. Плазмида, кодирующая зонд H96, была подарена доктором К. Ялинк. Визуализацию клеток, экспрессирующих ECFP и/или EYFP, и обнаружение FRET проводили с использованием инвертированного микроскопа TE2000-S (микроскоп Nikon Eclipse, Токио, Япония). Каждое изображение исправлялось и анализировалось, как показано ранее55.
Измерения внутриклеточного кальция. Измерения внутриклеточного кальция проводились, как показано ранее56. Вкратце, клетки MCD4 загружали 4 мкМ Fura-2 AM в течение 15 минут при 37 градусах в DMEM/F-12. Для перфузии клеток во время эксперимента использовали раствор Рингера, содержащий 140 мМ NaCl, 5 мМ KCl, 1 мМ MgCl, 10 мМ HEPES, 5 мМ глюкозы, 1,8 мМ CaCl, pH 7,4. При измерении флуоресценции покровные стекла с перегруженными клетками помещали в перфузионную камеру (FCS2 Closed Chamber System. BIOPTECHS. Butler, USA). Измерения проводили с помощью инвертированного микроскопа TE2000-S (микроскоп Nikon Eclipse, Токио, Япония). Отношение интенсивностей флуоресценции при 340 и 380 нм строили и рассчитывали как изменение флуоресценции. В частности, стимуляцию OLE (1 мг/мл) или NPS2143 (10 мкМ) сравнивали в клетках того же типа со стимуляцией, полученной после стимуляции максимальной дозой кальций-опосредованного агониста АТФ (100 мкМ), который использовался в качестве внутренний контроль (100 процентов).
Уровень внутриклеточного кальция измеряли в стационарном состоянии и калибровали, как описано Grynkiewicz57. OLE и NPS2143 использовали в течение длительного времени при 0,1 мг/мл и 1 мкМ соответственно, и каждый образец калибровали добавлением 5 мкМ иономицина в присутствии 1 мМ EGTA (Rm.), а затем 5 мкМ иономицина в 5 мМ CaCl (RMA).
ПЦР-анализ в реальном времени мРНК AQP2 и CaSR у контрольных и обработанных крыс.Эксперименты ПЦР в реальном времени были проведены для измерения относительной экспрессии мРНК во внутреннем собирательном канале мозгового вещества (IMCD), выделенном из контрольных и обработанных сосочков почек крыс. Срезы почек размером около 0,5 мм были приготовлены и уравновешены в течение 10 минут в буфере, содержащем 118 мМ NaCl, 16 мМ HEPES, 17 мМ Na-Hepes, 14 мМ глюкозы, 3,2 мМ KCl, 2,5 мМ CaCl2,1,8. мМ MgSO4 и 1,8 мМ KH2PO4 (pH 7,4). Почечный сосочек был выделен под стереомикроскопом. Затем образцы контрольных и обработанных крыс измельчали ножницами непосредственно в Тризоле (Thermo Fisher Scientific, Уолтем, Массачусетс, США). Обратная транскрипция выполнялась на 2,5 мкг тотальной РНК с использованием SuperScriptVilo Master Mix (Thermo Fisher Scientific, Уолтем, Массачусетс, США). США), в соответствии с рекомендациями производителя (25°С в течение 10 мин; 42°С в течение 60 мин; 85°С в течение 5 мин). Амплификацию ПЦР в реальном времени проводили с использованием TagMan Fast Advanced Master Mix с анализами CaSR, AOP2 и GAPDH (Thermo Fisher Scientific, Уолтем, Массачусетс, США) в системе ПЦР в реальном времени StepOne (Thermo Fisher Scientific, Уолтем, Массачусетс, США). ), установив условия термоциклирования, указанные производителем (95°C в течение 20 с; 40 циклов попеременно при 95°C в течение 1 с и 60°C в течение 20 с). Результаты были выражены как 2- значения (относительная количественная оценка) с △ACt=(Ct target-Ct GAPDH) обработанный-(Ct target-Ct GAPDH)Sham1.
оценка miRNA-137 у контрольных и обработанных крыс.Содержание миРНК{{0}} во внутреннем собирательном канале мозгового вещества контрольной и обработанной крыс оценивали с использованием расширенных анализов миРНК TagMan (has-miR-137; идентификатор анализа; 477904 mir; Thermo Fisher Scientific, Уолтем, Массачусетс). .US.A), что сделало возможным высокочувствительное и специфичное уведомление о зрелых миРНК с помощью количественной ПЦР. Были сделаны срезы почек толщиной около 0,5 мм и уравновешены в течение 10 минут в буфере, содержащем 118 мМ NaCl, 16 мМ HEPES, 17 мМ Na-Hepes, 14 мМ глюкозы, 3,2 мМ KCl, 2,5 мМ CaCl2, 1,8 мМ MgSO4 и 1,8 мМ. KH2PO4 (рН 7,4). Почечный сосочек выделяли под стереомикроскопом. Затем образцы контрольных и обработанных крыс измельчали ножницами непосредственно в тризоле (Thermo Fisher Scientific, Уолтем, Массачусетс, США) для выделения тотальной РНК. Набор TaqMan Advanced miRNA для синтеза кДНК (каталог n²∶A25576; Thermo Fisher Scientific, Уолтем, Массачусетс, США)использовали для получения синтеза кДНК в соответствии с протоколом, предоставленным производителем (реакция Poly(A)tailing; реакция лигирования; реакция обратной транскрипции; реакция miR-Amp). Синтетическая РНК (UUAUUGCUUAAGAAUACGCGUAG) с 59-фосфором была синтезирована компанией Thermo Fisher Scientific и использована для построения калибровочной кривой для интерполяции значений образцов миРНК и получения точной оценки (в нанограммах) содержания миР-137 в Samples16 с помощью GraphPad Prism (GraphPad Software, Сан-Диего, Калифорния, США).
Статистический анализ.Все значения представлены как среднее ± стандартная ошибка среднего. Статистический анализ был выполнен с помощью однофакторного дисперсионного анализа с последующим тестом множественных сравнений Ньюмана-Кеулса с *p.<0.05 considered="" statistically="" different="">
Заявления, этическое одобрение и согласие на участие.Исследования на животных проводились в соответствии с Датскими национальными рекомендациями по уходу и обращению с экспериментальными животными и опубликованными рекомендациями Национальных институтов здравоохранения. Комитет по этике ухода за животными Института клинической медицины Орхусского университета утвердил протоколы исследований в соответствии с лицензиями на использование экспериментальных животных, выданными Министерством юстиции Дании (номер разрешения 2015-15-0201-00658). Авторы подтверждают, что все методы проводились в соответствии с соответствующими руководствами и правилами. Более того, авторы подтверждают, что исследование проводилось в соответствии с рекомендациями ARRIVE.
использованная литература
1. Эль, С.Н. и Каракая, С. Оливковое дерево (Olea europaea) потенциально благотворно влияет на здоровье человека. Нутр. Откр. 67, 632–638.
2. Джавади Х., Ягхобзаде Х., Эсфахани З., Реза Мемарзаде М. и Мехди Мирхашеми С. Влияние экстракта листьев оливы на метаболический ответ, функции печени и почек и воспалительные биомаркеры у пациентов с гипертонией. PJBS 22, 342–348.
3. Saibandith, B., Spencer, JPE, Rowland, IR & Commane, DM Полифенолы оливы и метаболический синдром. Молекулы
4. Шериф С. и соавт. Клинические испытания титрованного экстракта оливы при лечении эссенциальной артериальной гипертензии. Дж. Фарм. бельг. 51, 69–71 (1996).
5. Difonzo, GRA et al. Зеленые экстракты оливок сорта Кортина обладают антиоксидантными свойствами и биологической активностью. Дж. Функц. Продукты 31, 8.
6. Эрреро М. и соавт. Новые возможности повышения ценности побочных продуктов оливкового масла. Ж. Хроматогр. 1218, 7511–7520.
7. Марчетти С. и соавт. Экстракт листьев оливы, обогащенный олеуропеином, влияет на динамику кальция и снижает жизнеспособность клеток злокачественной мезотелиомы. eCAM 2015, 908493.
8. Ромеро М. и соавт. Антигипертензивные эффекты обогащенного олеуропеином экстракта листьев оливы у крыс со спонтанной гипертензией. Пищевая функция 7, 584–593.
9. Hall, JE Почечная дисфункция, а не непочечная сосудистая дисфункция. Опосредует индуцированную солью гипертензию. Тираж 133, 894–906.
10. Wilson, JL, Miranda, CA & Knepper, MA Вазопрессин и регуляция аквапорина-2. клин. Эксп. Нефрол. 17, 751–764.