Маленький, но мощный: экзосомы, новые межклеточные мессенджеры в нейродегенерации. Часть 2
Jun 05, 2024
Дифференциальное ультрацентрифугирование. Метод ультрацентрифугирования долгое время считался «золотым стандартом» выделения экзосом [10,78] и является наиболее часто используемым методом. Джонстон и его коллеги впервые сообщили об ультрацентрифугировании для выделения экзосом из культуральной среды ретикулоцитов [10].
Кажется, что прямой связи между дифференциальным ультрацентрифугированием и памятью нет, но между ними есть некоторые косвенные связи.
Во-первых, дифференциальное ультрацентрифугирование может помочь нам поддерживать здоровье тела и мозга, тем самым улучшая нашу память. Исследования показали, что физические упражнения могут способствовать укреплению связей между нейронами головного мозга и улучшению функций мозга, включая память. Как метод высокоинтенсивных упражнений, дифференциальное ультрацентрифугирование может способствовать здоровью сердечно-сосудистой системы, мышечной силе и выносливости, что может еще больше улучшить нашу память.
Во-вторых, дифференциальное ультрацентрифугирование может помочь нам снизить стресс и улучшить настроение, что также положительно влияет на память. Когда мы нервничаем, тревожимся или испытываем стресс, наш мозг выделяет некоторые негативные эмоциональные химические вещества, которые могут повлиять на нашу память и когнитивные способности. С помощью дифференциальных упражнений ультрацентрифугирования мы можем снять стресс в организме и стимулировать секрецию нейротрансмиттеров в мозге, тем самым улучшая наше настроение и когнитивные способности.
Кроме того, дифференциальное ультрацентрифугирование может помочь нам повысить нашу уверенность в себе и самоэффективность, что также может быть отражено в улучшении нашей памяти. Когда мы чувствуем себя уверенно и успешно, наш мозг выделяет некоторые положительные эмоциональные химические вещества, которые могут улучшить наши когнитивные способности и способности памяти. С помощью таких упражнений, как дифференциальное ультрацентрифугирование, мы можем улучшить свой спортивный уровень и физические способности, повысить уверенность в себе и самоэффективность и, таким образом, более эффективно улучшать память.
В целом прямой корреляции между упражнениями дифференциального ультрацентрифугирования и памятью нет, но некоторые косвенные связи между ними действительно есть. Занимаясь спортом, снижая стресс, улучшая настроение и повышая уверенность в себе, мы можем улучшить нашу память и когнитивные способности, одновременно принося пользу физическому и психическому здоровью. Таким образом, дифференциальное ультрацентрифугирование — это положительный способ упражнений, который может принести больше пользы нашему физическому и психическому здоровью и памяти. Видно, что нам необходимо улучшить память, а Цистанхе может значительно улучшить память, поскольку Цистанхе обладает антиоксидантным, противовоспалительным и антивозрастным действием, что может помочь уменьшить окислительные и воспалительные реакции в мозге, тем самым защищая здоровье организма. нервная система. Кроме того, Цистанхе может способствовать росту и восстановлению нервных клеток, тем самым улучшая связь и функцию нейронных сетей. Эти эффекты могут помочь улучшить память, способность к обучению и скорость мышления, а также предотвратить возникновение когнитивной дисфункции и нейродегенеративных заболеваний.

Нажмите «Знайте добавки для улучшения памяти»
Этот метод основан на использовании центробежных сил для последовательного разделения частиц в зависимости от их размера и плотности. Для более крупных и плотных частиц сначала требуются низкие центробежные силы [44,84].
В зависимости от природы образца первое низкоскоростное центрифугирование со скоростью 300–2000× удаляет плавающие, де-, ад- и апоптотические клетки. Высокоскоростное центрифугирование со скоростью 10 000× удаляет крупные везикулы и клеточный мусор.
Экзосомы осаждают ультрацентрифугированием при 100,000× g. Эффективность выделения экзосом зависит от нескольких факторов, включая ускорение (g), тип используемого ротора и его характеристики (коэффициент k, радиус вращения), а также конечную вязкость исходного образца. Эффективность седиментации экзосом снижается с увеличением вязкости.
Следовательно, выделение экзосом из сыворотки/крови требует более высоких скоростей центрифугирования и более продолжительного времени по сравнению с выделением экзосом из среды культуры клеток. В зависимости от используемого ротора можно обрабатывать относительно большие объемы проб. Ультрацентрифугирование для выделения экзосом требует минимального количества реагентов и расходных материалов и имеет хорошую воспроизводимость, но требует больше времени и дорогостоящего оборудования.
Возможность осаждения белковых агрегатов и других неэкзосомальных частиц побудила использовать градиентное ультрацентрифугирование, которое позволяет изолировать экзосомы на основе их плавучей плотности.
Сахарозу, йогексол, ол и йодиксанол обычно используют для изопикнического центрифугирования [85,86]. Этот метод требует много времени, требует использования небольшого объема пробы, поскольку вращающиеся пробирки не могут быть перегружены, и дает небольшое количество чистого препарата экзосом.
Ультрафильтрация. Этот метод основан на использовании гидрофильных пористых мембран с определенным размером пор или молекулярной массы для улавливания частиц определенного размера или массы. Образцы, такие как культуральная среда или биологические жидкости, последовательно фильтруются через мембраны с уменьшающимся размером пор. Это позволяет удерживать крупные частицы на каждом этапе фильтрации, а ретентат обогащается частицами определенного размера.
Экзосомы выделяют из конечного ретентата ультрацентрифугированием. Эта процедура быстрая и завоевала популярность [69]. Ультрафильтрация связана с некоторыми недостатками, связанными с закупоркой мембраны и захватом экзосом, что приводит к умеренному выходу экзосом. ЧистыйСтресс фильтрации может повредить экзосомы. Эксклюзионная хроматография: Принцип этого метода основан на очистке белков с помощью хроматографии.
Колонки заполнены пористыми полимерными шариками или смолой, такими как сефакрил S-1000, сефароза 2B и сефароза CL-2B [71,83–89]. Когда образец загружается в колонку, он проходит через смолу. Более крупные частицы проходят через колонку, поскольку они слишком велики для проникновения в смолу и вымываются первыми (это также называется проточным).
Мелкие частицы, попадающие в пористую смолу, элюируются путем пропускания буфера через колонку. Это разделение строго основано на размере или молекулярной массе и, следовательно, всей очистке субпопуляций экзосом. Исключение размера.Хроматография — быстрый и воспроизводимый метод, не нарушающий целостность экзосом. Единственное предостережение этого метода заключается в том, что небольшая фракция холестерина липопротеинов высокой плотности и белков совместно элюируется с экзосомами [87].
Дополнительная очистка центрифугированием в градиенте плотности необходима для удаления белковых агрегатов и липидов для получения чистого препарата экзосом. Иммуноаффинный захват: этот метод основан на использовании антител против поверхностных белков экзосом, таких как белки тетраспанин [78,90,91]. Магнитные шарики, ковалентно покрытые стрептавидином, инкубируются с биотинилированными антителами против поверхностных белков экзосом, также называемыми «антителами-захватчиками».
Комплексы магнитные шарики-захватывающее антитело инкубируют с образцом, несвязанный образец удаляется путем намагничивания шариков. Промытые шарики обрабатываются непосредственно для последующего применения без элюирования экзосом. Это простой в использовании метод, обеспечивающий чистое приготовление субпопуляций экзосом. Однако этот метод нельзя использовать регулярно, поскольку антитела дороги, и этот метод требует предварительного знания поверхностных белков экзосом и зависит от наличия антител против них.
Этот метод имеет трудности с элюированием интактных экзосом. Однако после его создания его можно будет использовать для таких целей, как скрининг опухолевых экзосом в плазме.
Помимо магнитных шариков, некоторые другие платформы, такие как высокопористые монолитные кремниевые микрочипы, пластиковые пластины, целлюлозные фильтры, мембранные аффинные фильтры, агарозный сорбент и микрофлюидные устройства, используют очистку экзосом на основе аффинности. Устройство для микрофлюидики: физико-химические и биохимические особенности экзосом используются в наномасштаб.
Устройство микрофлюидики требует небольшого объема образца. Образец направляется через каналы микроразмера, а экзосомы захватываются с использованием методов иммуноаффинности или захвата пористыми структурами [67], фильтрации по размеру, нанопроволочного захвата, латерального смещения, акустической нанофильтрации и, в последнее время, сортировки вязкоупругого потока [82].
Эти устройства вызвали большой интерес, поскольку необходимые реагенты исчисляются микролитрами, они портативны, а процесс выделения экзосом очень быстрый и эффективный. Таким образом, микрофлюидные устройства имеют потенциал для разработки для быстрого клинического скрининга и диагностики. Единственным недостатком этого метода является малая емкость выборки.
Проточная цитометрия, асимметричное фракционирование в поле потока, градиентное ультрацентрифугирование и осаждение полимера являются некоторыми дополнительными методами очистки форэкзосом [92–94].
Из обзора современных методов выделения очевидно, что ни один конкретный подход не подходит для всех требований выделения экзосом.
Стандартизация метода, который будет использоваться для выделения экзосом, имеет решающее значение.

Оптимальный метод изоляции будет зависеть от природы образца, исходного объема образца и последующего применения. Идеальный метод изоляции предпочтительно должен быть простым и не требовать сложного или дорогостоящего оборудования. В клинических условиях изоляция экзосом должна быть масштабируемой, экономически эффективной и быстрой.
Очистка экзосом головного мозга. Экзосомы имеют большие перспективы в качестве клинических диагностических маркеров заболеваний и прогностических биомаркеров. Современные методы выделения экзосом из биологических жидкостей, включая кровь, мочу и спинномозговую жидкость, хотя и не без проблем, выполняются довольно часто. Однако для полного использования потенциала экзосом необходимо разработать методы извлечения экзосом из твердых тканей.при нейродегенеративных заболеваниях первичная патология часто локализуется в определенной области мозга, но токсичные белки впоследствии распространяются на другие области мозга. Современные механизмы распространения токсических белков в другие области мозга до конца не изучены. Вероятно, кандидатами являются экзосомы, поскольку они участвуют в межклеточной коммуникации. Весьма вероятен сценарий, согласно которому экзосомальный груз различается в разных областях мозга.
Следовательно, выделение экзосом из интересующей области мозга потенциально может быть очень информативным. Одно из самых ранних сообщений об выделении экзосом из ткани головного мозга поступило от Переса Гонсалеслеса и его коллег [95]. Они очистили экзосомы независимо от свежего и замороженного мозга мыши, а также замороженных тканей мозга человека.
Метод выделения включал первоначальную обработку ткани папаином с последующей фильтрацией для удаления клеток и дебриса. Впоследствии гомогенаты подвергали серии низкоскоростных центрифугирования с последующей серией высокоскоростных центрифугирований. Экзосомы дополнительно очищали фракционированием в градиенте сахарозы. Используя этот протокол, авторы сообщают о выделении интактных экзосом из мозга [95].
Похожий метод использовали Велла и его коллеги, за исключением того, что образец не подвергался фильтрации [96]. Методология, использованная этой исследовательской группой, привела к выделению экзосом, которые соответствовали всем критериям характеристики экзосом, что стало важным инструментом для нейробиологов. Интересный и необычный подход к выделению экзосом был использован другой исследовательской группой.
Утверждая, что ультрацентрифугирование гранул удаляет «нежелательные растворимые белки и агрегаты», Галларт-Палау и его коллеги гомогенизировали свежий мозг мыши и замороженную лобную долю человека в 0.1M ацетатном буфере аммония, дополненном антипротеазами.
Объединенные супернатанты смешивали с четырьмя частями охлажденного ацетона для осаждения гидрофильных белков и аналогичных тканевых макромолекул, оставляя гидрофобные экзосомы в растворе [97]. На наш взгляд, у этого метода есть несколько недостатков. Во-первых, маловероятно, что ацетат аммония может поддерживать нейтральный pH, поскольку pKa уксусной кислоты составляет около pH 4,75, а pKa аммония около pH 9,25.
Таким образом, ткань мозга гомогенизируется с помощью буфера с нестабильным pH, что может влиять на заряд макромолекул [98].
Во-вторых, хотя ацетон может отделять гидрофильные белки и другие гидрофильные молекулы от супернатантов, он может изменять фосфолипидный бислой, а в-третьих, увеличивать текучесть плазматической мембраны, что указывает на случайную утечку содержимого экзосом [99].
3. Роль экзосом в центральной нервной системе (ЦНС).
Сложные взаимодействия между нейронами и глией являются предпосылкой нормального функционирования нервной системы (рис. 4) [100]. Коммуникация в ЦНС описывается как мультимодальная и подразделяется на проводную передачу (передача «один один») и объемную передачу ко многим) [101].
Проводная передача включает нейротрансмиссию через электрические и химические синапсы, обеспечивающие передачу небольших молекул и ионов через щелевые контакты. Передачу объема, с другой стороны, облегчает паракринная передача сигналов через интерстициальное пространство или спинномозговую жидкость. Однако в последние годы стало очевидно, что экзосомы способствуют межклеточной коммуникации в ЦНС [102].
Экзосомы выполняют свою роль межклеточных коммуникаторов, оказывая свое воздействие посредством различных механизмов. Экзосомы могут инициировать каскады передачи сигнала посредством активации поверхностных рецепторов или доставки груза нуклеиновых кислот, белков, липидов и других небольших молекул, что приводит к функциональным последствиям в клетках-реципиентах.
Высвобождение и поглощение экзосом являются двунаправленными, что позволяет координировать биологические события. Экзосомы высвобождаются всеми клетками ЦНС, включая микроглию, олигодендроциты, астроциты, клетки и нейроны [103]. Высвобождение экзосом обычно контролируется передачей сигналов нейромедиаторов в головном мозге.
Воздействие возбуждающего нейромедиатора глутамата стимулирует высвобождение экзосом зрелыми нейронами коры и гиппокампа, культивируемыми in vitro. И наоборот, антагонисты рецепторов AMPA или NMDA обращают возбуждающую активность со сниженным выходом экзосом. Эти данные позволяют предположить, что высвобождение экзосом модулируется возбуждающей синаптической активностью.
Кроме того, высвобождению экзосом способствует деполяризация нейронов и приток кальция после лечения ионофором кальция иономицином [49]. Аденозинтрифосфат (АТФ), высвобождаемый в синапсах, действует как комедиатор, активирующий глиальные пуринергические рецепторы.
АТФ способствует высвобождению экзосом астроцитами и микроглиальными клетками. Связывание высвобождения экзосом с высвобождением нейротрансмиттеров позволяет предположить, что эти биологические наночастицы могут быть преимущественно локализованы в областях мозга с высокой нейрональной активностью, возможно, из-за большей потребности в межклеточной коммуникации и координации клеточной активности в этих регионах [100].подробное описание межклеточной коммуникации посредством экзосом [52,53,104–108]. В Таблице 2 кратко суммированы роли экзосом в межклеточной коммуникации в мозге. Ниже мы кратко опишем межклеточную коммуникацию между клетками мозга, опосредованную экзосомами.
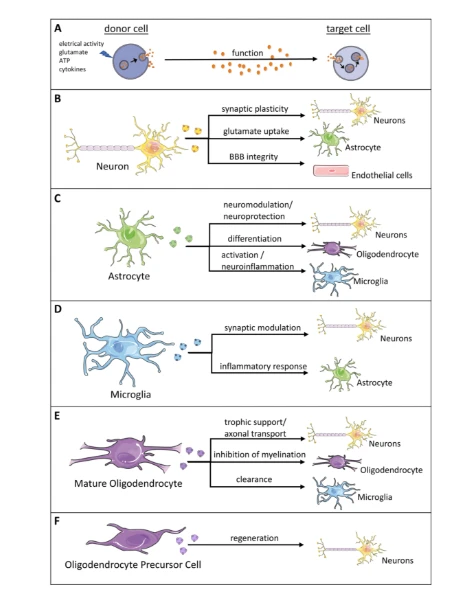
Рисунок 4. Межклеточная коммуникация между клетками головного мозга, опосредованная экзосомами. Экзосомы родительской клетки могут иметь несколько клеток-мишеней (или реципиентов) в головном мозге, чтобы обеспечить поддержание гомеостаза. (А) Высвобождение экзосом в ЦНС происходит в ответ на передачу сигналов нейромедиатора и, следовательно, контролируется электрической активностью.
Например, воздействие хлорида калия деполяризует нейроны, часто называемые электрически активными нейронами. Деполяризованные нейроны выделяют глутамат, который связывается и стимулирует рецепторы AMPA и NMDA на олигодендроцитах. Активация глутаматных рецепторов повышает внутриклеточный уровень кальция в олигодендроцитах. Увеличение внутриклеточного кальция индуцирует высвобождение экзосом олигодендроцитами [109].
АТФ-опосредованная стимуляция подтипа пуринорецепторов P2, P2X7, стимулирует высвобождение экзосом микроглией [110] и астроцитами [111]. Серотонин также стимулирует высвобождение экзосом микроглией [112]. (B) Нейроны регулируют определенные функции нейронов, астроцитов и эндотелиальных клеток посредством высвобождения экзосом GH [113].
В частности, экзосомы нейронов устраняют синапсы и стимулируют фагоцитоз клеток микроглии [114]. Нейрональные экзосомы, высвобождаемые в ответ на синаптическую активацию, контролируют экспрессию транспортеров глутамата в астроцитах, регулируя внеклеточные уровни глутамата [115]. (C) Экзосомы, полученные из астроцитов, модулируют функцию нейронов и оказывают нейропротекторную роль.
Экзосомы астроцитов активируют микроглию и играют важную роль в дифференцировке олигодендроцитов. (D) Микроглиальные экзосомы модулируют синаптическую функцию нейронов и взаимодействуют с астроцитами, вызывая нейровоспаление.
Микроглиальные экзосомы могут выполнять как нейропротекторную, так и нейродегенеративную роль, связанную с микроглией. (E) Экзосомы зрелых олигодендроцитов способствуют аксональному транспорту и помогают поддерживать чистоту микроокружения посредством связи через микроглию и астроциты. (F) Декзосомы, полученные из клеток-предшественников олигодендроцитов, способствуют нейрорегенерации [116].

Адаптировано с разрешения Шнаца А., Мюллера К., Брамера А. и Кремера-Альберса Э.-М. (2021), Внеклеточные везикулы во взаимодействии нервных клеток и гомеостазе ЦНС. FASEB BioAdvances, 3: 577–592 [100]. doi:10.1096/fba.2021-00035; Copyright© 2022 Авторы.
FASEB BioAdvances, опубликованный Федерацией американских обществ экспериментальной биологии. Эта статья находится в открытом доступе в соответствии с условиями http://creativecommons.org/licenses/by-nc/4.0/License (3 марта 2022 г.), которая разрешает использование, распространение и воспроизведение на любом носителе, при условии, что оригинальная работа правильно цитируется и не используется в коммерческих целях.
Экзосомы, полученные из нейронов: культивируемые нейроны мышиного и человеческого происхождения, а также нервные стволовые клетки высвобождают экзосомы [92,117,118].
Интересное наблюдение было сделано коллегами Чиветанда при изучении экзосом, выделяемых клетками нейробластомы. Они наблюдали клеточно-специфическую интернализацию экзосом.
Экзосомы из клеток нейробластомы легко эндоцитозировались астроцитами и олигодендроцитами, но в гораздо меньшей степени нейронами гиппокампа. С другой стороны, экзосомы, высвобождаемые нейронами в ответ на синаптическую активность, поглощались только нейронами, что указывает на высокую специфичность опосредованных экзосомами коммуникаций между клетками мозга [119].
Предполагается, что экзосомы, полученные из нейронов, участвуют в синаптической пластичности путем удаления устаревших белков и РНК. Это достигается за счет активации фагоцитарной функции микроглии [120]. Вызванная калием деполяризация культивируемых клеток нейробластомы человека высвобождает экзосомы, обогащенные набором связанных с активностью микроРНК и синаптическим белком MAP1b.
Белок MAP1b широко присутствует в конусах роста аксонов и дендритных спинах и связан с синаптической пластичностью [121]. Деполяризация стимулирует поглощение сома-дендритных экзосом соседними синапсами.
Интернализованные экзосомы способствуют усилению синаптической силы за счет быстрой трансляции мРНК, имеющих отношение к синаптической активности, в постсинаптической области [121]. Дополнительную поддержку роли экзосом в модуляции нейротрансмиссии обеспечивают исследования с использованием первичных эмбриональных кортикальных нейронов, которые высвобождают экзосомы, содержащие две микроРНК: Let-7c и miR-21.
Эти микроРНК являются лигандами Toll-подобного рецептора 7 (Tlr7). Активация Toll-подобного рецептора 7 играет отрицательную роль в росте аксонов и дендритов. Инкубация нейронов с Let-7c и miRhurtt влияла на рост дендритов в нормальных нейронах, и этот эффект был стерт в нейронах мышей с нокаутом Tlr7(-/-) [122].
Таким образом, разумно предположить, что нейрональные экзосомы могут модулировать нейротрансмиссию, регулируя рост нейритов во время развития нервной системы. Экзосомы также влияют на синаптогенез и поддержание синапсов.
Богатый пролином трансмембранный белок PRR7 высвобождается нейронами в зависимости от активности через экзосомы. Интернализация экзосом, содержащих PRR7-, соседними нейронами уменьшает количество возбуждающих синапсов.
Уменьшение возбуждающих синапсов достигается за счет активации GSk3, стимуляции протеасомной деградации белков PSD и одновременного ингибирования экзосомальной секреции Wnts [123]. Экзосомы, таким образом, влияют на взаимодействие rs нейрон-нейрон и нейрон-глия. Экзосомы, полученные из астроцитов: Астроциты представляют собой наиболее распространенный тип глиальных клеток в мозге.
Они имеют решающее значение для поддержания гомеостаза мозга и обеспечивают жизненно важные функции, такие как нейротрофическая поддержка, модуляция синаптической активности и пластичности [124,125].
Астроцитарные отростки поддерживают контакт с кровеносными капиллярами головного мозга, способствуя поддержанию гематоэнцефалического барьера [126]. Помимо выполнения этих жизненно важных функций, астроциты функционируют как иммунокомпетентные клетки ЦНС.
В зависимости от контекста активность астроцитов может усугублять воспалительные реакции или способствовать иммуносупрессии и восстановлению тканей. В местах повреждения тканей ЦНС реактивные астроциты образуют рубцы, которые эффективно служат функциональными барьерами для воспалительных клеток, тем самым контролируя воспаление ЦНС [127]. Реактивные астроциты выделяют нейротоксические вещества и воспалительные молекулы, такие как цитокины и хемокины.
Некоторые из этих функций астроцитов частично облегчаются высвобождением экзосом. Кроме того, накапливающиеся данные подтверждают идею о том, что нейропротекторная роль астроцитов опосредована экзосомами. Астроциты крысы, культивированные in vitro, высвобождают экзосомы, содержащие нейропротекторные и нейротрофические факторы.
В частности, экзосомы астроцитов были обогащены фактором роста фибробластов 2 и васкулярно-эндотелиальным фактором роста [128]. Оба являются ангиогенными молекулами и опосредуют пролиферацию, регенерацию аксонов, нейрогенез и синаптическую пластичность [129,130]. Стресс вызывает включение гликолитического фермента альдолазы С в экзосомы астроцитов [131].
Повышенные уровни альдолазы C не только индуцируют экспрессию miR-26a-5p в астроцитах, но и упаковку значительно повышенных уровней miR-26a-5p в экзосомах. Интернализация астроцитарных экзосом с повышенным уровнем miR-26a-5p снижает уровни белков MAP2 и GSk3 в нейронах гиппокампа, что приводит к снижению сложности дендритов [132].
Воздействие первичных культур кортикалоастроцитов крысы на провоспалительные цитокины I, L1 и TNF приводило к высвобождению экзосом, обогащенных микроРНК, которые нацелены на белки, участвующие в передаче сигналов нейротропинов.
В частности, miR-125a-5p и miR-16-5p нацелены на NTKR3 и его нижестоящий эффектор Bcl2. Понижение уровня Bcl2 в нейронах вызывало снижение роста и сложности дендритов [133]. Таким образом, астроциты отвечают на воспалительные процессы, модулируя экспрессию белков, участвующих в синаптической стабильности и возбудимости нейронов.
Снижение активности нейронов может положительно повлиять на выживаемость нейронов после инсульта. Экзосомы, высвобождаемые астроцитами в ответ на внутримозговую инъекцию IL-1, поступают в периферическое кровообращение и способствуют рекрутированию периферических лейкоцитов. Таким образом, эти данные позволяют предположить, что экзосомы служат мостом связи между ними и антепериферией [134].
Экзосомы, полученные из олигодендроцитов. Быстрое и надежное распространение потенциала действия вдоль аксонов зависит от миелинизации нейронов. Олигодендроциты окружают несколько аксонов. Encanto обновляет миелиновую оболочку три раза за 2 часа 135]. Миелин особенно обогащен липидами, но насчитывает несколько белков, которые являются неотъемлемой частью формирования миелина.
Основные белки миелина включают протеолипидный белок (PLP), миелиносновной белок (MBP), миелин-ассоциированный гликопротеин (MAG) и 30-циклическую нуклеотид30-фосфодиэстеразу (CNP) [136]. Два белка, PLP и MBP, распределяются внутри миелиновой оболочки и играют важную роль в процессе уплотнения, в результате которого образуется плотно прилегающая многослойная структура миелина.
Помимо своей важной функции по производству миелина, олигодендроциты обеспечивают трофическую поддержку аксонов и, следовательно, необходимы для целостности аксонов [137]. Связь между олигодендроцитами и нейронами имеет решающее значение для достижения этой важной функции. Недавние исследования показывают, что олигодендроцитэкзосомы интернализуются нейронами, обеспечивая трофическую поддержку аксонов.
Подобно нейронам, высвобождение экзосом из олигодендроцитов зависит от активности. Нейротрансмиттерглутамат, высвобождаемый активными нейронами, стимулирует увеличение внутриклеточного кальция инолигодендроглии через NMDA и AMPA-рецепторы.
Повышенный цитозольный Ca2+ запускает секрецию олигодендроцитами экзосом, обогащенных CN-P и PLP. После высвобождения экзосомы интернализуются нейронами, завершая двустороннее прямое взаимодействие между олигодендроцитами и нейронами [109,138].
Исследования in vitro с использованием культивируемых нейронов также продемонстрировали, что экзосомы, высвобождаемые олигодендроцитами, увеличивают выживаемость нейронов в условиях клеточного стресса [109]. В рамках этих исследований Фрюбайс и его коллеги продемонстрировали, что у мышей с дефицитом CNP и PLP наблюдалось нарушение высвобождения экзосом из олигодендроцитов [139].
Важно отметить, что олигодендроциты, выделенные и культивированные у мышей с мутацией CNP или мышей с мутацией PLP, показали снижение высвобождения экзосом, что нарушило, таким образом, связь олигодендроцитовнейронов.

Отсутствие связи между олигодендроцитами и нейронами через экзосомы приводило к дегенерации аксонов и снижению метаболитной поддержки нейронов [139]. Эти наблюдения позволяют предположить, что экзосомы олигодендроцитов вносят важный вклад в поддержание нейронального гомеостаза.
For more information:1950477648nn@gmail.com