Полисахарид Cistanche Deserticola ослабляет остеокластогенез и резорбцию костей за счет ингибирования передачи сигналов RANKL и производства активных форм кислорода
Mar 20, 2022
Контакт:joanna.jia@wecistanche.com/ WhatsApp: 008618081934791
Дежи Сонг и др.
Остеопороз — метаболическое заболевание, характеризующееся остеопенией и нарушением микроструктуры кости. Остеокласты являются первичными эффекторными клетками, разрушающими костный матрикс, и их аномальная функция приводит к развитию остеопороза. Накопление активных форм кислорода (АФК) в процессе клеточного метаболизма способствует пролиферации и дифференцировке остеокластов, поэтому играет важную роль в развитии остеопороза.Цистанхепустыняполисахарид(CDP) обладает противоопухолевой, противовоспалительной и антиоксидантной активностью. Однако влияние CDP на остеокласты неясно. В этом исследовании для демонстрации того, что ЦДФ(Цистанхепустыняполисахарид)подавляет остеокластогенез и резорбцию гидроксиапатита. Кроме того, CDP(Цистанхепустыняполисахарид)также ингибировал экспрессию маркерных генов остеокластов, включая Ctsk, Mmp9 и Acp5, и не влиял на экспрессию рецепторного активатора ядерного фактора κB (RANK). Механистический анализ показал, что CDP(Цистанхепустыняполисахарид)увеличивает экспрессию антиоксидантных ферментов для ослабления RANKL-опосредованной продукции АФК в остеокластах и ингибирует ядерный фактор активированных Т-клеток и активацию митоген-активируемой протеинкиназы. Эти результаты позволяют предположить, что CDP может представлять собой лекарство-кандидат для лечения остеопороза, вызванного чрезмерной активностью остеокластов.
КЛЮЧЕВЫЕ СЛОВАрезорбция костей,Цистанхепустыняполисахарид, МАПК, остеокласт, активные формы кислорода

бодибилдинг
1|ВВЕДЕНИЕ
Баланс между формированием кости, опосредованным остеобластами, и резорбцией кости, опосредованной остеокластами, играет жизненно важную роль в поддержании метаболического гомеостаза кости (Manolagas, 2000; Zhu et al., 2018). Когда резорбция кости превышает формирование кости, возникает остеопороз, который характеризуется снижением костной массы и повреждением микроструктуры кости (Ikeda, 2008). Остеопороз является распространенным заболеванием пожилых людей и женщин в постменопаузе, и его патогенез до конца не выяснен (Cooper & Melton, 1992). Дефицит эстрогена является основной причиной остеопороза (Manolagas, O'Brien, & Almeida, 2013). Кроме того, реактивные формы кислорода (АФК) могут индуцироваться активатором рецептора лиганда ядерного фактора κB (RANKL) и связаны с образованием остеокластов (Yip et al., 2005) и, таким образом, могут способствовать развитию остеопороза (Manolagas, 2010). Некоторые исследования показали, что дефицит Nrf2-антиоксиданта увеличивает уровни ROS и способствует RANKL-индуцированной дифференцировке остеокластов (Hyeon, Lee, Yang, & Jeong, 2013). Следовательно, снижение продукции АФК во время дифференцировки остеокластов следует рассматривать как терапевтическую стратегию лечения остеопороза.
Остеокласты происходят из гемопоэтической линии моноцитов или макрофагов и являются единственными многоядерными клетками, которые выполняют резорбцию кости (Teitelbaum, 2000). Поэтому исследования образования остеокластов имеют большое значение для разработки эффективных методов лечения заболеваний костного метаболизма (Lorenzo, 2017). Макрофагальный колониестимулирующий фактор (M-CSF) и RANKL, продуцируемые остеобластами и активированными Т-клетками, являются важными цитокинами, регулирующими остеокластогенез (Kim & Kim, 2016; Teitelbaum & Ross, 2003). RANKL индуцирует экспрессию ядерного фактора активированных Т-клеток (NFATc1), который является критическим фактором транскрипции, активным во время образования остеокластов (Ishida et al., 2002). Активированный NFATc1 способствует экспрессии маркерных генов остеокластов, таких как устойчивая к тартрату кислая фосфатаза (TRAcP) и катепсин К (CTSK), которые регулируют остеокластогенез и функцию остеокластов (Balkan et al., 2009; Crotti et al., 2008).
Цистанхепустыняполисахарид(CDP) выделяют из мясистых стеблейЦистанхеи обладает иммунорегулирующими, противоопухолевыми, антивозрастными и другими фармакологическими эффектами (Guo et al., 2016; Jia, Guan, Guo, & Du, 2012). CDP(Цистанхепустыняполисахарид)оказывал ингибирующее действие на индуцированную липополисахаридами продукцию оксида азота (NO) в клетках микроглии мыши (клетки BV-2; Nan et al., 2013). Кроме того, богатый фенилэтаноидами экстракт (ECD)Цистанхеулучшил плавательную способность мышей за счет уменьшения повреждения мышц, замедления накопления молочной кислоты и улучшения накопления энергии (Cai et al., 2010). Однако влияние CDP на функцию и активность остеокластов остается неизвестным.
В этом исследовании мы продемонстрировали, что CDP(Цистанхепустыняполисахарид)ингибирует RANKL-индуцированную дифференцировку остеокластов и резорбцию кости. Основной механизм заключался в том, что CDP(Цистанхепустыняполисахарид)усиливает экспрессию антиоксидантных ферментов, чтобы ослабить продукцию АФК, а затем подавляет RANKL-активируемые NFAT и митоген-активируемые протеинкиназы (MAPK)-сигнальные каскады. Эти результаты свидетельствуют о том, что CDP(Цистанхепустыняполисахарид)может использоваться для лечения остеопороза, вызванного чрезмерной остеокластической резорбцией кости.

мака женьшень цистанхе
2|МАТЕРИАЛЫ И МЕТОДЫ
2.1|Материалы
CDP(Цистанхепустыняполисахарид)(чистота> 98 процентов) был приобретен у Solarbio (Пекин, Китай) и приготовлен в исходной концентрации 1 мМ в фосфатно-солевом буфере (PBS). Антитела, специфичные к c-Fos, CTSK, GSR, TRX1, NOS2, TRAF6, RANK, NFATc1, ERK, JNK, p38, фосфорилированному (p)-ERK, p-p38, p-JNK и -актину, были получены от Санта-Клауса. Cruz Biotechnology (Сан-Хосе, Калифорния). Антитела к V-АТФазе d2 получали, как описано ранее (H. Feng et al., 2009). Система анализа 3-(4,5-диметилтиазол-2-ил)-5-(3-карбоксиметоксифенил)-2-(4-сульфофенил)-2H-тетразолия (MTS) и люциферазы была получена от Promega (Сидней, Австралия). . Рекомбинантный M-CSF был приобретен у R&D Systems (Миннеаполис, Миннесота). Рекомбинантный белок GST-rRANKL экспрессировали и очищали, как описано ранее (Xu et al., 2000).
2.2|Культура клеток
Клетки RAW264.7 (клетки мышиных макрофагов) были получены из Американской коллекции типовых культур (ATCC, Манассас, Вирджиния) и культивированы в модифицированной минимальной основной среде (Thermo Fisher Scientific, Скорсби, Австралия) с добавлением 10% эмбриональной бычьей сыворотки, 2 мМ. L-глутамина, 100 ЕД/мл пенициллина и 100 мкг/мл стрептомицина (полная среда). Моноциты, происходящие из костного мозга (BMM), были выделены из 6-недельных мышей C57BL/6J, которые были подвергнуты эвтаназии в соответствии с процедурами, одобренными Комитетом по этике животных Университета Западной Австралии (RA/3/100/1244). Длинные кости иссекали, освобождая от мягких тканей, и из бедренной и большеберцовой кости извлекали костный мозг, который затем культивировали в полной среде в присутствии M-CSF (50 нг/мл).
2.3|Анализ остеокластогенеза
BMM высевали в 96-луночные культуральные планшеты с плотностью 6 × 10³ клеток на лунку и обрабатывали полной средой, содержащей M-CSF (50 нг/мл) и GST-rRANKL (100 нг/мл), в присутствии или отсутствие различных концентраций CDP(Цистанхепустыняполисахарид). The cell culture medium was changed every 2 days. After 5 days, cells were fixed with 4% paraformaldehyde for 10 min, washed three times with PBS, and then stained for TRAcP‐enzymatic activity using the leukocyte acid phosphatase staining kit (Sigma‐Aldrich, Sydney, Australia), following the manufacturer's procedures. TRAcP‐positive multinucleated cells (>три ядра) были идентифицированы как остеокласты.
2.4|Анализы цитотоксичности
BMM высевали в 96-луночные планшеты по 6 × 10³ клеток на лунку и оставляли на ночь для прилипания. На следующий день клетки инкубировали с различными концентрациями CDP.(Цистанхепустыняполисахарид). Еще через 48 часов добавляли раствор MTS (20 мкл/лунку) и инкубировали с клетками в течение 2 часов. Поглощение при 490 нм определяли с помощью устройства для считывания микропланшетов (Multiscan Spectrum; Thermo Labsystems, Chantilly, VA.
2,5|Иммунофлуоресцентное окрашивание
BMM высевали с плотностью 6 × 10³ клеток на лунку в присутствии M-CSF (50 нг/мл) в течение ночи. Затем клетки стимулировали M-CSF и GST-rRANKL (100 нг/мл) до образования зрелых остеокластов. Затем остеокласты обрабатывали различными концентрациями CDP.(Цистанхепустыняполисахарид)в течение 48 часов перед фиксацией 4-процентным параформальдегидом, пермеабилизацией 0.1-процентным Triton X-100-PBS и блокированием 3-процентным бычьим сывороточным альбумином в PBS. Подготовленные клетки инкубировали с фаллоидином, конъюгированным с родамином, в течение 45 мин в темноте для окрашивания на F-актин. Затем клетки промывали PBS, ядра докрашивали 4',6-диамидино-2-фенилиндолом (DAPI) и помещали на покровные стекла для конфокальной микроскопии.

цистанче опыт
2,6|Анализ резорбции гидроксиапатита
Для измерения активности остеокластов BMM (1 × 10⁵ клеток на лунку), культивированные на шестилуночных планшетах с коллагеновым покрытием (BD Biocoat; Thermo Fisher Scientific), стимулировали GST-rRANKL (100 нг/мл) и M-CSF (50 нг/мл). мл) до образования зрелых остеокластов (Zhou et al., 2016). Затем клетки аккуратно отделяли от планшета с помощью раствора для диссоциации клеток (Sigma-Aldrich) и равные количества зрелых остеокластов высевали в отдельные лунки 96-луночных планшетов, покрытых гидроксиапатитом (Corning Osteoassay, Corning, NY). Зрелые остеокласты инкубировали в среде, содержащей GST-rRANKL и M-CSF с CDP или без него.(Цистанхепустыняполисахарид)в указанных концентрациях. Через 48 часов половину лунок иммуногистохимически окрашивали на активность TRAcP, как описано выше, для оценки количества многоядерных клеток на лунку. Остальные лунки отбеливали в течение 10 минут для удаления клеток и возможности измерения резорбированных участков. Области резорбции фотографировали с помощью стандартной световой микроскопии и использовали программное обеспечение Image J (National Institutes of Health, Bethesda, MD) для количественного определения процентной площади поверхности гидроксиапатита, резорбированной остеокластами.
2,7|Репортерные анализы люциферазы
Для исследования активации транскрипции NFATc1 клетки RAW264.7 стабильно трансфицировали репортерной конструкцией люциферазы, отвечающей на NFATc1 (Cheng et al., 2018; van der Kraan et al., 2013). Трансфицированные клетки культивировали в 48-луночных планшетах с плотностью 1,5 × 10⁵ клеток на лунку и предварительно обрабатывали различными концентрациями CDP.(Цистанхепустыняполисахарид)на 1 час. После предварительной обработки клетки стимулировали GST-rRANKL (100 нг/мл) в течение 24 часов и измеряли активность люциферазы с использованием репортерной системы анализа люциферазы в соответствии с протоколом производителя (Promega).
2,8|Количественный анализ полимеразной цепной реакции с обратной транскрипцией (ОТ-ПЦР)
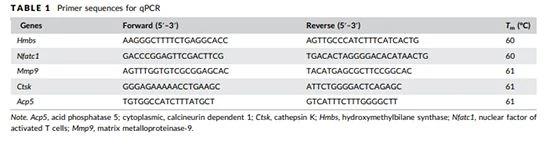
Суммарную РНК выделяли из клеток с использованием реагента Trizol согласно протоколу производителя (Thermo Fisher Scientific). Комплементарную ДНК синтезировали с использованием обратной транскриптазы вируса мышиного лейкоза Молони с 1 мкг РНК-матрицы и олиго-dT-праймеров. Амплификацию специфических последовательностей полимеразной цепной реакцией проводили по следующей программе: 94 градуса в течение 5 минут, затем 30 циклов 94 градуса в течение 40 секунд, 60 градусов в течение 40 секунд и 72 градуса в течение 40 секунд, и заключительный этап удлинения 5 мин при 72 градусах. Подробная информация о конкретных праймерах показана в таблице 1. Относительные уровни матричной РНК рассчитывали нормированием на экспрессию гена домашнего хозяйства Hmbs.
2.9|Вестерн-блот анализ
BMM культивировали в полной среде с M-CSF в шестилуночных планшетах и стимулировали GST-rRANKL (100 нг/мл) в течение указанного времени. Клетки лизировали в лизирующем буфере для радиоиммунопреципитации, белки разделяли с помощью электрофореза в полиакриламидном геле с додецилсульфатом натрия и переносили на мембраны из поли(винилиденфторида) (GE Healthcare, Silverwater, Australia). Мембраны блокировали в 5-процентном обезжиренном молоке на 1 час, а затем зондировали различными специфическими первичными антителами при осторожном встряхивании в течение ночи при 4°С. Мембраны промывали и затем инкубировали со вторичными антителами, конъюгированными с пероксидазой хрена. Затем реактивность антител определяли с помощью усиленного хемилюминесцентного реагента (Amersham Pharmacia Biotech, Piscataway, NJ) и визуализировали с помощью Image-quant LAS 4000 (GE Healthcare).
2.10|Внутриклеточное обнаружение АФК
Уровни внутриклеточных АФК определяли с использованием набора для определения 2',7'-дихлорфлуоресцеиндиацетата клеточных АФК (Abcam, Мельбурн, Австралия). BMM (5 × 10³ клеток на лунку) культивировали в 96-луночных планшетах и обрабатывали RANKL (100 нг/мл), M-CSF (50 нг/мл) и CDP в течение 72 часов. Внутриклеточные уровни АФК измеряли с использованием диацетата 2',7'-дихлорфлуоресцеина, который окисляется до флуоресцентного DCF в присутствии АФК. Клетки промывали буфером Хенкса и инкубировали в темноте в течение 30 мин с 10 мкМ DCFH-DA. Изображения были получены с помощью конфокальной микроскопии.
2.11|Статистический анализ
Все данные являются репрезентативными, по крайней мере, для трех экспериментов, проведенных в трех экземплярах, если не указано иное. Данные выражены как среднее значение ± стандартное отклонение. Однофакторный дисперсионный анализ с последующим апостериорным тестом Стьюдента-Ньюмена-Кеулса использовался для определения значимости различий между результатами, при этом p < 0,05="" считалось="">
3|ПОЛУЧЕННЫЕ РЕЗУЛЬТАТЫ
3.1|CDP ингибирует RANKL-индуцированный остеокластогенез и слияние остеокластов
Чтобы определить, является ли CDP(Цистанхепустыняполисахарид)может подавлять RANKL-индуцированное образование остеокластов, мы впервые провели анализ остеокластогенеза с использованием мышиных BMM (Liu et al., 2013; Song et al., 2016). BMM лечили RANKL и M-CSF в течение 5 дней с повышением концентрации CDP. CDP уменьшал количество TRAcP-позитивных многоядерных клеток, когда концентрация CDP(Цистанхепустыняполисахарид)достигла 5 мкМ или выше (рис. 1а, б). Для оценки CDP(Цистанхепустыняполисахарид)токсичность и подтвердить, что эти результаты не были отражением гибели или количества клеток, мы провели анализ MTS. BMM лечили RANKL и M-CSF в течение 48 часов с различными дозами CDP.(Цистанхепустыняполисахарид). CDP не оказывал влияния на пролиферацию BMM при концентрации 15 мкМ или менее (рис. 1c).

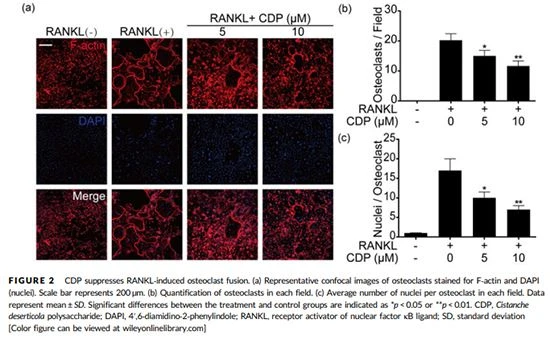
Для проверки эффектов CDP(Цистанхепустыняполисахарид)при слиянии остеокластов остеокласты индуцировались обработкой RANKL и M-CSF, с различными дозами CDP или без них(Цистанхепустыняполисахарид). Остеокласты окрашивали родамином-фаллоидином и DAPI для оценки количества ядер на остеокласт (рис. 2а). Как число остеокластов, так и среднее число ядер на остеокласт уменьшились после CDP.(Цистанхепустыняполисахарид)лечение (5–10 мкМ; рис. 2b, c). Таким образом, CDP(Цистанхепустыняполисахарид)оказывает ингибирующее действие на RANKL-индуцированный остеокластогенез и слияние остеокластов дозозависимым образом.
3.2|CDP(Цистанхепустыняполисахарид)ослабляет RANKL-индуцированную активность резорбции гидроксиапатита остеокластами
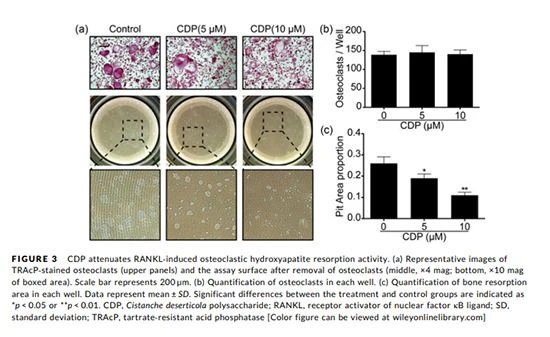
Анализ резорбции гидроксиапатита был проведен для обнаружения эффекта CDP.(Цистанхепустыняполисахарид)на функцию остеокластов (рис. 3а). После 24-часовой инкубации количество остеокластов на лунку не изменилось, в то время как площадь резорбции гидроксиапатита значительно уменьшилась при обработке 5 и 10 мкМ CDP по сравнению с контрольными группами (рис. 3b, c). Эти результаты показывают, что CDP(Цистанхепустыняполисахарид)оказывает сильное ингибирующее действие как на образование остеокластов, так и на активность резорбции остеокластов без каких-либо цитотоксических эффектов.
3.3|CDP(Цистанхепустыняполисахарид)ингибирует экспрессию маркерного гена остеокластов
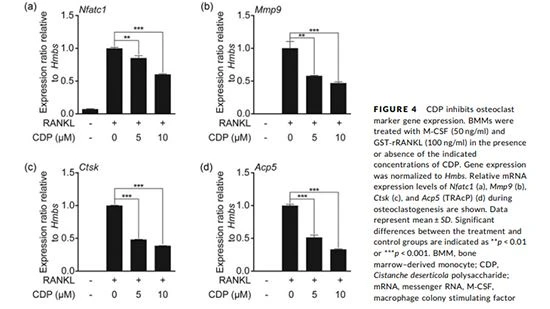
Для дальнейшего изучения ингибирующего действия CDP(Цистанхепустыняполисахарид)в отношении остеокластогенеза и остеокластической резорбции кости BMM лечили RANKL и M-CSF в течение 5 дней с различными концентрациями CDP.(Цистанхепустыняполисахарид). Затем была проведена ОТ-ПЦР для обнаружения экспрессии маркерных генов остеокластов. Экспрессия Nfatc1, ключевого фактора транскрипции во время остеокластогенеза, ингибировалась CDP.(Цистанхепустыняполисахарид)дозозависимым образом (рис. 4а). Кроме того, CDP(Цистанхепустыняполисахарид)(5 и 10 мкМ) подавляли экспрессию генов, связанных с резорбцией кости, включая Mmp9, Ctsk и Acp5 (рис. 4b-d).
3.4|CDP подавляет активность NFATc1 и экспрессию нижележащих белков.
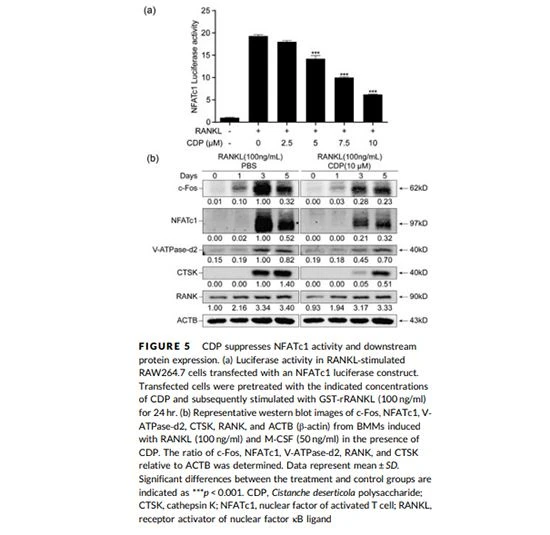
Чтобы изучить эффект CDP(Цистанхепустыняполисахарид)на RANKL-индуцированную активность NFATc1 был проведен репортерный анализ люциферазы. Лечение с помощью CDP(Цистанхепустыняполисахарид), в концентрациях 5 мкМ и выше значительно ингибировал RANKL-индуцированную активность NFATc1 (рис. 5а). Кроме того, вестерн-блоттинг показал, что CDP(Цистанхепустыняполисахарид)значительно подавляла экспрессию белка NFATc1 и c-Fos в BMM, получавших RANKL и M-CSF в течение 3 и 5 дней (рис. 5b). Более того, экспрессия белков, связанных с функцией остеокластов, таких как V-ATPase-d2 и CTSK, подавлялась в присутствии CDP.(Цистанхепустыняполисахарид)по сравнению с контрольными группами. Однако CDP не влиял на экспрессию RANK (рис. 5b).
3,5|CDP способствует экспрессии антиоксидантных ферментов для удаления продукции АФК во время RANKL-индуцированного остеокластогенеза.
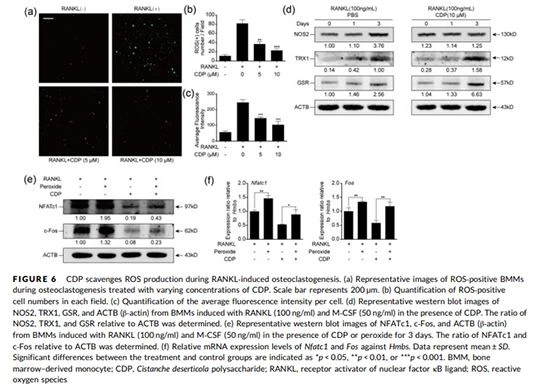
Чтобы изучить основной механизм CDP-зависимого ингибирования остеокластогенеза, BMM лечили RANKL (100 нг/мл) и M-CSF (50 нг/мл) вместе с PBS или CDP.(Цистанхепустыняполисахарид)на 72 часа. Мы исследовали влияние ЦДФ на внутриклеточную продукцию АФК, стимулированную RANKL. Уровни внутриклеточных АФК повышались при обработке RANKL, которая ослаблялась CDP (5 и 10 мкМ; рис. 6а). Как количество АФК-положительных клеток, так и интенсивность окрашивания АФК снижались при лечении CDP дозозависимым образом (рис. 6b, c). Вестерн-блоттинг показал, что CDP(Цистанхепустыняполисахарид)стимулировал экспрессию тиоредоксина (TRX1) и глутатионредуктазы (GSR), одновременно подавляя экспрессию индуцибельной синтазы оксида азота (NOS2) в BMM, которые лечили RANKL и M-CSF в течение 3 дней (рис. 6d).
Для дальнейшего изучения, если CDP(Цистанхепустыняполисахарид)подавляли дифференцировку остеокластов за счет снижения продукции АФК, затем мы обрабатывали МММ перекисью (10 мкМ), чтобы имитировать высокий статус АФК в клетках. BMM индуцировали RANKL и M-CSF в течение 3 дней, и результаты вестерн-блоттинга и RT-PCR показали, что пероксид способствует экспрессии NFATc1 и c-Fos по сравнению с контрольными группами. В соответствии с результатами на рисунке 5 экспрессия NFATc1 и c-Fos подавлялась CDP.(Цистанхепустыняполисахарид)в то время как пероксид восстановил ингибирующий эффект CDP (рис. 6e, f). Эти данные указывают на то, что CDP подавляет экспрессию NFATc1 и c-Fos, блокируя продукцию АФК.
3.6|CDP(Цистанхепустыняполисахарид)подавляет пути MAPK во время RANKL-индуцированного остеокластогенеза
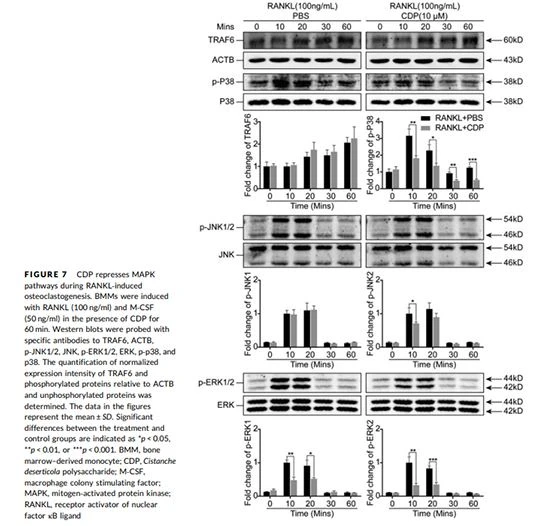
Затем мы исследовали влияние CDP(Цистанхепустыняполисахарид)воздействие на RANKL-опосредованную экспрессию TRAF6 и активацию пути MAPK. После инкубации в бессывороточной среде в течение 2 часов BMM стимулировали RANKL с CDP или без него в течение 60 минут. Стимуляция CDP (10 мкМ) не влияла на экспрессию TRAF6 и ослабляла фосфорилирование JNK2 и ERK1/2 через 10 и 20 мин (рис. 7). Кроме того, фосфорилирование p38 значительно ингибировалось CDP.(Цистанхепустыняполисахарид)лечение 60 мин по сравнению с контрольными группами (рис. 7). Эти данные показывают, что CDP(Цистанхепустыняполисахарид)подавляет RANKL-индуцированные сигнальные пути MAPK, что согласуется с его ингибирующим действием на образование и активность остеокластов.
4|ОБСУЖДЕНИЕ
Цистанхе, известный как «пустынный женьшень», в последнее время привлекает большое внимание своей способностью модулировать иммунитет и действовать защитно при старении и окислительном стрессе (Jia et al., 2012; Snytnikova et al., 2012). Было показано, что фенилпропаноидзамещенные гликозиды, основные активные компоненты Цистанхе, ингибируют активность NO в макрофагах (Ahn, Chae, Chin, & Kim, 2017). Кроме того,ЦистанхеЭкстракт снижает окислительный стресс в реперфузированном миокарде после ишемии и играет важную роль в ингибировании путей апоптоза, ведущих к кардиозащите (Yu, Li, & Cao, 2016). Являясь важным компонентом Cistanche, CDP(Цистанхепустыняполисахарид)выполняет различные фармакологические функции. Наше текущее исследование показало, что CDP подавляет дифференцировку и активацию остеокластов, активируемых RANKL, путем ослабления продукции ROS, а также активации NFAT и MAPK.
Как кислая фосфатаза, TRAcP существует во множестве клеток и в изобилии содержится в остеокластах и альвеолярных макрофагах (Snipes, Lam, Dodd, Gray, & Cohen, 1986). TRAcP является характерным ферментом остеокластов, и его экспрессия тесно связана с функцией остеокластов, рассматриваемой как показатель активности остеокластов и резорбции кости (Minkin, 1982). В нашем исследовании CDP(Цистанхепустыняполисахарид)ингибировал количество TRAcP-позитивных клеток, указывая на то, что RANKL-индуцированный остеокластогенез был заблокирован CDP(Цистанхепустыняполисахарид). Деградация костного матрикса остеокластами зависит от катепсина К (CTSK) и ММР (Gruber, 2015). Здесь CDP значительно снижает экспрессию функциональных генов остеокластов, таких как Mmp9, Ctsk и Acp5.
Дифференцировка и функция остеокластов регулируются множественными сигнальными путями (Boyle, Simonet, & Lacey, 2003). После связывания с RANK RANKL привлекает адапторный белок TRAF6 для активации экспрессии NFATc1, который является важным фактором транскрипции для образования остеокластов, влияя на экспрессию специфичных для остеокластов генов, включая TRAcP и CTSK (X. Feng, 2005; Takayanagi et al., 2002). В этом исследовании мы обнаружили, что CDP(Цистанхепустыняполисахарид)не влиял на экспрессию RANK и TRAF6 в остеокластах. Тем не менее, CDP(Цистанхепустыняполисахарид)ингибирует RANKL-индуцированную активацию NFATc1 во время остеокластогенеза BMM. Кроме того, показано, что АФК, продуцируемые митохондриями в процессе доставки электронов, способствуют пролиферации и дифференцировке остеокластов и регулируют деградацию костного матрикса (Ha et al., 2004). Недавнее исследование показало, что RANKL индуцирует ядерный импорт Bach1 и ослабляет Nrf2-опосредованную продукцию антиоксидантных ферментов, тем самым увеличивая внутриклеточную экспрессию ROS и остеокластогенез у мышей (Kanzaki et al., 2017). Кроме того, повышенная внутриклеточная генерация АФК гомоцистеином усиливала образование и активность остеокластов (Koh et al., 2006). Наше исследование показало, что ЦДФ снижает накопление АФК в остеокластах за счет ингибирования экспрессии NOS2 и стимулирования экспрессии антиоксидантных ферментов, таких как TRX1 и глутатионредуктаза. Когда мы обработали BMM перекисью для увеличения внутриклеточного накопления АФК, результаты, согласно которым увеличение АФК может улучшить экспрессию NFATc1, показали, что АФК находится выше NFATc1. Мы также обнаружили, что пероксид восстанавливал ингибирующее действие CDP на экспрессию NFATc1. Таким образом, наши данные свидетельствуют о том, что CDP подавляет накопление АФК, ингибируя экспрессию NFATc1, а затем подавляя образование и функцию остеокластов.
ERK, JNK и p38 принадлежат к семейству МАРК, которые также участвуют в регуляции дифференцировки остеокластов (Seger & Krebs, 1995). RANKL активирует путь MAPK путем увеличения фосфорилирования ERK, JNK и p38 (Mizukami et al., 2002). Мы продемонстрировали, что CDP(Цистанхепустыняполисахарид)подавлял RANKL-опосредованное фосфорилирование ключевых белков в пути MAPK, тем самым способствуя ингибирующему эффекту CDP на экспрессию маркерных генов остеокластов. Насколько нам известно, это первое исследование, показывающее ингибирующее действие CDP.(Цистанхепустыняполисахарид)на продукцию АФК, активацию NFAT и MAPK, представляющие новые механизмы действия CDP in vitro.
Таким образом, мы продемонстрировали, что CDP(Цистанхепустыняполисахарид)ослабляет остеокластогенез и резорбцию гидроксиапатита, а также экспрессию маркерных генов остеокластов, включая Ctsk, Mmp9 и Acp5. CDP(Цистанхепустыняполисахарид)был способен подавлять опосредованную RANKL продукцию АФК, а также активацию NFAT и MAPK (рис. 8). В совокупности наши результаты показывают, что CDP(Цистанхепустыняполисахарид)может представлять собой лекарство-кандидат для лечения состояний, связанных с остеокластами, сопровождающихся перепроизводством АФК.
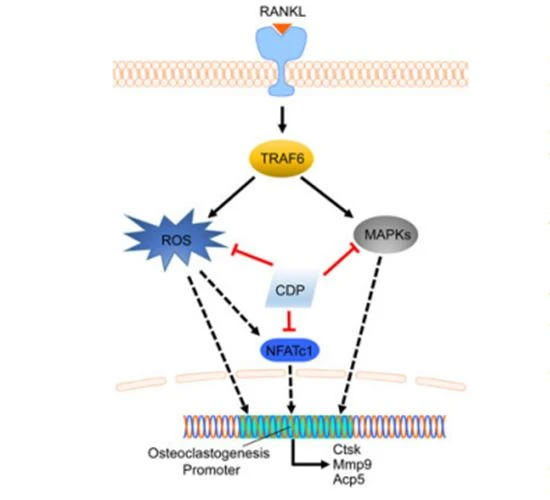
РИСУНОК 8 Принципиальная схема CDP(Цистанхепустыняполисахарид)роль в дифференцировке остеокластов. CDP(Цистанхепустыняполисахарид)подавляет RANKL-индуцированную продукцию ROS, а также активацию NFATc1 и MAPK, тем самым ингибируя остеокластогенез. CDP,Цистанхепустыняполисахарид; MAPK, митоген-активируемая протеинкиназа; NFATc1, ядерный фактор активированной Т-клетки; RANKL – лиганд активатора рецептора ядерного фактора κB; АФК, активные формы кислорода [цветной рисунок можно посмотреть на сайте wileyonlinelibrary.com]
БЛАГОДАРНОСТИ
Это исследование было поддержано Фондом естественных наук Китая (81572164), Национальной программой исследований и разработок ключевых технологий Китая (2017YFC1103300), Фондом естественных наук провинции Гуанси (2016GXNSFAA380295) и Исследовательским проектом Университета науки и технологий Гуанси. Провинция (KY2015YB054). Он также частично поддерживается Проектом плана научных исследований и развития технологий Гуанси (GKG13349003, 1598013-15), Фондом инфраструктуры медицинских и медицинских исследований Западной Австралии, Австралийским фондом артрита, Наградами за сотрудничество в области исследований Университета Западной Австралии (UWA) и Австралийский совет по здравоохранению и медицинским исследованиям (NHMRC, №№ 1107828 и 1027932).
КОНФЛИКТ ИНТЕРЕСОВ
Авторы заявляют об отсутствии конфликта интересов

Из: 'Цистанхепустыняполисахаридослабляет остеокластогенез и резорбцию кости за счет ингибирования передачи сигналов RANKL и производства активных форм кислорода Dezhi Song et al.
---© Wiley Periodicals, Inc., 2018. wileyonlinelibrary.com/journal/jcp J Cell Physiol. 2018;233:9674–9684