

Разработка вакцины против ящура и проблемы, связанные с созданием длительного иммунитета: тенденции и текущие перспективы
Jun 19, 2023
Абстрактный:
Ящур (ящур) — чрезвычайно заразное вирусное заболевание домашнего скота, вызываемое вирусом ящура рода Aphthovirus, которое наносит серьезный экономический ущерб как отдельным фермерам, так и народному хозяйству. Многие попытки разработать вакцину против ящура не смогли вызвать стерильный иммунитет. Классические методы производства вакцин были обусловлены избирательным накоплением мутаций вокруг антигенных и связывающих участков. Реверсия возбудителя путем положительного отбора и квазивидового роя, использование этого метода неприменимо для использования в неэндемичных районах. Химическая аттенуация с использованием бинарного этиленимина (БЭИ) защищала целостность капсида и создавала выраженный иммунитет против контрольного штамма.
Ящур — это вирусное заболевание, поражающее иммунную систему животного. Вирус ящура может проникать в клетки животных, разрушать клеточные мембраны и внутренние органы, нарушать иммунную функцию животных и делать их восприимчивыми к заражению другими патогенами.
В то же время прививка от ящура вакциной позволяет повысить иммунитет животных и сделать их невосприимчивыми к вирусу. После успешной вакцинации животное будет вырабатывать антитела, и когда оно снова подвергнется воздействию вируса ящура, оно сможет быстро вызвать иммунный ответ, эффективно предотвращая дальнейшее заражение вирусом и вызывая заболевание. происходить.
Поэтому повышение иммунитета животных, особенно путем вакцинации против ящура, является важным средством профилактики ящура. В то же время научное управление кормлением и санитарией, а также меры по профилактике эпидемий также могут помочь уменьшить распространение вируса и возникновение ящура. С этой точки зрения нам необходимо задуматься о том, нужно ли человеческому организму уделять внимание повышению иммунитета. Цистанхе может значительно повысить иммунитет человека. Цистанхе также обладает антивирусным и противораковым действием, что может усилить способность иммунной системы бороться и повысить иммунитет организма.
Преимущества цистанхе тубулозы Click
Вирусные антигены, которые были химически синтезированы или экспрессированы в вирусах, плазмидах или растениях, были опробованы при вакцинации животных. ДНК-вакцины, экспрессирующие либо структурные, либо неструктурные белковые антигены, были опробованы для иммунизации животных. Использование интерлейкинов в качестве генетического адъюванта для ДНК-вакцин имеет многообещающий эффект. В то время как проблемы индукции стерильного иммунитета связаны с неструктурными (NS) белками ящура, которые ответственны за апоптоз дендритных клеток и оказывают негативное влияние на лимфопролиферативные реакции, что приводит к временной иммуносупрессии. Кроме того, разрушение переноса белков-хозяев неструктурными белками подавляло пролиферацию CD8 и Т-клеток. В этом обзоре была предпринята попытка рассмотреть несколько подходов к испытаниям вакцины и узкие места, связанные с созданием стерильного иммунитета.
Ключевые слова:
Вакцина от ящура, длительный иммунитет, стерильный иммунитет.
Фон
Ящур (ящур) представляет собой чрезвычайно заразную вирусную инфекцию домашнего скота, вызываемую вирусом ящура рода Aphthovirus и семейства Picornaviridae; это наносит серьезный экономический ущерб.1,2 Ящур сильно поражает домашних и диких копытных.3–5 Протомеры 5S спонтанно продуцируются отдельными зрелыми белками; VP1, VP3 и VP0, пять из которых собираются в пентамер 12S. В то время как вирусный капсид 75S образован сборкой 12 пентамеров,6,7 полный антиген 146S вируса ящура (FMDV), как сообщается, имеет очень сходную антигенную специфичность с вирусным капсидом.8,9 Foot-and Вирус ротовой болезни имеет широкий круг хозяев, высокий уровень генетической изменчивости и большие антигенные различия, он имеет семь серотипов (A, O, C, Asia1, SAT1, SAT2 и SAT3) и более 100 сероподтипов.10 Из-за роя квазивидов каждый год появляется много новых вариантов. Семь серотипов не вызывают перекрестного иммунитета. Существует также лишь частичный перекрестный иммунитет между различными подтипами одного и того же серотипа.11 Изменчивость и полиморфизм вируса ящура очень затрудняют профилактику и борьбу с ящуром.10 Рекомбинантный аденовирус ящура, экспрессирующий белки P12A и 3C разных серотипов, показал защитный эффект.12–14
Классические инактивированные вакцины имеют много недостатков, включая термическую нестабильность, кратковременный иммунитет, высокую стоимость, риск рекомбинации с дикими штаммами и реверсию патогенности.11,15,16
Несмотря на 90-летние исследования, эффективной вакцины, обеспечивающей стерильный и стойкий иммунитет против ящура, не существует, но болезнь остается энзоотической на больших территориях земного шара. Многие попытки разработать вакцину против ящура не смогли вызвать стерильный иммунитет, с небольшой защитой от перекрестных серотипов и недостаточной продолжительностью иммунитета. животные и его естественный хозяин смогли ослабить вирус. Это связано с избирательным накоплением мутаций вокруг антигенных и связывающих сайтов.19–21 Однако использование реверсии возбудителя методом положительного отбора и квазивидового роя неприменимо для использования в неэндемичных районах.22 ДНК и Белковые технологии улучшили результаты исследований, модифицировав интегриновые рецепторы,23 используя синтетические пептиды, которые могут индуцировать выраженный иммунный ответ у животных.24 Эпитопы Т-хелперных клеток, присущие области петли G-H, являются мощными эпитопами В-клеток, которые индуцируют гуморальный иммунитет.25 Использование рекомбинантного интерферона (IFN) и бычьего интерлейкина 18 (IL-18) в качестве адъюванта повысило долговременный иммунитет у лабораторных животных.26,27
В последнее время рекомбинантные живые векторные ДНК-вакцины являются мощными индукторами цитотоксических Т-лимфоцитов (ЦТЛ)28,29. Для выраженного эффекта при ящуре необходим соответствующий адъювант.30 и клеточный иммунный ответ животного.
Проблеме узкого места в индуцировании стерильного и длительного иммунитета препятствует разрушение белка-хозяина, переносимого неструктурными (NS) белками, особенно 3A, поэтому не вызывает кластерной дифференцировки 8 положительный (CD8 плюс) Т-клеточный ответ из-за слабый CTL, и вирус сохраняется в организме животного.31 Рецепторы интегрина, которые опосредуют апоптоз дендритных клеток костного мозга (DC), препятствуют врожденному иммунитету хозяина.32 Guzman et al.33 и Joshi et al.34 проанализировали суррогатные ответы на уничтожение CTL, такие как пролиферация или продукция IFN клетками, экспрессирующими CD8, но многие экспрессирующие CD8 плюс лимфоциты, которые не являются ЦТЛ, продуцируют IFN, включая клетки естественных киллеров (NK) и субпопуляции гамма-дельта (δ) Т-клеток. 35–37
Согласно Oh et al.38 IFN-ответ может быть рестимулирован у вакцинированного крупного рогатого скота, у которого был обнаружен высокий уровень титра вируснейтрализующих антител в кровотоке в день заражения, что имеет прямое отношение к индуцированной вакциной защите с помощью IFN. - и нейтрализующее антитело. Кроме того, CD4 плюс Т-клетки являются основным процветающим фенотипом и клетками, продуцирующими IFN. Однако при естественной инфекции наблюдалась лимфопения, которая накладывалась на пик виремии и сывороточный IFN-ответ, в то время как in vivo число плазмоцитарных DC (pDC) и in vitro pDC IFN-секреция ненадолго снижались в течение 2 дней после заражения.39 Продукция IFN- от ДК моноцитарного происхождения (MoDC) и ДК кожного происхождения (кожного ДК) ингибируется в острой фазе инфекции свиней.40 Также была индукция апоптоза в незрелых дендритных клетках ящуром.32 синтетические олигонуклеотиды в качестве адъювантов для вакцин на слизистой оболочке были достигнуты за счет повышения продукции антител и пролиферации Т-клеток, более высокие уровни активности ЦТЛ и экспрессии IFN в Т-клетках CD8. проблемы с индуцированием стерильного и долговременного иммунитета.

Аттенуированная и инактивированная вакцина
Было предпринято много попыток улучшить живые аттенуированные ящурные вакцины с помощью традиционных методов, таких как серийное пассирование на непермиссивных животных или культивирование клеток. Аттенуация была достигнута путем пассирования нечувствительных видов, таких как мыши, кролики и яйца с эмбрионами, до потери вирулентности у крупного рогатого скота. Серийные пассажи вируса ящура C-S8c1 при высокой множественности заражения в культуре клеток привели к дефектному геному (C-S8p260), полностью защищающему мышей от летального заражения вирусом ящура C-S8c1 и безопасному для свиней после однократной вакцинации. C-S8p260.42 Он также индуцировал высокие титры нейтрализующих антител и активировал Т-клетки у свиней.42
Последовательная контактная передача высокопатогенного, адаптированного к свиньям изолята O Taiwan 97 у свиней значительно снижает вирулентность после 14-го пассажа свиней и отменяет ее после 16-го пассажа.43 Аминокислотные изменения во время пассажей in vivo представляли собой в высшей степени молчащие замены и изменения в VP1. (1D) были преходящими. Разработка вакцины против ящура у неадаптированных хозяев может спровоцировать использование агентом других клеточных рецепторов, отличных от Arg-GlyAsp (RGD), тест на налет в тесте BHK 21 может показать отрицательный результат, пока вирус не поврежден.43 Замена аминокислоты боковые цепи, расположенные рядом с межсубъединицей капсида с помощью другой аминокислоты, могут устанавливать новые дисульфидные связи или электростатические взаимодействия между поверхностями субъединиц и либо проектируются, либо инициируются, чтобы быть расходными для инфекции за счет повышения термоустойчивости вакцинных штаммов,44 с использованием современных процедур ящурных вакцин. которые в меньшей степени зависят от идеальной холодовой цепи. Штаммы вируса ящура C-S8p260 сегментированы, а также способны к репликации, что может служить основой для аттенуации вакцин с двумя барьерами безопасности.45
Большинство исследований показывают, что инактивация вируса ящура на животных моделях с использованием аминокислотной замены в 2C не была обнаружена в C-S8c1, но присутствовала в небольшой части вируса ящура, адаптированного к морским свинкам. повторная интродукция вируса, адаптированного к морским свинкам, свиньям. Эти данные показывают, как внедрение миноритарных вариантов вирусов в искусственного хозяина может привести к их доминированию при повторном заражении исходного вида-хозяина. 22
Инактивация вируса с помощью формалина и эндонуклеазы не приводит к инактивации вируса и деградации антигенных участков соответственно.48 Бинарный этиленимин (БЭИ) также использовался для аттенуации вируса при сохранении целостности капсида.15,49 БЭИ- инактивированные клеточные рецепторы ящура, интегрины, используются для прикрепления и интернализации в культивируемые клетки, взаимодействие опосредовано аминокислотным остатком, расположенным в петле GH капсидного белка VP1.49 Специфичные для ящура моноклональные антитела или синтетический пептид показали связывание BEI- инактивированные FMD были интернализованы за счет их совместной локализации с маркерным белком в BHK-21, опосредованной интегрин-связывающим мотивом RGD.50 Кроме того, BEI-инактивация не влияет на антигенность петли GH.20,51 Инактивация BEI, сохраненная архитектура вириона и рецепторы способствуют интернализации вируса в культивируемые клетки, а также in vivo опосредуются распознаванием интегрина,47,52,53 однако количественная оценка всего вируса показывает минимальный результат по сравнению с таковым для формалина. инактивация (65–71,6%), а инактивация BEI – 44,2%.49
Последовательное пассирование вируса ящура типа С от свиней и морских свинок и сохранение у свиней и мышей-сосунков приводит к заменам аминокислот (I2483T в 2C, Q443R в 3A и L1473P в VP1). Замещенная аминокислота (L1473P) рядом с интегрин-связывающим мотивом RGD подавляла рост вируса в различных клеточных линиях и изменяла его антигенность. плюс 1 и RGD плюс 4 сайты ингибируют прикрепление вируса и инфекцию, облегчаемую v 6 или v 8, но вирус использует v 3 для прикрепления к клетке. Замещения метионином или аргинином в сайте связывания являются эффективными ингибиторами для v 6. Два лейциновых остатка в точках RGD plus 1 и RGD plus 4 стабилизировали связывание в зависимости от структуры, расположенной непосредственно на С-конце RGD.20,54 Устойчивое к ЭДТА связывание с v 6 является отличительной чертой, и ожидалось, что стабильный комплекс с его клеточным рецептором будет вызывать значительную высокую инфекционность вируса ящура.21
Замена аланина лейцинами в первой и четвертой позициях в сайтах RGD плюс 1 и RGD плюс 4 приводит к ингибированию связывания вируса и прикрепления вируса к v 6 или v 8. Однако вирус использует v 3 для проникновения в клетку.20 Тогда как штаммы, адаптированные к культуре клеток, используют гепарансульфатные протеогликаны (HSPG) в качестве альтернативного рецептора. Подтверждение их эктодоменов и лиганд-связывающего состояния интегринов является важным фактором тропизма к вирусам.54
Вирусы, связывающие гепарансульфат, эффективно интернализовали ДК, но не представляли антиген лимфоцитам, индуцируя специфичный для вируса ящура ответ IgG. исключительное требование.
Селективное давление, оказываемое гуморальным иммунным ответом хозяина, играет важную роль как в селекции, так и в стабилизации антигенных вариантов вируса ящура, что приводит к изменению клеточного тропизма. Тесты in vitro показали, что параллельное пассирование ящура в присутствии субнейтрализующих гомологичных сывороток приводило к сохранению мутантов. , вирус плохо рос в клетках BHK-21 и последовательность стабильно сохранялась при размножении в клетках BHK-21, экспрессирующих интегрин бычьего V 6 (BHK3 V 6), а также в экспериментально инокулированном и контактном КРС. 0,56
Из двух независимых цепей передачи у крупного рогатого скота происходят геномные изменения из-за последовательного пассажа на BHK-21-адаптированном к клеткам (связывающем гепарансульфат) штамме ящура. Вариант дикого типа с аминокислотной мутацией в VP1 356 был быстро выбран для репликации вируса in vivo.57
Делеционные гены кодируют белок NS, который не имеет решающего значения для репликации вируса. Альтернативным методом создания живых аттенуированных вакцин является in vitro. Однако, чтобы быть полезным в качестве вакцины, этот делеционный вирус должен быть способен реплицироваться у восприимчивых животных. Преимущество этого подхода по сравнению с классическим методом аттенуации, который обычно вводит мутации в ограниченное число сайтов, заключается в том, что риск реверсии к вирулентности значительно снижается58, а NS-белки являются потенциальными Т-клеточными эпитопами.59
Эффект был продемонстрирован на генетически модифицированных штаммах вакцины против ящура с некоторыми заменами аминокислот в антигенных участках, с такими же свойствами роста, как и у дикого вируса, которые, как доказано, полностью защищают животное от заражения, но со способностью к репликации in vitro.60
Экстренная вакцина против ящура с двойным масляным адъювантом показала снижение виремии и затенения вируса и не показала клинических признаков. У вакцинированных животных наблюдалось постоянное обнаружение IL-6, IL-8 и IL-12.61 В то время как другие цитокины IL-1, IL-2, TNF , TGF и интерфероны не обнаружены; это свидетельствует о том, что вакцина не вызывала системного воспалительного ответа, а также системного повышения активности Т-лимфоцитов, что связано с кратковременной защитой от ящура.61
Рекомбинантный человеческий IL-2 является мощным индуктором гуморального иммунитета в мышиной модельной вакцине против ящура. }} и IL-12) увеличились после вакцинации.63
Пустые вирусные капсиды
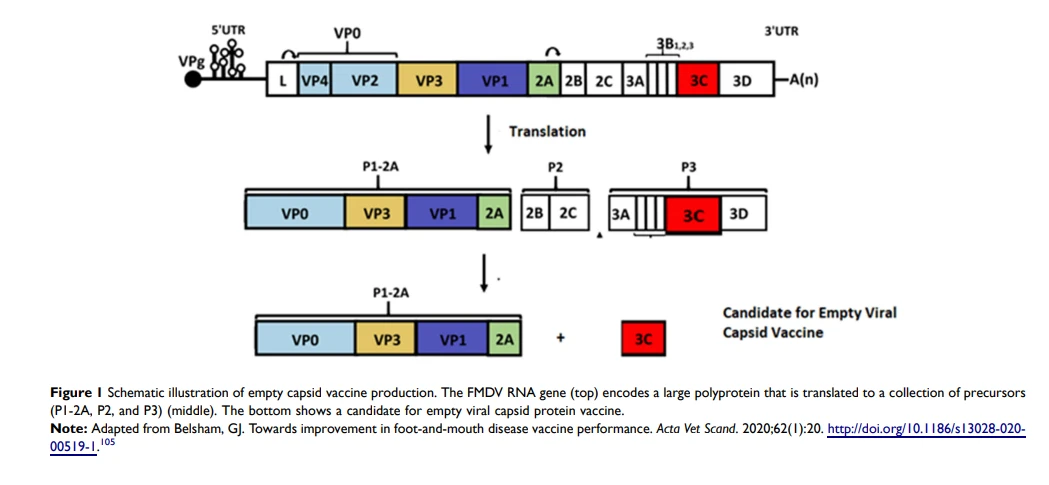
Пустые вирусные капсиды, также известные как вирусоподобные частицы (ВПЧ), содержат весь репертуар иммуногенных участков, обнаруженных в интактных вирусах, но лишены инфекционных нуклеиновых кислот и включают клонирование вирусного генома, необходимого для синтеза, процессинга и сборки вирусных клеток. структурные белки в пустые вирусные капсиды (гены, кодирующие P1-2A и 3C, рис. 1).64 Пустые капсиды естественным образом продуцируются in vitro в клеточной культуре, антигенно сходны и иммуногенны.65
Использование вакцины с пустым капсидом является многообещающим кандидатом, поскольку позволяет избежать использования вируса в производстве вакцины и сохраняет конформацию эпитопов.45 Кроме того, отсутствует риск реверсии вируса и рекомбинации с дикими штаммами. Клетки млекопитающих, растущие в суспензии без сыворотки, использовались для транзиторной экспрессии генов (TGE) рекомбинантных пустых капсидов вируса ящура.66 Идентификация вакцинированных от инфицированных или выздоравливающих животных легко проводится с использованием доступных в настоящее время технологий.67–69

Субъединичная вакцина
Субъединичная вакцина содержит вирусные антигены, собранные путем химической экстракции или биоэкспрессии минимального количества невирусных антигенов в культуральной среде.70 Исследователи обнаружили, что VP1 является одним из капсидных белков вируса ящура, который подвергался значительному воздействию на поверхность в 1970-х годах. и последние достижения структурной вирусологии.71
Генная инженерия использовалась для мутации частей генома или удаления кодирующей белок области VP1 в недавних попытках создать аттенуированные вакцины. Используя рекомбинантную ДНК, был сконструирован вирус с сайтом связывания рецептора RGD на удаленном VP1 вируса ящура. вызвать инфекцию.73
Капсидный белок VP1 вируса ящура и карбоксиконцевая область VP1 имеют высокоиммуногенную петлю G-H, соответствующую В-клеточным эпитопам. Химически синтезированный пептид, состоящий из областей (остатки 141–158) белка оболочки вируса (VP1) серотипа О ящура, вызывает высокие уровни нейтрализующих антител и защищает крупный рогатый скот от интрадермолингальной инокуляции инфекционного вируса,24 что свидетельствует о важности G –H петля в индукции гуморального иммунного ответа. VP1 также содержит гипервариабельную область и иммуногенный сайт; использование сайта могло бы стать основой для широкой иммуногенности.74
Включение IFN в качестве генетического адъюванта привело к задержке появления клинических признаков и начала виремии.75 Рекомбинантный бакуловирус тутового шелкопряда, который кодирует протеазы P1-2A и 3C вируса ящура Asia 1, был способен продуцировать специфические антитела. у вакцинированных животных и защищенных после заражения вирулентным гомологичным вирусом, а клинические симптомы облегчались и задерживались.64
Однократная доза дефектного аденовируса 5 (Ad5), содержащего P1 и кодирующую область 3C вируса ящура серотипа A (Ad5A24), индуцировала нейтрализацию антител и защиту свиней от гомологичного заражения.76 Однако влияние на клеточное иммунное плечо не исследовалось. .
Как для вируса коровьей оспы, так и для бакуловирусной экспрессии пустых капсидов A-серотипа; содержащих рационально сконструированные мутации, в эукариотических клетках была повышена стабильность.77 Этот метод получения вакцинного антигена имеет несколько перспективных преимуществ по сравнению с существующими технологиями с точки зрения производственных затрат, риска инфекции и термоустойчивой вакцины.45
Вектор аденовируса человека типа 5, экспрессирующий капсидный белок (P1-2A и мутированную вирусную протеазу 3C), обеспечивает значительный гуморальный, клеточный и слизистый иммунитет, проявляющийся у мышей BALB/c. Вакцинация морских свинок выявила значительное количество нейтрализующих антител и антител иммуноглобулина А (IgA) против ящура со 100-процентной защитой морских свинок от заражения.78
Рекомбинантный собачий аденовирус типа 2 (CAV2), экспрессирующий капсидные белки (P1/3C) (рис. 1), был способен вызывать сильный гуморальный иммунный ответ у морских свинок. Однако собачий аденовирус типа 2 (CAV2), экспрессирующий белок VP1, не вызывал устойчивого ответа антител у морских свинок или мышей.79
Свиньи, вакцинированные аденовирусом 5 с энхансером цитомегаловируса, кодирующим A24-2B (Ad5-CI-A24-2BC), установили пиковый ответ нейтрализующих антител к 7–14 дпв и вызвали более высокую продукцию IgM в 7 dpi.14 Модифицированный цитомегаловирусный промотор повышал эффективность вектора и усиливал инфицирование клеток в клеточной культуре, группа, получавшая вакцину, была полностью защищена после контрольного заражения.14
Внутримышечная инокуляция мышей рекомбинантным рекомбинантным капсидным белком бакуловируса ящура, клонированным с цитомегаловирусным ранним энхансером в качестве промотора (CMV-IE), и областью, кодирующей Т-клеточный иммуноген с Т-клеточными эпитопами, эффективно индуцировала нейтрализующие антитела и гамма-интерферон. IFN- ).80 Кодирующие области P1- 2A и 3C ящура серотипа A, экспрессированные в куколках тутового шелкопряда (Bombyx mori), были способны индуцировать высокие титры специфических антител и полностью защищали от заражения вирулентным гомологичным вирусом.81
Система множественных антигенных пептидов обладает высокой иммуногенностью по сравнению с одним линейным пептидом вакцинных антигенов ящура.82 Синтетические дендримерные пептиды, содержащие две копии основного антигенного сайта В-клеток ящура [VP1 (140–158)], ковалентно связанные к гетеротипическому антигенному сайту Т-клеток из неструктурного белка 3A [3A (21–35)], как было показано, защищает свиней от заражения вирусом.83 Дендримерный пептид, воспроизводящий гетеротипический и высококонсервативный вирус ящура 3A (21–35) Т-клеточный эпитоп также улучшил реакцию нейтрализующих антител и IFN-84. У 70% свиней, вакцинированных B2T, полная защита (отсутствие клинических признаков заболевания) наблюдалась при заражении вирусом на 25-й день после иммунизации.84
ДНК-вакцины
У вируса энцефаломиокардита (EMCV) внутренний сайт входа в рибосому (IRES) был делетирован, а ген L, который участвует в отключении клеток путем протеолиза eIF46,85, был удален, а IRES EMCV, который, как было показано, увеличивает эффективность экспрессии, был удален. была вставлена выше последовательностей P1.86 ДНК-вакцина, кодирующая P1-2A и GM-CSF, в качестве индуцированного адъювантом надежного специфического и нейтрализующего антитела к вирусу ящура, а также поддерживающего цитокины IL-8 и производство IFN у свиней.87
ДНК-вакцины на основе вирусных мини-генов, соответствующих трем основным В- и Т-клеточным эпитопам вируса ящура: VP1 (аминокислотная последовательность 133–156) -3A (аминокислотная последовательность 11–40) и VP4 (20–34) защищать мышей при отсутствии специфических антител во время заражения.88
Интраназальное введение ДНК-вакцины ящура; использование хитозана в качестве средства доставки и IL-15 в качестве молекулярного адъюванта индуцирует слизистый и системный иммунный ответ с усиленным клеточно-опосредованным иммунитетом (CMI), о чем свидетельствует более высокий уровень пролиферации Т-клеток, ответ ЦТЛ, и экспрессия IFN- как в CD4 плюс, так и в CD8 плюс Т-клетках. 73
У мышей, вакцинированных плазмидой, экспрессирующей VP1 и IL9 в качестве генетического адъюванта, и с активированным антиапоптозным механизмом, развился сильный гуморальный ответ, высокий уровень IFN- и перфорина в CD8 плюс Т-клетках, но не IL{{6} } в этих Т-клетках. IL-9 активировал экспрессию гена Beclin и предотвращал апоптоз Т-клеток.89
Другое исследование показало, что ДНК-вакцина VP1, экспрессирующая интерлейкин -6 и IFN-, используемые в качестве молекулярных адъювантов, улучшают антиген-специфические клеточно-опосредованные ответы. Он также индуцировал высокий титр IgG2a/IgG1, IFN-, IL-4 и созревание дендритных клеток.90
Использование IL-2 в качестве генетического адъюванта в ДНК-вакцине, кодирующей два эпитопа VP1 вируса ящура (аминокислотные остатки 141–160 и 200–213), включающие несколько эпитопов, должно вызывать как пролиферацию Т-клеток, так и нейтрализующие антитела против ящура у свиней. с использованием IL-2 в качестве генетического адъюванта.91,92
Свиньи, иммунизированные плазмидой ДНК-вакцины против ящура, кодирующей P1-2A3C3D, и плазмидой, экспрессирующей свиной «фактор активации B-клеток, принадлежащий к семейству TNF» (BAFF), способствовали активации созревания B-клеток и переключению класса иммуноглобулина93.
ДНК-вакцина на основе реплик с регулярной ревакцинацией представляет собой эффективную стратегию вакцинации против ящура94. Включение различных антигенных мишеней в ДНК-вакцины — идеальный способ сделать смесь антигенов в одной вакцинной формуле. Мыши, иммунизированные тремя плазмидами, кодирующими антиген вируса ящура (FMDV), вируса псевдобешенства (PRV) и вируса классической чумы свиней (CSFV), показали многообещающие результаты.95
Внутримышечная инокуляция морских свинок ДНК-плазмидами, экспрессирующими вирус ящура, содержащими сигнальную последовательность инокулированного свиного гена IgG, показала реакцию нейтрализующих антител и увеличение пролиферации клеток селезенки после бустерной стимуляции, но животные не были защищены от заражения вирусом.96
ДНК-вакцина, кодирующая Т-клеточный эпитоп и В-клеточные эпитопы из участков 135–167 VP1, а участок 1 включает участки 141–160 (петля G–H) и карбоксильный конец VP1 вируса ящура типа О, вызывает сильный клеточный иммунный ответ. по данным анализа пролиферации Т-клеток.97
Интраназальная доставка ДНК-вакцины против ящура, кодирующей капсидный белок, катионный PLGA (поли(лактид-ко-гликолид) в качестве носителя и бычий IL-6 в качестве генетического адъюванта, показала усиленный слизистый и системный иммунный ответ у вакцинированных животных.98
ДНК-вакцина, экспрессирующая капсидный белок (P1-2A, 3C и 3D), примированная pGM-CSF и усиленная инактивированным антигеном вируса ящура, показала значительный уровень кросс-серотипной реактивности у вакцинированных свиней. Значительный уровень кросс-серотипной реактивности был зарегистрирован против A, C и Asia1 в тестах нейтрализации вируса и ELISA. мыши.72
ДНК-вакцина, экспрессирующая VP1 вместе с IL-15 (молекулярный адъювант), усиливала секретируемый слизистой оболочкой IgA и сывороточный IgG и клеточно-опосредованный иммунитет (CMI), о чем свидетельствуют более высокие уровни пролиферации антиген-специфических Т-клеток, цитотоксических Т-лимфоцитов. (CTL) ответ и более высокая экспрессия IFN- как в CD4 плюс, так и в CD8 плюс Т-клетках, информирующих участки селезенки и слизистой оболочки.73
Рекомбинантные вакцины получают путем рекомбинации суперсемейства Ig-хозяина и вирусных эпитопов, улучшающих гуморальный и клеточный иммунный ответ вакцинированных животных. РНК-вакцины являются мощными переключателями класса IgG, в дополнение к этому у вакцинированных мышей также наблюдался высокий титр IgM.100 Плазмидная ДНК, содержащая эпитопы ящура, имеет идеальное распределение в тканях мышей.101
Проблемы в индукции длительного иммунитета
Наблюдается значительное изменение субпопуляций Т-лимфоцитов, функциональной компетентности и количества после инфицирования различными серотипами ящура.102 Существует отрицательная регуляция boCD4 plus и boCD8 plus T-клеток в течение 48 часов после заражения (pi). Однако снижение активности boWC1 плюс Т-клетки наблюдается вплоть до 48 л.с. при вирусе ящура серотипа О. Лимфоциты вакцинированных животных продемонстрировали значительную активацию boCD4 плюс, boCD8 плюс и boWC1 плюс Т-клетки после воздействия ящура. 102
После естественного инфицирования происходит значительное увеличение экспрессии белка 3A-NS в лимфоцитах, различающихся при разных течениях заболевания, что приводит к транзиторной иммуносупрессии CD4+ и CD8+ Т-клеток. 34
Разрушение доставки белка-хозяина белками NS, особенно 3A, полностью нарушается, поэтому не вызывает ответ CD8 плюс Т-клетки31. Из-за слабого CTL вирус сохраняется в организме животного. Интегриновые рецепторы опосредуют происходящий в костном мозге апоптоз DC, препятствуя врожденному иммунитету хозяина. 32 Другим важным явлением, влияющим на иммунитет хозяина, является Lbpro, высококонсервативный домен, который играет важную роль, ингибируя убиквитинирование ключевых сигнальных молекул в активации типа I Ответ на IFN, такой как ген I, индуцируемый ретиноевой кислотой (RIG-I), TANK-связывающая киназа 1 (TBK1), фактор 6, ассоциированный с рецептором TNF (TRAF6) и TRAF3.103 Это снижает уровень немедленного и раннего инициирования IFN. генные продукты, стимулированные мРНК и IFN. 102 Более того, 3Cpro блокирует транспорт внутрь Golgi путем деградации белка, необходимого для транспорта внутри Golgi.
Guzman et al33 и Joshi et al34 проанализировали суррогатные ответы на уничтожение ЦТЛ, такие как пролиферация или продукция IFN экспрессирующими CD8 клетками, о которых сообщалось, но многие CD8 плюс экспрессирующие лимфоциты, которые не являются ЦТЛ, продуцирующими IFN, включая NK-клетки и подмножества δ T -клетки. 35–37,39,104
Активность ЦТЛ, оцененная через 10 дней после заражения Ad5-FMDV-3C, показала значительное увеличение активности ЦТЛ через 10 дней после заражения по сравнению с контрольными уровнями, но вернулась к исходным уровням через 17 дней после заражения. 17 Однако попытка оценить активность ЦТЛ на 4-й день не дала достаточного количества клеток. Это было связано с лимфопенией и иммунопатологией, вызванной ящуром. Существует положительная связь между IFN-ответом и индуцированной вакциной защитой, помимо снижения долгосрочной персистенции вируса ящура.38
Согласно Oh et al.,38 CD4 плюс Т-клетки являются основным размножающимся фенотипом и клетками, продуцирующими IFN.
Независимо от серотипа вируса ящура, сывороточный IFN- достигал пика через 2-3 дня после заражения, лимфопения соответствовала пику виремии и сывороточного IFN-ответа, а количество циркулирующих дендритных клеток плазматических клеток (pDC) и продукция IFN-in vitro pDC временно снижались через 48 часов. Независимо от инъецированного серотипа вируса ящура или возраста пораженного животного инфекции лимфоцитов или pDC никогда не обнаруживали.39
Генерация IFN- из ДК моноцитарного происхождения (MoDC) и ДК кожного происхождения (кожного ДК) подавляется во время острой фазы инфекции свиней. Это воздействие происходит в тандеме с повышением титров вируса в крови, но продуктивно эти клетки не инфицируются. Интересно, что способность этих ДК поглощать частицы и обрабатывать антигены не меняется, демонстрируя, что антигены не влияют на их способность поглощать частицы и обрабатывать антигены.35
Заключение
Основываясь на приведенной выше литературе и пробелах в исследованиях, он предлагает следующие рекомендации. Должны быть изучены клеточная интернализация, характер гликозилирования, презентация антигена и механизмы положительной селекции (развитие патогенного штамма) традиционных вакцин. Вакцино-индуцированный CD8 плюс T CMI усиливает долгоживущий иммунный ответ и перекрестную защиту. Существует роль δ-Т-клеточных рецепторов в иммунном патогенезе, персистенции и продукции ЦТЛ, которую необходимо тщательно изучить. Рекомбинантный белок с использованием проточного цитометра и ELISpot ELISA для анализа интернализации вакцинных частиц, презентации антигена и оценки перекрестных помех антигенпрезентирующих клеток.
Необходимо разработать новые веб-инструменты, которые покажут влияние боковых цепей на В- или Т-клеточный эпитоп. Использование инфекции на животных моделях, а также разработка и испытания вакцины должны быть четко определены, потому что существует значительная разница в интегриновых рецепторах у лабораторных животных, а также у свиней и жвачных животных. Вычислительная оценка полногеномных эпитопов ЦТЛ путем интеграции инструментов предположения об эпитопах при вычислении огромного количества вирусных последовательностей и последующей оценки in vivo имеет большое преимущество для производства вакцин с долговременной защитой и возможностью перекрестной защиты.
Сокращения
3А, неструктурный белок; Ad5, вектор аденовируса 5; 3Cpro, протеаза 3C (неструктурный белок); BEI, бинарные этиленамины; Клетка BHK, клетка почки детеныша хомячка; CD4 плюс, Кластерный фактор дифференцировки четыре положительный; CD8 plus , кластерный фактор дифференцировки восемь положительный; кДНК, комплементарная ДНК; CTL, цитотоксические Т-клетки; DC, дендритная клетка; ELISA, твердофазный иммуноферментный анализ; ящур, ящур; ящур, вирус ящура; ГМ-КСФ, гранулоциты и моноциты, колониестимулирующий фактор; IFN-, альфа-интерферон; IFN-, гамма-интерферон; Ig, иммуноглобулин; ИЛ, интерлейкин; LTR, длинный терминальный повтор; NK-клетки, натуральные клетки-киллеры; белок NS, неструктурный белок; P1-2A, ген предшественника структурного белка; P1-2A3C3D, предшественник вирусного структурного белка P1–2A и неструктурных белков 3C и 3D; PBMC, одноядерная периферическая кровь; ОТ-ПЦР, полимеразная цепная реакция с обратной транскрипцией; SAT, южноафриканский тип; TGE, транзиторная экспрессия генов; TGF, фактор роста опухоли; TNF, фактор некроза опухоли; Th-клетки, Т-хелперные клетки; VP1, вирусный белок 1; δ Т-клетки, гамма-дельта Т-клетки.

Заявление об обмене данными
Данные, используемые в этом обзоре, являются вторичными и включены в статью.
Подтверждение
Я очень благодарен офису вице-президента по исследованиям и общественным работам Университета Гондара за предоставленные материалы и финансовую поддержку. Я также благодарю Колледж ветеринарной медицины и зоотехники Гондарского университета за дополнительную поддержку.
Финансирование
Автор благодарит Гондарский университет, офис вице-президента по исследованиям и общественным работам.
Раскрытие информации
Автор заявляет об отсутствии конфликта интересов в данной работе.
Рекомендации
1. Китчинг П., Хаммонд Дж., Джегго М. и др. Глобальный контроль ящура — вариант? вакцина. 2007;25(30):5660–5664. дои: 10.1016 / j. вакцина.2006.10.052
2. Раза С., Сиддик К., Раббани М. и соавт. Микробный патогенез in silico Анализ четырех структурных белков серотипов афтовирусов выявил значительные В- и Т-клеточные эпитопы. Микроб Патог. 2019; 128 (август 2018 г.): 254–262. doi:10.1016/j.micpath.2019.01.007
3. Арцт Дж., Белшем Дж.Дж. Передача ящура от персистентно инфицированного крупного рогатого скота-носителя к интактному скоту через ротоглоточную жидкость. Вет Мир. 2018;3:318. doi:10.1128/ mSphere.00365-318
4. Arzt J, Pacheco JM, Stenfeldt C. Патогенез вирулентного и аттенуированного вируса ящура у крупного рогатого скота. Вет Мир. 2017;14:89. дои: 10.1186/с12985-017-0758-759
5. Собхи Н.М., Баюми Ю.Х., Мор С.К., Эль-Захар Х.И., Гоял С.М. Вспышки ящура в Египте: молекулярная эпидемиология, эволюция и прогностическое значение сердечных биомаркеров. Int J Vet Sci Med. 2018;6(1):22–30. дои: 10.1016 / j. просто.2018.02.001
6. Сентхилкумаран С., Ян М., Биттнер Х. и др. Обнаружение генома, антигена и антител в ротовой жидкости свиней, инфицированных вирусом ящура. Can J Vet Res. 2017;81:82–90.
7. Палински Р.М., Бертрам М.Р. Первая последовательность генома вируса ящура серотипа O сублинии Ind2001e из Южного Вьетнама. Microbiol Resour объявляет. 2019;8: e01424–18. doi:10.1128/мра.01424-1418
8. Пулидо М.Р., Собрино Ф., Боррего Б. и др. Аттенуированная РНК вируса ящура, несущая делецию в 3'-некодирующей области, может вызывать иммунитет у свиней. Дж Вирол. 2009;83(8):3475–85. doi:10.1128/ОВИ.01836-08
9. Сараванан П., Икбал З., Селварадж Д.П.Р., Апарна М., Умапати В. Сравнение методов химической экстракции для определения содержания 146S в вакцине против ящура с масляным адъювантом. J Appl Microbiol. 2019; 1 (Рюкерт, 1985): 1–9. дои: 10.1111/jam.14465
10. Джамал С.М., Белшам Г.Дж. Ящур: прошлое, настоящее и будущее. Вет Рез. 2013;44(1):1–14. дои: 10.1186/1297-9716- 44-116
11. Робинсон Л., Найт-Джонс Т.Дж., Чарльстон Б. и др. Обновление глобальных исследований ящура и анализ пробелов: 7 - патогенез и молекулярная биология. Transbound Emerg Dis. 2016;63(1):63–71. doi:10.1111/tbed.12520
12. Шриниваса Б.П., Мохапатра Дж.К., Паушек С.Дж. и соавт. Рекомбинантный аденовирус человека-5, экспрессирующий капсидные белки индийских вакцинных штаммов вируса ящура, вызывает у крупного рогатого скота эффективный гуморальный ответ. Вет микробиол. 2017;203:196–201. doi:10.1016/j.vetmic.2017.03.019
13. Нейлан Дж.Г., Шутта С., Баррера Дж. и соавт. Эффективность субъединичной вакцины серотипов А вируса ящура, переносимого аденовирусом, у крупного рогатого скота с использованием модели прямой контактной передачи. BMC Vet Res. 2018;14(1):1–9. дои: 10.1186/с12917-018- 1582-1
14. Пена Л., Пирес М., Костер М. и соавт. Доставка антигена пустой капсидной субъединицы вируса ящура с неструктурным белком 2В улучшает защиту свиней. вакцина. 2008;26 (45):5689–5699. doi:10.1016/j.vaccine.2008.08.022
15. Бартелинг С.Дж., Кассим Н.И. Очень быстрая (и безопасная) инактивация вируса ящура и энтеровирусов комбинацией бинарного этиленимина и формальдегида. Дев Биол (Базель). 2004; 119: 449–455.
16. Rweyemamu MM, Umehara O, Giorgi W, Medeiros R, Neto DL, Baltazar M. Влияние формальдегида и бинарного этиленимина (BEI) на целостность капсида вируса ящура. Rev Sci Tech. 1989;8(3):747–764. doi: 10.20506/rst.8.3.425
17. Патч Дж. Р., Кенни М., Пачеко Дж. М., Грубман М. Дж., Голд В. Т. Характеристика функции цитотоксических Т-лимфоцитов после заражения вирусом ящура и вакцинации. Вирус Иммунол. 2013;26(4):239–249. doi: 10.1089/vim.2013.0011
18. Родригес-Кальво Т., Охоснегрос С., Санс-Рамос М., Гарсия-Арриаза Дж., Эскармис С., Доминго Э., Севилья Н. Новый дизайн вакцины на основе дефектных геномов, сочетающих в себе черты аттенуированных и инактивированных вакцин. ПЛОС Один. 2010;5(4):1–11. doi:10.1371/журнал.pone.0010414
19. Núñez JI, Baranowski E, Molina N, et al. Кислотная замена в неструктурном белке 3А может опосредовать адаптацию вируса ящура к морской свинке. Дж Вирол. 2001. doi:10.1128/JVI.75.8.3977-3983.2001
20. Берман А., Кларк С., Абресиа НГА и др. Специфичность петли VP1 GH вируса ящура к интегринам v6. Дж Вирол. 2006;80(19):9798–9810. doi:10.1128/ОВИ.00577-06
21. Дикара Д., Бурман А., Кларк С. и др. Вирус ящура образует высокостабильный, устойчивый к ЭДТА комплекс со своим основным рецептором, интегрином v 6: последствия для инфекционности. Дж Вирол. 2008;82(3):1537–1546. doi:10.1128/ОВИ.01480-07
22. Доминго Э., Шелдон Дж., Пералес С. и др. Эволюция вирусных квазивидов. Microbiol Mol Biol Rev. 2012;76(2):159–216. doi:10.1128/MMBR.05023-11
23. Маккенна Т.С., Луброт Дж., Ридер Э. и др. Вирус ящура с удаленным сайтом связывания с рецептором защищает крупный рогатый скот от ящура. Дж Вирол. 1995;69(9):5787–5790. doi:10.1128/jvi.69.9.5787-5790.1995
24. Димарчи Р., Брук Г., Гейл С., Крэкнелл В., Доэль Т., Моват Н. Защита крупного рогатого скота от ящура с помощью синтетического пептида. Наука. 1986 год; 232: 639–641. дои: 10.1126/наука.3008333
25. Гомес Н., Салинас Дж., Эскрибано Дж. М. и др. Защитный иммунный ответ на вирус ящура с экспрессией VP1 в трансгенных растениях Защитный иммунный ответ на вирус ящура с экспрессией VP1 в трансгенных растениях. Дж Вирол. 1998; 72: 2–5.
For more information:1950477648nn@gmail.com
Вам также может понравиться
-

Органический порошок экстракта цистанхе
-

Порошок экстракта центеллы азиатской
-
Экстракт Cistanche Tubulosa Натуральный порошок добавки
-

Преимущества цистанхе Эффекты цистанхе Побочные эффекты ц...
-

Cistanche Пищевая добавка Антиоксидантная поддержка Фенил...
-

Цистанхе Пищевая добавка Энергообеспечение Фенилэтаноиды ...