Влияние гестационного потребления с низким содержанием белка на экспрессию микроРНК эмбриональной почки и в клетках-предшественниках нефрона плода мужского пола
Mar 08, 2022
Введение
Недостаток нутриентов может приводить к сигнальным изменениям опорных путей на разных этапах внутриутробного развития, что может привести к необратимым органным и системным нарушениям во взрослом возрасте [1]. Фетальное программирование относится к любому нарушению во время развития, которое оказывает долгосрочное воздействие на структуру или функцию организма [2]. Нарушения в программировании плода приводят к низкой массе тела при рождении, меньшему количеству нефронов и повышенному риску сердечно-сосудистых ипочечныйрасстройства во взрослом возрасте [3–6]. Исследования других авторов и нас продемонстрировали меньшую массу тела при рождении, на 28% меньше нефронов,почечныйвыведение солей, хроническийпочечная недостаточность, и артериальная гипертензия при гестационном низкобелковом (LP) потреблении по сравнению со стандартным (NP) потреблением белка у потомства во взрослом возрасте [3-7]. Нефрогенез включает жесткий контроль экспрессии генов, синтеза белка и ремоделирования тканей. Исследования показали, что количество нефронов определяется взаимодействием между зачатком мочеточника (UB) и клетками-предшественниками мезенхимы метанефроса (MM) [8-10]. Сигналы от ММ индуцируют стимулированный УБ рост и разветвление системы канальцев. В свою очередь, пролиферация и дифференцировка ММ, составляющих мезенхимальный колпачок (КМ), опосредована концами МБ [11].

CISTANCHE УЛУЧШИТ ЗАБОЛЕВАНИЕ ПОЧЕК / ПОЧЕК
Серьезный интерес вызывает роль эпигенетических изменений, касающихся долгосрочных эффектов пренатального стресса на развитие плода [12]. МикроРНК (миРНК) представляют собой небольшие некодирующие РНК длиной около 22 нуклеотидов, кодируемые геномом, и играют важную роль в посттранскрипционной регуляции экспрессии генов-мишеней [13–16]. miRNAs контролируют экспрессию генов посттранскрипционно, регулируя трансляцию мРНК или стабильность в цитоплазме [17, 18]. Функциональные исследования показывают, что miRNAs участвуют в критических биологических процессах во время развития и в физиологии клеток [13, 16]. Изменения их экспрессии наблюдались при ряде патологий [16, 19]. Таким образом, характеристика микроРНК помогла понять регуляцию генов и клеточную пролиферацию, дифференцировку и апоптоз, а также объяснить патофизиологические нарушения, в том числепочкарасстройств [20–22]. Исследования показали, что во времяпочкаОнтогенез miRNAs незаменим для развития нефрона [23-26]. Более того, недостаточная экспрессия некоторых миРНК в клетках-предшественниках ММ снижает клеточную пролиферацию, что приводит к ранней дифференцировке и, следовательно, к уменьшению числа нефронов [27, 28]. Это явление характеризуется усиленным апоптозом и высокой экспрессией Bim в клетках-предшественниках [27]. Таким образом, miRNAs модулируют баланс между апоптозом и пролиферацией этих метанефрических первичных клеток [29].
Мы предположили, что неизвестные эпигенетические изменения и профилирование экспрессии микроРНК связаны спочканарушения развития у потомства с дефицитом белка у матери. Таким образом, мы стремились оценить паттерны микроРНК и предсказать экспрессию генов в плодах.почкана 17-й день беременности (17-DG) у потомства мужского пола с ограниченным содержанием белка для выявления молекулярных путей и нарушений, связанных спочечныйпролиферация и дифференцировка клеток во времяпочкаразработка.
Ключевые слова:почечная недостаточность; почечные трубчатые; почечные расстройства; развитие почек; почка
Материал и методика
Животные и диетыЭксперименты были проведены, как подробно описано ранее [5, 6], на одновозрастных самках и самцах сиблинговых крыс Wistar HanUnib (250–300 г), происходящих из племенного поголовья, поставляемого CEMIB/UNICAMP. , Кампинас, СП, Бразилия. Окружающая среда и жилье создавали подходящие условия для управления своим здоровьем и благополучием во время экспериментальной процедуры. Сразу после отъема в возрасте трех недель животных содержали при контролируемой температуре (25°C) и условиях освещения (07:00–19:00) при свободном доступе к водопроводной воде и стандартному корму для лабораторных грызунов (Purina Nuvital). , Куритиба, PR, Бразилия: содержание Na plus: 135 ± 3 мкэкв/г; содержание K plus: 293 ± 5 мкэкв/г) в течение 12 недель до осеменения. Институциональный комитет по этике использования животных в Государственном университете Сан-Паулу (#446-CEUA/UNESP) одобрил экспериментальный протокол, и на протяжении всего исследования соблюдались общие правила, установленные Бразильским колледжем экспериментов на животных. День 1 беременности определяли как день, когда в вагинальном мазке обнаруживались сперматозоиды. Затем самок содержали вволю на протяжении всей беременности на изокалорийном лабораторном корме для грызунов либо со стандартным содержанием белка [NP, n=36] (17 процентов белка), либо с низким содержанием белка [LP, n=51. ] (6 процентов белка). Потребление пищи матерями NP и LP определяли ежедневно (впоследствии нормировали на массу тела), а массу тела самок регистрировали еженедельно в обеих группах. На 17-й день беременности (17-DG) самок анестезировали кетамином (75 мг/кг) и ксилазином (10 мг/кг) и обнажали матку. Плоды были удалены и немедленно умерщвлены обезглавливанием. Плоды взвешивали и собирали хвост и конечности для определения пола. Метанефрос был собран для секвенирования следующего поколения (NGS), RT-qPCR и иммуногистохимического анализа.
CISTANCHE УЛУЧШИТ ПОЧЕЧНУЮ НЕДОСТАТОЧНОСТЬ
Определение полаНастоящее исследование проводилось только на потомстве мужского пола 17-DG, а определение пола проводилось с помощью стандартного анализа последовательности Sry стандартной ПЦР (полимеразной цепной реакции). ДНК экстрагировали ферментативным лизисом с протеиназой К и фенол-хлороформом. Для реакции использовали Master Mix Colorless-Promega с условиями циклирования, указанными производителем. Компания Integrated DNA Technologies (IDT) синтезировала следующие последовательности праймеров: Прямая: 5'-TACAGCCTGAGGACATATTA-3'Обратная: 5'-GCACTTTAACCCTTCGATTAG-3'.
Общая экстракция РНКРНК экстрагировали из NP (n=4) и LP (n=4) целиком.почкис использованием реагента Тризол (Invitrogen), согласно инструкции производителя. Общее количество РНК определяли по поглощению при 260 нм на спектрофотометре nanoVue (GE Healthcare, США). Целостность РНК обеспечивали получением числа целостности РНК — RIN > 8 на биоанализаторе Agilent 2100 (Agilent Technologies, Германия) [30].
miRNA-Seq и анализ данныхСеквенирование проводили на платформе MiSeq (Illumina). Протокол следовал инструкциям производителя, доступным вВкратце, секвенирование включает создание библиотеки, и для этого использовали 1 мкг тотальной РНК. На этом этапе подключаются адаптеры 3' и 5'. После лигирования адаптеров проводили реакцию обратной транскрипции для создания кДНК. Затем ее амплифицировали с помощью стандартной реакции ПЦР, в которой используются праймеры, содержащие индекс последовательности для идентификации образца — эта библиотека кДНК подвергалась электрофорезу в агарозном геле для выделения миРНК. После количественного определения концентрацию библиотеки нормализовали до 2 нМ, используя 10 нМ Tris-HCl, pH 8,5, и проводили секвенирование транскриптома с помощью MiSeq Reagent Kit v2 (50 циклов).
Анализ данных был выполнен в сотрудничестве с Тао Ченом, доктором философии. из отдела генетической и молекулярной токсикологии Национального центра токсикологических исследований, Джефферсон, Арканзас, США. Данные секвенирования микроРНК следующего поколения (NGS) были сгенерированы в формате FASTA и импортированы в BaseSpace.com (Illumina, США). Качество данных оценивали с помощью базового программного обеспечения CASAVA, разработанного производителем (Illumina). Анализы были выполнены с помощью анализа микроРНК BaseSpace (из Университета Турина, Канада) и картирования последовательностей различных микроРНК с помощью малых РНК (Illumina, США) для генома крысы. Исследование дифференциально экспрессируемых микроРНК анализировали с помощью программного обеспечения Ingenuity Pathway Analysis (Ingenuity, США).
проверка экспрессии микроРНКВ каждой группе для миРНК использовали четырех потомков мужского пола из разных пометов (miR{{0}}p, -144-3p, -298-5p, let-7a{{ 4}}p, -181a-5p, -181c-3p и -199a-5p) анализ экспрессии. Вкратце, 450 нг РНК подвергали обратной транскрипции без предварительной амплификации с использованием набора TaqMan1 Micro RNA Reverse Transcription Kit в соответствии с рекомендациями производителя. Комплементарную ДНК (кДНК) амплифицировали с использованием TaqMan MicroRNA Assays (Life Technologies, США) с TaqMan1 Universal PCR Master Mix, No AmpErase1 UNG (2x) на системе ПЦР в реальном времени StepOnePlusTM (Applied BiosystemsTM) в соответствии с инструкциями производителя. Анализ данных проводили с использованием относительной экспрессии генов, оцениваемой методом сравнительного количественного определения (Pfaffl, 2001). На основании анализа стабильности в качестве эталонного гена использовали мяРНК U6 и скаРНК U87. Все относительные количественные оценки были оценены с использованием программного обеспечения DataAssist, версия 3.0, с использованием метода ΔΔCT. Данные микроРНК были получены в соответствии с рекомендациями MIQE [31].

CISTANCHE УЛУЧШИТ ФУНКЦИЮ ПОЧЕК / ПОЧЕК
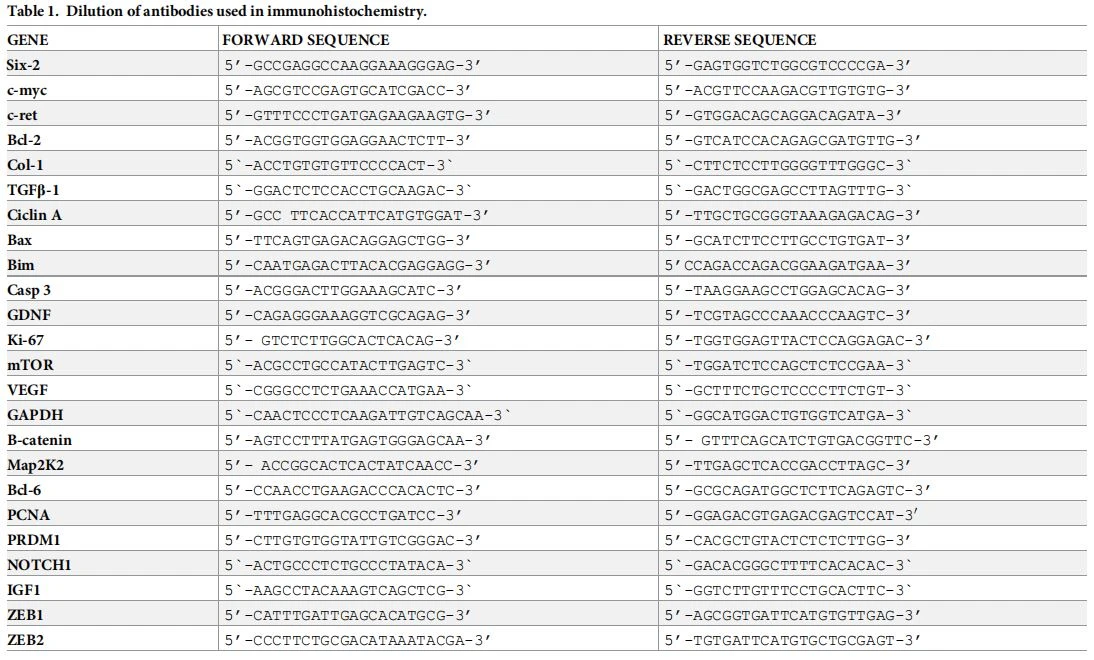
RT-qPCR предсказанных генов-мишенейДля синтеза кДНК использовали набор для обратной транскрипции кДНК High Capacity (Life Technologies, США). Реакции RT-qPCR для Bax, Bim, каспазы -3, коллагена 1, GDNF, PCNA, TGF -1, Bcl-2, Bcl-6, c-Myc, c -ret, циклин А, Map2k2, PRDM1, Six-2, Ki-67, MTOR, -катенин, ZEB1, ZEB2, NOTCH1 и ген IGF1 проводили с помощью SYBR Green Master Mix (Life Technologies, США). ), предоставленный компанией IDT1 Integrated DNA Technologies (таблица 1). Реакции проводили в общем объеме 20 мкл с использованием 2 мкл кДНК (разведение 1:30), 10 мкл SYBER Green Master Mix (Life Technologies, США) и по 4 мкл каждого конкретного праймера (5 нМ). Амплификацию и обнаружение проводили с использованием системы ПЦР в реальном времени StepOnePlusTM (Applied BiosystemsTM). Значения Ct были преобразованы в относительные значения экспрессии с использованием метода ΔΔCt с данными метанефроса потомства, нормализованными с помощью GAPDH в качестве эталонного гена [32].
Иммуногистохимия,Плод (n {{0}} на группу) удаляли и немедленно фиксировали в 4-процентном параформальдегиде (0,1 М фосфата, pH 7,4). Материалы были обезвожены, диафанизированы и включены в парапласт, а блоки были разрезаны на срезы толщиной 5- мкм. Гистологические срезы депарафинизировали и обрабатывали для иммунофлуоресценции и иммунопероксидазы. Разделы были
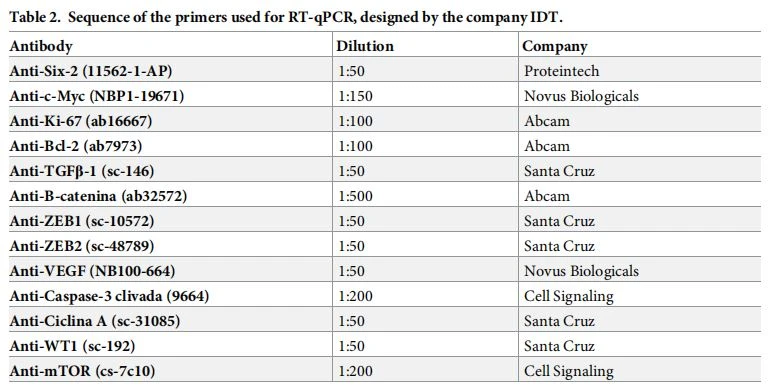
инкубируют с блокирующим раствором (8% фетальной бычьей сыворотки, 2,5% бычьего альбумина и 2% сухого обезжиренного молока в PBS). Затем вводят первичное антитело (анти-Six-2), разведенное в PBS, содержащем 1% обезжиренного молока, в течение ночи в холодильнике. После промывки PBS срезы инкубировали со специфическими вторичными антителами, конъюгированными с флуорофором Alexa 488, разведенными в том же буфере, содержащем 1% молока, в течение 2 часов при комнатной температуре. После последовательных промывок PBS предметные стекла накрывали покровными стеклами с использованием флуоресцентной сборочной среды Vectashield (Vector Laboratories, Inc. Burlingame). Флуоресценцию в образце регистрировали с помощью лазерной конфокальной микроскопии. Изображения были получены с помощью системы Focus Imagecorder Plus. Для белков c-Myc, Ki-67, Bcl-2, TGF -1, -катенин, ZEB1, ZEB2, расщепленных белков каспазы 3, циклина A и WT1 проводили иммуногистохимию. Предметные стекла гидратировали и после промывания в PBS с pH 7,2 в течение 5 минут проводили восстановление антигена цитратным буфером с pH 6,0 в течение 25 минут в скороварке. Слайды промывали в PBS. Затем проводили блокаду эндогенной пероксидазы перекисью водорода и метанолом в течение 10 минут в темноте. Срезы повторно промывали в PBS. Затем следовала блокировка неспецифического связывания, и предметные стекла инкубировались с блокирующим раствором (5-процентное сухое обезжиренное молоко в PBS) в течение 1 часа. Срезы инкубировали с первичным антителом (таблица 2), разведенным в 1% БСА, в течение ночи в холодильнике. После промывания PBS срезы подвергали воздействию специфического вторичного антитела в течение 2 часов при комнатной температуре. Слайды промывали PBS. Срезы выявляли с помощью ДАБ (3,3'-диаминобензидина тетрагидрохлорид, Sigma-Aldrich CO1, США). После последовательного промывания в проточной воде предметные стекла докрашивали гематоксилином, обезвоживали и накрывали покровным стеклом с использованием Entellan1. Изображения были получены с помощью фотомикроскопа (Olympus BX51) или конфокального микроскопа Zeiss LSM 780-NLO на микроскопе Axio Observer Z.1 (Carl Zeiss AG, Германия) Национального института науки и технологий по фотонике, применяемой в клетке. Биология (INFABIC) в Государственном университете Кампинаса.
Количественная оценка морфологииПарафин 5 мкмпочкасрезы анализировали с помощью программного обеспечения CellSens Dimension на фотомикроскопе (Olympus BX51).почкасрезы были доступны для определения нефрогенной области, белка CM и UB и количества клеток, окрашенных гематоксилин-эозином у плода 17-DG LP (n=5) по сравнению с потомством NP соответствующего возраста (n {{4 }}) от разных матерей. Мы количественно определили все CM и UB каждого проанализированного метанефроса (4NP и 4LP от разных матерей), и статистический анализ был выполнен с помощью t-критерия, и значения были выражены как среднее значение ± стандартное отклонение. Значение p�0.05 считалось значительным. Для статистического анализа и построения рисунков использовали GraphPad Prism v01 Software, Inc., США.
статистический анализИспользовали t-критерий, и значения выражали как среднее значение ± стандартное отклонение (SD). P�0.05 считалось значительным. Для статистического анализа и построения рисунков использовали программу GraphPad Prisma v. 01 (GraphPad Software, Inc., США).
Полученные результаты
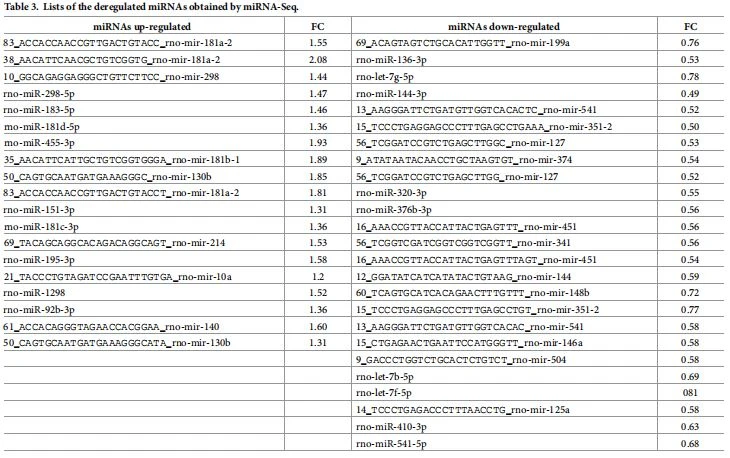
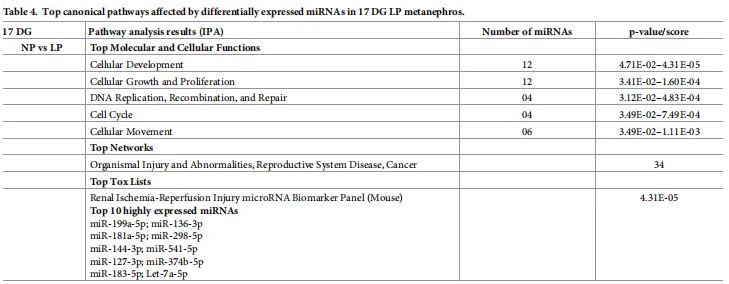
Экспрессия микроРНК с помощью miRNA-SeqЧтобы понять изменения микроРНК, связанные с материнским низким содержанием белкапочечныйпрограммирование, мы выполнили экспрессию глобального анализа профилирования микроРНК. Было идентифицировано 44 дерегуляции miRNAs (p=0.05), из которых 19 и 25 miRNAs, соответственно, были up- или down-регулируемыми (Таблица 3). МикроРНК с максимальной экспрессией и их функции, пути и сети были идентифицированы с использованием программного обеспечения Ingenuity (таблица 4).
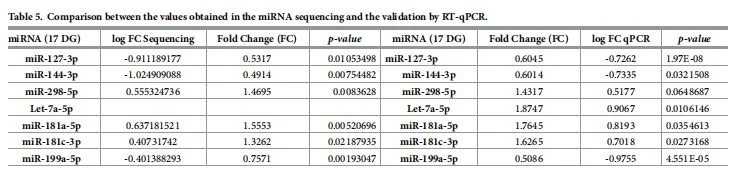
Проверка экспрессии микроРНКУ животных группы LP были активированы Let-7a-5p, miR-181a-5p, miR-181c-3p, в то время как miR-127-3p, miR-144-3p и miR-199a-5p были подавлены по сравнению с животными с NP. Результаты не показывают никакой разницы в экспрессии miR-298 при сравнении обеих групп (рис. 1). В таблице 5 показаны значения, полученные секвенированием микроРНК с данными проверки RT-qPCR. Хотя значительная разница в экспрессии микроРНК наблюдалась в LP по сравнению с потомством NP, кратность изменения (FC) проверенных микроРНК была сходной для обоих методов.

мишени миРНК-гена
Гены экспрессии предсказанных мишеней различных микроРНК, таких как Six-2, Bcl-2, PRDM1, циклин A, PCNA, GDNF, Collagen 1, Caspase 3 и Bim, при LP существенно не отличались от NP. плод. Однако экспрессия генов Bax, TGF -1 Bcl-6, c-ret, Map2k2, Ki-67, mTOR, -catenin, ZEB1, ZEB2 и IGF1 повышалась в {{15 }}Группа DG LP по сравнению с контрольной группой того же возраста. Наоборот, c-Myc и NOTHC1 подавлялись у потомства с ограниченным по материнскому белку (рис. 2).
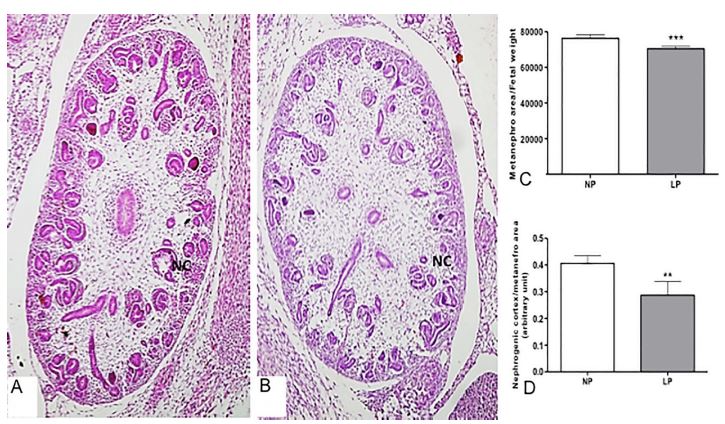
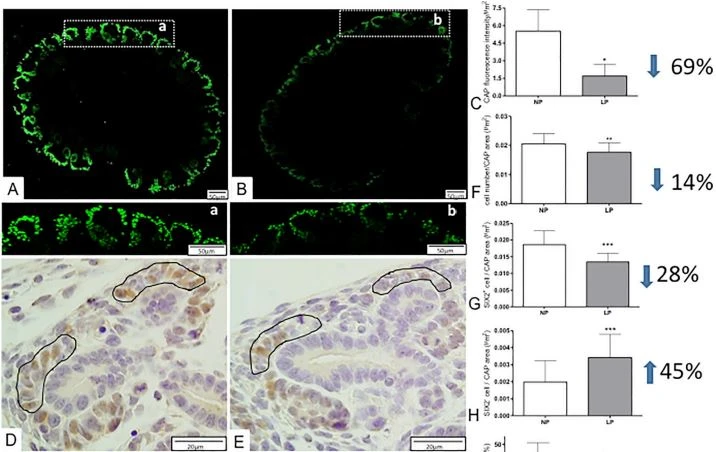
Масса тела плода и морфометрия метанефросаМасса тела 17-DG LP не отличалась от массы тела потомства NP того же возраста. Однако мезенхима метанефроса в группе LP показала уменьшение площади на 7,6% и уменьшение толщины коры на 29% по сравнению с группой NP (рис. 3).ИммуногистохимияВ настоящем исследовании плод с НП продемонстрировал значительное снижение (около 69 процентов) флуоресценции колпачка Six-2, чем потомство с НП (рис. 4).

Иммунопероксидазный анализ Six-2 продемонстрировал уменьшенное количество клеток (14 процентов) в LP CM по сравнению с 28-процентным сокращением клеток Six-2 plus по сравнению с потомством NP (рис. 4). Настоящее исследование также показало значительное процентное снижение c-Myc CM и иммуноокрашенных клеток UB (менее 14 процентов) в LP по сравнению с потомством NP (рис. 4). Кроме того, процент области, меченной Ki-67 в CM, был на 48% меньше в LP по сравнению с NP плода, в то время как иммунореактивность Bcl-2 и расщепленной каспазы-3 не отличалась от обеих групп (рис. 5 и 6). Настоящее исследование также показало значительное процентное снижение c-Myc CM и иммуноокрашенных клеток UB (менее 14 процентов) в LP по сравнению с потомством NP (рис. 4). Кроме того, процент области, меченной Ki-67 в CM, был на 48% меньше в LP по сравнению с NP плодом, в то время как иммунореактивность Bcl-2 и расщепленной каспазы-3 не отличалась от обеих групп (рис. 5 и 6). С другой стороны, в LP области, меченные CM и UB-катенином, были увеличены на 154 и 85 процентов, соответственно, по сравнению с таковыми, доступными в потомстве NP (рис. 7). В то же время распределение иммунореактивности mTOR также занимало значительно более обширную область при РП КМ (139%) и УБ (104%), чем у плода с НП (рис. 7). В потомстве LP TGF -1 в окрашивании клеток UBS увеличился (около 30 процентов), в то время как в группе CM иммуноокрашенные клетки не отличались от группы NP (рис. 8). Окрашенный метанефрос ZEB1, расположенный в ядрах клеток CM, увеличивался на 30 процентов в LP по сравнению с плодом NP (рис. 8). В то же время иммунофлуоресценция ZEB2, хотя и присутствовала во всех структурах метанефроса, была одинаковой в обеих экспериментальных группах (рис. 8). Текущее исследование с учетом экспрессии микроРНК и мРНК и белков


Обсуждение
Пополнились знания о клеточных и молекулярных механизмах нефрогенеза [33–37]. Однако многие регуляторные факторы и сигнальные пути, участвующие впочечныйонтогенез остаются неясными [38]. микроРНК играют решающую роль в регуляции экспрессии генов во времяпочечныйразвития [25, 39–41]. Насколько нам известно, анализы экспрессии миРНК и мРНК в клетках мужской мезенхимы 17-DG, потребляющих материнские LP, не проводились. Мы предлагаем новый молекулярный механизм, участвующий в ингибировании раннего нефрогенеза, что приводит к уменьшению количества нефронов. Мы использовали NGS для оценки экспрессии миРНК и обнаружили, что 19 миРНК были активными и 25 подавленными в 17-DG LP по сравнению с метанефросом NP. Среди 10 лучших дерегулируемых микроРНК мы выбрали 7 микроРНК с биологическими мишенями, участвующими в пролиферации, дифференцировке и клеточном апоптозе. Анализ данных как miRNA-Seq, так и TaqMan выявил последовательные и специфические изменения в экспрессии miRNA у животных с LP по сравнению с контрольными животными того же возраста с NP.
Семейство miR-181 состоит из четырех высококонсервативных членов, а именно miR-181a, miR-181b, miR-181c и miR-181d [ 42]. В опухолевых клетках miR-181a действует как супрессор опухоли, ингибируя клеточную пролиферацию и миграцию и индуцируя клеточный апоптоз [43]. Это исследование выявило повышенную экспрессию miR-181a-5p в 17-DG LP по сравнению с потомством NP того же возраста. Хотя экспрессия мРНК каспазы не изменилась, двукратное увеличение отношения мРНК Bax/Bcl-2 в LP по сравнению с потомством NP предполагает повышенный апоптоз в CM, указывая на то, что апоптоз регулируется посттранскрипционно. Исследования показали, что семейство BCL способствует высвобождению цитохромов из митохондрий, а затем ингибирует активацию Casp3, ингибируя тем самым клеточный апоптоз [44]. Ли и др. использовали модель острого повреждения легких, чтобы показать, что сверхэкспрессия miR-181a связана со сниженным уровнем белка Bcl-2; и наоборот, ингибирование miR-181a повышало уровни Bcl-2 [45]. Это исследование подтвердило результаты Lv et al., которые продемонстрировали, что miR-181c отрицательно регулирует экспрессию Six-2 и клеточную пролиферацию, параллельно с потерей фенотипа мезенхимальных клеток во времяпочкаразвитие в потомстве LP 17-DG [25].
Сян и др. продемонстрировали, что повышенная экспрессия miR-144 подавляетпочечныйпролиферация карциномы, что приводит к более короткой фазе G2/M. Более того, Сян и соавт. показали, что сверхэкспрессия miR-144 ингибирует экспрессию гена mTOR и белка [46]. Ниджланд и др. продемонстрировали, что увеличение передачи сигналов mTOR имеет решающее значение для определения количества нефронов у эмбрионов, чьи матери подвергались ограничению питательных веществ [47]. Мишень рапамицинового комплекса 1 (mTORC1) у млекопитающих необходима для развития эмбриона; однако то, как этот комплекс регулирует баланс между ростом и аутофагией в физиологических условиях и стрессе окружающей среды, остается неизвестным [48]. Следовательно, передача сигналов mTOR может быть вовлечена в клеточные реакции у животных, подвергшихся воздействию LP во время беременности; в восприятии, индукции и прекращении аутофагии; и в ответ на доступность внутриклеточных питательных веществ [46]. Гипотетически, при тяжелой белковой ограниченности сниженная экспрессия miR-144-3p может быть связана с повышенной экспрессией mTOR, примерно на 139% и 104% в клетках CM и UB, соответственно, чтобы компенсировать потерю нефронов в {{ 11}}Потомок DG LP Chen et al. определили miR-127 как новый регулятор клеточного старения через Bcl-6 [49]. Пан и др. сообщили, что недостаточная экспрессия miR-127 коррелирует с повышенной клеточной пролиферацией в клетках печени [50]. Это исследование показало снижение клеточной пролиферации и значительное уменьшение количества клеток, положительно помеченных Ki-67, в СМ животных с ограниченным содержанием белка. Кроме того, наблюдалось уменьшение нефрогенной области и пролиферация в потомстве LP, что согласуется с результатами Menendez-Castro et al. у 8,4% потомства с ограниченным содержанием белка [51, 52]. Таким образом, повышенная экспрессия мРНК Ki-67 и Bcl-6, сопровождающаяся снижением экспрессии miR-127-3p в кепке 17-DG LP, может быть связана с контррегуляторными механизмами для поддержания распространение.


Сан и др. продемонстрировали, что сверхэкспрессия miR-199a-5p снижает пролиферацию кистозных клеток и индуцирует апоптоз в дополнение к контролю клеточного цикла [53]. В этом исследовании экспрессия miR-199a-5p снижена в 17-DG LP, что сопровождается повышенной транскрипцией Ki-67, маркера клеточной пролиферации, и Map2k2. связан со сниженной реактивностью Ki-67 в метанефросе LP 17-DG. Таким образом, гестационное недоедание способствует дифференцировке через посттранскрипционный механизм. Примечательно, что наши результаты показывают репрессивную роль E-box с цинковыми пальцами, связывающего гомеобокс 1 (ZEB1), индуктор EMT, который поддерживает плюрипотентность стволовых клеток во время дифференцировки эмбриональных стволовых клеток. Известно, что -катенин активирует ядерную транскрипцию ZEB1, что приводит к экспрессии ZEB1 [34]. Сигнальный путь TGF, один из наиболее изученных путей, может индуцировать EMT во время эмбрионального развития. Для эмбрионального развития требуется несколько TGF-подобных лигандов. Однако не все TGF-опосредованные эффекты на EMT зависят от ZEB1/2, нокаутные клетки могут индуцировать экспрессию мезенхимальных генов фибронектина и N-кадгерина. Однако E-кадгерин больше не подавляется, и также формируются актиновые волокна [54]. Карнер и др. сообщил, что во времяпочечныйразвитие, Wnt9b/ -катенин

сигнальный путь, экспрессируемый как в UB, так и в CM, необходим как для обновления клеток-предшественников нефрона, так и для дифференцировки, он необходим для образования нефронов во время эмбриогенеза [55]. Эволюционно консервативный путь Wnt9b/-catenin играет критическую роль в развитии органов, тканей и восстановлении повреждений у многоклеточных организмов. Исследование показало, что c-Myc является транскрипционной мишенью -катенина, регулирующей пролиферацию и дифференцировкупочечныйтубулярный эпителий [56]. Экспрессия -катенина на уровне генов и белков увеличивалась в исследуемые периоды жизни.почечныйразвития у плода 17-DG LP. Пан и др. сообщили, что Myc сотрудничает с -катенином, чтобы способствовать обновлению клеток-предшественников нефрона [10]. Здесь по сравнению с потомством NP того же возраста, LP показал более низкую экспрессию c-Myc. Следовательно, у этих животных может быть меньший запас возобновляемых клеток, необходимых для пролиферации и выживания, что может отражать меньшее количество нефронов в модели LP. Более того,
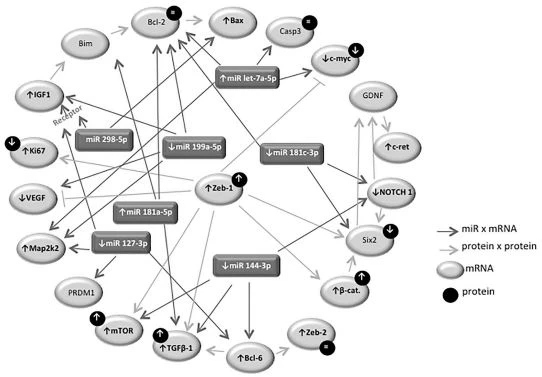
Сигнальные пути Wnt/-catenin и Notch могут координировать регуляцию экспрессии Six-2 и участвуют в подавлении экспрессии Six-2 в клетках-предшественниках нефрона. Исследования показали, что низкие уровни -катенина могут быть необходимы для поддержания экспрессии Six-2 и клеток-предшественников CM в недифференцированном состоянии; более того, повышенные уровни - catenin определяют судьбу клеток-предшественников нефрона [57, 58]. Таким образом, мы предполагаем, что снижение передачи сигналов cMyc и Notch, сопровождающееся повышенной экспрессией -катенина, снижает экспрессию Six-2 на 28 процентов у потомков 17-DG LP и коррелирует с ранней дифференцировкой клеток CM и снижением стволовых клеток и количество нефронов в зрелом возрасте. Более того, наши данные могут подтверждать, что в клетках ММ потомков LP повышенная экспрессия Let-7a-5p и -катенина и сниженный сигнал Notch могут модулировать c-Myc, Six-2, и экспрессия Ki-67, приводящая к снижению самообновления клеток-предшественников. Истощение оставшихся клеток-предшественников СМ приводит к уменьшению числа нефронов и развитию артериальной гипертензии ипочечныйрасстройства во взрослом возрасте (рис. 10). В соответствии с данными Boivin et al., наши результаты указывают на то, что повышенный уровень CM-катенина нарушает рост МП и нефрогенез [59]. Исследования показали, что фактор роста глиального нейротрофического фактора (GDNF), важный регулятор роста UB, передает сигналы через тирозинкиназный рецептор c-Ret и корецептор Gfra1 [60, 61]. В потомстве 17-DG LP значительное

увеличение мРНК, кодирующей рецептор c-Ret, теоретически может привести к увеличению роста UB. Однако в этом исследовании экспрессия GDNF не изменилась, что позволяет предположить, что, несмотря на увеличение количества мРНК cRet, ветвление UB было снижено. Ранее мы наблюдали снижение на 28,3% ветвей зачатка мочеточника после 14,5 дней гестационной белковой рестрикции [4], что может быть связано с 28-процентным снижением мечения Six-2 клеток ММ, несмотря на отсутствие изменений в GDNF. транскрипция. -катенин, вероятно, взаимодействует с рецептором c-ret и транспортируется в ядро клетки UB, способствуя экспрессии TGF -1 в эпителиальных клетках, ингибируя ветвление UB и вызывая преждевременную дифференцировку клеток-предшественников CM, как видно на {{11} } потомство DG LP [62–64]. Следовательно, GDNF может не играть существенной роли в передаче мезенхимальных сигналов к зачатку мочеточника; однако механизм еще предстоит выяснить. Действительно, мы продемонстрировали, что ММ от потомства 17-DG LP показало специфическое увеличение экспрессии Let-7 миРНК, что привело к значительному нарушениюпочкаразвития, тем самым подтверждая модулирующую роль этих генов в онтогенетических сроках нефрогенеза [65].
В первоначальных исследованиях инсулиноподобного фактора роста (ИФР) преобладающая роль ИФР -1 и -2 в росте плода была подтверждена многочисленными, но в основном косвенными доказательствами. Было обнаружено, что ИФР действуют как факторы пролиферации и дифференцировки в культивируемых фетальных клетках и преимплантационных эмбрионах. Более того, было обнаружено, что ИФР секретируются культивируемыми фетальными клетками и эксплантатами in vitro [66]. Факторы роста, включая ИФР, могут вызывать частичный или полный эпителиально-мезенхимальный переход. Активация путей IGF приводит к усилению ЕМТ за счет индукции экспрессии ZEB1 [67]. Хотя несколько факторов роста-кандидатов участвуют впочкаразвитии, участвуют ли они в нефрогенезе, неизвестно. В разное время могут понадобиться разные факторы роста. Некоторые факторы роста могут оказаться излишними в этом контексте. Во время эмбрионального развития необходимы последовательные раунды EMT и MET для дифференциации специализированных типов клеток и создания трехмерной структуры. В этом исследовании было обнаружено, что мезенхимально-эпителиальная взаимопревращаемость поддерживает клеточную пластичность, указывая на наличие высоко индуцируемой системы в условиях LP у эмбриона. Экспрессия семейства Let-7 miRNA широко изучалась в различных тканях плода. Повышение экспрессии Let-7 miRNA связано со снижением пролиферации и ранним усилением дифференцировки клеток ММ и, следовательно, со снижением количества нефронов [27, 15, 68–71]. Более высокая экспрессия Let-7 была продемонстрирована у высших организмов на последней фазе церебрального эмбриогенеза у грызунов [72, 73]. Нагалакшми и др. выявили, что экспрессия Let-7 miRNA изменила судьбу эпителиальных клеток UB от состояния предшественника до дифференцированного состояния [71]. Напротив, Ермалович и соавт. продемонстрировали, что сверхэкспрессия Lin28b, РНК-связывающего белка, связана с подавлением Let-7 микроРНК. Хотя lin28 и Let-7 являются известными регуляторами времени онтогенеза у беспозвоночных, их роль в развитии органов млекопитающих не понятна [65]. В этом исследовании увеличение экспрессии миРНК Let-7a-5p у плода с НП может быть связано со снижением пролиферации клеток CM, что ставит под угрозу нефрогенез по сравнению с группой НП. Таким образом, мы предполагаем, что подавление пролиферации клеток CM и раннее прекращение нефрогенеза, вызванное увеличением Let-7 miRNA, может происходить прямо или косвенно через временно сниженную экспрессию Lin28b в 17-DG LP. Этот эффект может значительно ухудшитьпочкаразвитие в 17-DG LP, подтверждая, что этот ген регулирует сроки развития во время нефрогенеза. В этом исследовании повышенная экспрессия Let-7a-5p микроРНК совпадает со снижением экспрессии c-Myc. Myc участвует в пролиферации, росте, апоптозе и дифференцировке клеток во времяпочечныйорганогенез [74–76]. У потомков LP 17-DG экспрессия гена MM c-Myc была снижена, а площадь иммунореактивности CM c-Myc была на 14 процентов меньше по сравнению с таковой у потомков NP. Одновременно наблюдалось 14-процентное снижение количества клеток CM, что привело к снижению 48-процентной Ki -67 иммунореактивности в LP по сравнению с потомством NP. Соответственно, исследования показали, что c-Myc играет важную роль в конечной фазе ветвления UB и в стимуляции пролиферации клеток-предшественников CM [74].
CISTANCHE УЛУЧШИТ ПОЧЕЧНУЮ ИНФЕКЦИЮ
снижает уровень в стволовых клетках, поддерживая их в недифференцированном состоянии. Однако в этом исследовании сильная экспрессия миРНК Let-7a-5p в CM подавляла экспрессию c-Myc, тем самым снижая пролиферацию клеток-предшественников и раннюю клеточную дифференцировку в LP 17-DG. потомство (рис. 10). Исследования попочкитрансгенных мышей c-Myc выявили одновременное снижение количества c-Myc и S-ix-2 иммунопозитивных клеток CM, связанное со снижением пролиферации стволовых клеток [74]. Это исследование показывает значительное (28 процентов) снижение шести-2 положительных клеток, специфическогопочечныймаркер стволовых клеток, такой как уменьшение количества нефронов, наблюдаемое в CM потомства 17-DG LP по сравнению с потомством NP. В 2009 г. Фогельгрен и соавт. продемонстрировали, что экспрессия гена Six-2 снижается во время онтогенеза плода, что связано с уменьшением числа нефронов, гипертонией и хроническимипочечная недостаточность[77]. Таким образом, сниженная экспрессия гена Six-2 в клетках-предшественниках CM указывает на подавление сигнал-индуцированной дифференцировки во времяпочечныйразвития в потомке 17-DG LP. Тем не менее, избыточность следует использовать с осторожностью — тонкие дефекты нефрогенеза могут стать очевидными при более детальном анализе или в других условиях. Уровни мРНК IGF1 были самыми высокими в начальный период развития метанефры, при этом транскрипты обнаруживались по всей ММ, тогда как их уровни снижались во время дальнейшего развития. Однако во времяпочкаВ эмбриогенезе тонкий баланс между факторами роста нефрона (IGF1) и факторами ингибирования роста (TGF -1) регулирует ветвление UB.

Вывод
Хотя несколько авторов изучали нефрогенез [34, 37, 78], мало что известно о механизмах, определяющих количество нефронов. Это исследование демонстрирует, что многие микроРНК, мРНК и белки клеток-предшественников ММ изменены в потомстве 17-DG LP, что приводит к снижению пролиферации и ранней дифференцировке клеток (Fig. 11). Этот тонкий баланс между обновлением и дифференцировкой предшественников нефрона необходим дляпочкаразвития, потому что неспособность достичь адекватного количества нефронов является фактором риска хроническогопочечныйрасстройство.