Взаимодействие фенилэтаноидных гликозидов Cistanche Tubulosa с анализом МТТ
Apr 10, 2024
1. Введение
Растение-паразитЦистанхе трубчатая(Шренк) Р. Уайт (Оробанховыесемейство) широко распространено в странах Северной Африки, арабских и азиатских стран [1]. Происходит отС. трубчатаяиС. пустыннаяважны в традиционной китайской медицине, поскольку используются для лечения импотенции, бесплодия, люмбаго и запоров, вызванных инерцией толстой кишки [2]. Кроме того, спиртовой экстрактС. трубчатаябыло показано, что он оказывает значительный защитный эффект против церебральной гипоксии у мышей [3].
Эндотелиальные клетки играют решающую роль в патогенезе гипоксической легочной гипертензии. Линия эндотелиальных клеток EA.hy926 во многом схожа с первичными эндотелиальными клетками. В ходе исследования антигипоксического действия спиртового экстракта C. Tubeulosa на эндотелиальные клетки EA.hy926 мы заметили, что 3-(4,5-диметилтиазол-2-ил){{7 }},5-Анализ дифенилтетразолия бромида (МТТ), который обычно используется для оценки жизнеспособности клеток в исследованиях цитотоксичности и цитостатической активности, дал противоречивые результаты, показав повышение жизнеспособности клеток EA.hy926 после лечения.
Точная оценка жизнеспособности клеток необходима для выявления потенциальных цитотоксических или цитопротекторных эффектов лекарственного средства. Поэтому мы исследовали, какие компоненты, присутствующие в этанольном экстракте C. Tubeulosa, могут быть ответственны за противоречивые результаты, наблюдаемые при анализе МТТ. Мы выделили два основныхфенилэтаноидные гликозиды (PhG)из спиртового экстракта C. Tubeulosa,эхинакозид (далее соединение 1) и актеозид (далее соединение 2). Мы определили их влияние на жизнеспособность клеток EA.hy926, используя различные методы. Кроме того, для дальнейшего выяснения того, какой заместитель соединений 1 и 2 может быть ответственен за противоречивые результаты, мы протестировали их агликоны, кофейную кислоту (далее соединение 3) и 3,4-дигидроксилфенилэтанол (далее соединение 4), на ЭА. Жизнеспособность клеток .hy926 с использованием тех же методов.
НАТУРАЛЬНАЯ ЦИСТАНХА TUBULOSA ДЛЯ ИНГИБИРОВАНИЯ АПОПТОЗА PHGS75% ECH 30% ACT 12%
2. Результаты и обсуждение.
2.1. Идентификация соединений
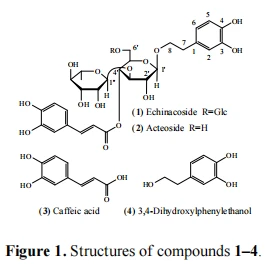
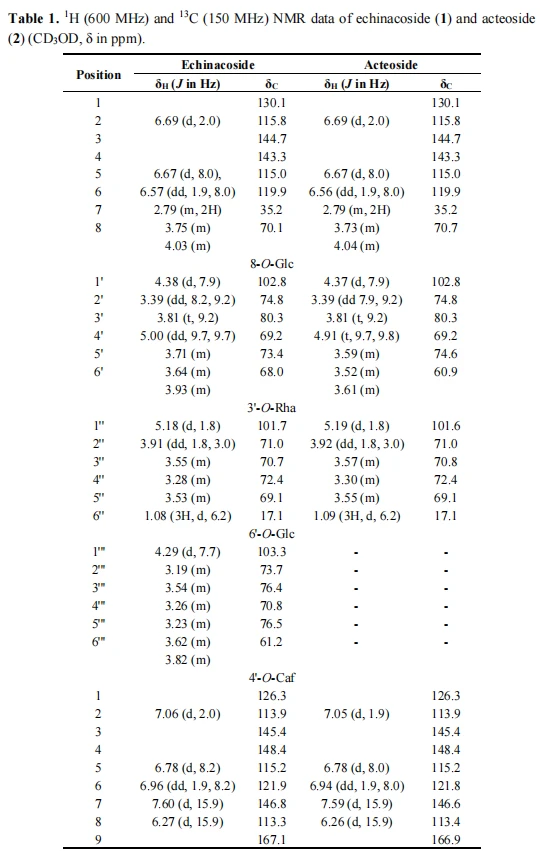
Структуры двух соединений, выделенных изСпиртовой экстракт C. Tubeulosaбыли идентифицированы методами ядерного магнитного резонанса (ЯМР) и масс-спектрометрии (МС), как показано на рисунке 1. Соединение 1 было идентифицировано как эхинакозид путем сравнения с ранее сообщенными ЯМР (таблица 1) и МС (m/z 785 [M-H ]− ) данные [4]. Спектры ЯМР соединения 2 очень похожи на спектры соединения 1, за исключением отсутствия -D-глюкопиранозильной группы (табл. 1). Соединение 2 (m/z 623 [M-H]-) было идентифицировано какактеозид[5]. Важно отметить, что оба соединения имеют один и тот же агликон, в состав которого входят кофейная кислота (соединение 3) и 3,4-дигидроксилфенилэтанол (соединение 4).
2.2. Анализы жизнеспособности клеток
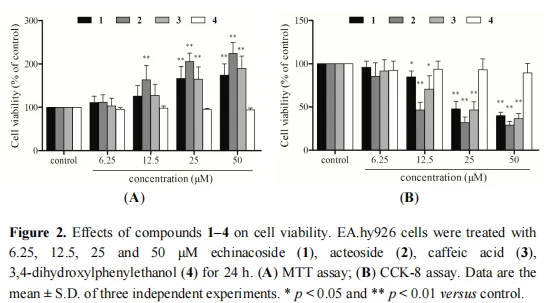
Анализы МТТ и CCK{{0}} использовали для анализа влияния соединений 1–4 на жизнеспособность клеток EA.hy926. МТТ-анализ показал, что жизнеспособность клеток EA.hy926 значительно повышалась после обработки 25 и 50 мкМ соединений 1, 2 или 3 (166,3% и 174,1% для соединения 1, 205,8% и 224,3% для соединения 2, а также 164,8% и 189,6% для соединения 3 соответственно; p <0,05) по сравнению с контрольными клетками (рис. 2А). Кроме того, морфологический осмотр клеток показал, что обработка 50 мкМ соединения 1, 2 или 3 увеличивает образование фиолетовых кристаллов формазана, которые являются прямым показателем доли живых клеток (рис. 3). И наоборот, анализ CCK-8 показал, что жизнеспособность клеток значительно снизилась после обработки 12,5, 25 и 50 мкМ соединения 1, 2 или 3 (75,5%, 45,1% и 43,7% для соединения 1, 85,5%, 51,8% и 34,3% для соединения 2 и 64,5%, 48,2% и 36,4% для соединения 3 соответственно; р <0,05) по сравнению с контрольными клетками (рис. 2Б). Соединение 4 не влияло на жизнеспособность клеток ни в анализе MTT, ни в CCK-8. Расхождение между результатами, полученными с помощью двух анализов, позволяет предположить, что один из двух анализов может неточно отражать влияние соединений 1 и 2 на жизнеспособность клеток EA.hy926.
2.3. Оценка апоптоза по Hoechst
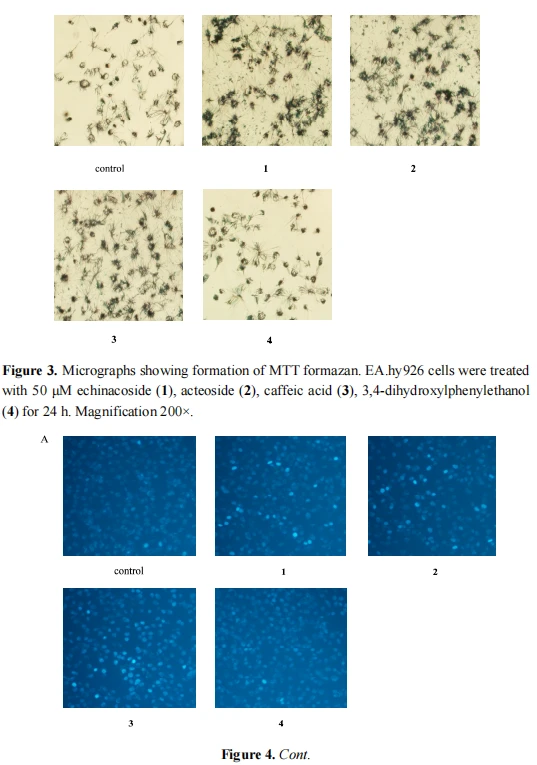
Окрашивание Hoechst 33342 представляет собой проницаемое для клеток пятно ДНК, которое возбуждается ультрафиолетовым светом и излучает синюю флуоресценцию при длине волны от 460 до 490 нм. Конденсированный хроматин апоптотических клеток окрашивается ярче, чем хроматин нормальных клеток [6]. В то время как контрольные клетки демонстрировали равномерно диспергированный хроматин, нормальные органеллы и неповрежденные клеточные мембраны, клетки, инкубированные с 50 мкМ соединений 1, 2 или 3 в течение 48 часов, демонстрировали типичное окрашивание апоптотических клеток (рис. 4А). И наоборот, воздействие на клетки 50 мкМ соединения 4 не увеличивало количество апоптотических ядер по сравнению с контрольной обработкой.
2.4. Проточный цитометрический анализ апоптотических клеток
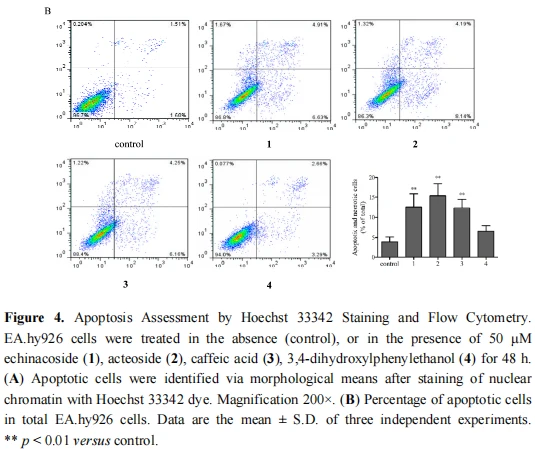
Анализ двойного окрашивания аннексина V-FITC/PI идентифицирует апоптозные клетки по высокоаффинному связыванию аннексина V-FITC с фосфатидилсерином, который экстернализируется в клетках, подвергающихся апоптозу [7]. В этом анализе жизнеспособные клетки не связываются ни с аннексином V, ни с PI и поэтому не окрашиваются (нижний левый квадрант), ранние апоптотические клетки окрашиваются в зеленый цвет за счет связывания аннексина V-FITC (нижний правый квадрант), а поздние апоптотические клетки окрашиваются в зеленый и красный цвет в результате связывания аннексина V-FITC с фосфатидилсерином и PI с некротическими клетками соответственно (верхний правый квадрант). Как показано на рисунке 4B, клетки, инкубированные с 50 мкМ соединений 1, 2 или 3 в течение 48 часов, процент апоптотических клеток увеличивался с 3,74% (контрольные клетки) до 10,32%, 12,95% и 11,30% соответственно. По сравнению с контрольными клетками соединение 4 не увеличивало процент апоптотических клеток EA.hy926.
В соответствии с результатами, полученными с помощью анализа CCK-8 и окрашивания Hoechst 33342, анализ проточной цитометрии показал, что соединения 1, 2 и 3 индуцируют апоптоз в клетках EA.hy926. В целом эти наблюдения позволяют предположить, что увеличение жизнеспособности клеток EA.hy926, наблюдаемое с помощью МТТ-анализа после обработки соединениями 1–3, представляет собой ложноположительный результат.

НАТУРАЛЬНАЯ ЦИСТАНША TUBULOSA ДЛЯ ПОВЫШЕНИЯ ИММУНИТЕТА PHGS75% ECH 30% ACT 12%
2.5. Обсуждение
В 1983 году Мосманн разработал колориметрический МТТ-анализ на микропланшетах для измерения пролиферации клеток и цитотоксичности [8]. Этот простой анализ и его модификации сейчас широко используются в лабораториях клеточной биологии по всему миру. Исследования фракционирования в клетках млекопитающих показали, что восстановленный кофактор пиридиннуклеотидов, НАДН, ответственен за большую часть снижения МТТ. Это было подтверждено исследованиями с использованием целых клеток [9]. Таким образом, снижение МТТ связано с метаболически активными клетками и связано не только с митохондриальным дыханием, но также с цитоплазмой и немитохондриальными мембранами, включая эндосомный/лизосомный компартмент и плазматическую мембрану [10]. Суммарный положительный заряд молекулы МТТ является основным фактором ее поглощения клетками через потенциал плазматической мембраны.
Примечательно, что анализ МТТ иногда может неточно отражать фактический эффект, который тестируемое соединение оказывает на конкретные клетки. Однако химические структуры или группы, которые могут вызвать противоречивые результаты анализа МТТ, не были идентифицированы. Недавние исследования показали, что анализ МТТ может недооценивать антипролиферативный эффект (-)-эпигаллокатехин-3-галлата, наиболее распространенного полифенола в зеленом чае [11]. В исследованиях с использованием МТТ-анализа для выявления химиочувствительности опухоли противораковые химиотерапевтические агенты, такие как эпирубицин, паклитаксел, доцетаксел и мезилат иматиниба (Гливек), показали повышенную жизнеспособность клеток [12,13]. Более того, в нескольких исследованиях сообщалось, что некоторые растительные экстракты и окислительно-восстановительные полифенолы могут мешать анализу МТТ, поскольку они напрямую восстанавливают тетразолиевую соль МТТ в отсутствие клеток [14].
Необходимость солюбилизировать кристаллы формазана МТТ перед спектрофотометрическим анализом в устройстве для считывания микропланшетов и характер конечной точки реакции ограничивают использование анализа МТТ некоторыми приложениями. Это привело к разработке аналогов тетразолия, в которых фенильные фрагменты декорированы отрицательно заряженными сульфонатными группами, такими как 2,3-бис-(2-метокси-4-нитро- 5- сульфофенил)-2H-тетразолий-5-карбоксанилид (XTT), отрицательно заряженная внутренняя соль [15] и 3-(4,5-диметилтиазол-2-ил) -5-(3-карбоксиметоксифенил)-2-(4-сульфофенил)-2H-тетразолий (МТС), слабокислая внутренняя соль, тесно связанная с МТТ [16] . Эти модификации привели к получению растворимых в культуральной среде продуктов формазана, что устранило необходимость этапа солюбилизации перед количественным определением. Соответственно, поскольку повышенный отрицательный заряд этих молекул снижает их способность перемещаться через клеточные мембраны [17], появляются промежуточные акцепторы электронов (МЭА), такие как 1-метокси-5-метилфеназинметилсульфат ({{25 }}метокси-ПМС) были необходимы для облегчения восстановления тетразольного красителя или повышения скорости восстановления.
Совсем недавно было разработано новое поколение водорастворимых солей тетразолия, прототипом которого является WST-1 [18]. WST-1, отрицательно заряженная дисульфированная внутренняя соль, содержащая остаток йода, более стабильна, чем XTT и MTS, в присутствии 1-метокси-ПМС, это обязательный ИЭА. Это привело к продаже WST-1/1-метокси PMS как удобного набора для пролиферации клеток с одним реагентом. Было разработано несколько других солей тетразолия серии WST, наиболее полезной из которых, возможно, является WST-8 [19]. WST-8, по-видимому, имеет свойства восстановления клеток, очень похожие на WST-1, и продается независимо как анализ CCK-8. WST-8 непроницаем для клеток и поэтому восстанавливается внеклеточно посредством транспорта электронов от внутриклеточного НАДН к WST-8 через плазматическую мембрану, опосредованного 1-метокси-ПМС. Хотя восстановление МТТ и WST-8/1-метокси-ПМС обусловлено внутриклеточным НАДН, источник НАДН, по-видимому, различается в этих двух методах. Восстановление WST-8/1-метокси-ПМС в большей степени зависит от малатно-аспартатного челнока, который связывает митохондриальный цикл трикарбоновых кислот-НАДН с экстрамитохондриальным пространством [20].
В предварительных экспериментах мы подтвердили, что соединения 1, 2, 3 и 4 не могут напрямую восстанавливать тетразолиевую соль МТТ (не показано). В настоящем исследовании прямое влияние самих соединений на реагент устранялось путем тщательной промывки микропланшетов фосфатно-солевым буфером (PBS) перед добавлением раствора МТТ или CCK-8, как указано в протоколах производителя. Тем не менее, результаты, полученные с помощью двух методов, по-прежнему были противоречивыми (рис. 2). Как и ожидалось, инкубация клеток с соединениями 1, 2 и 3 увеличивала восстановление соли тетразолия до пурпурного формазана по сравнению с контрольной группой (рис. 3), что позволяет предположить, что простое восстановление соли тетразолия в присутствии специфического соединения недостаточно для оценки способности соединения влиять на анализ МТТ.
Чтобы определить, могут ли соединения 1, 2, 3 и 4 индуцировать апоптоз в клетках EA.hy926, оценивали клеточные морфологические изменения и экстернализацию фосфатидилсерина. В соответствии со снижением жизнеспособности клеток, наблюдаемым при анализе CCK-8, результаты окрашивания Хехста и анализа проточной цитометрии с использованием аннексина V-FITC/PI позволяют предположить, что ингибирование роста, наблюдаемое после обработки соединениями 1, 2 и 3, было вследствие, по крайней мере частично, апоптоза клеток EA.hy926. Наши результаты также подтвердили идею о том, что кофеильная группа, присутствующая в обоих соединениях 1 и 2, ответственна за противоречивые результаты, полученные с помощью МТТ-анализа.
Как и наши результаты, роттлерин, мощный открыватель калиевых каналов с большой проводимостью, не проявлял реактивности по отношению к МТТ in vitro. Однако он сильно усиливал образование кристаллов формазана внутри клеток, что явно противоречило ингибированию роттлерином NF-κB и пролиферации клеток, наблюдаемому при анализе включения [3 H]-тимидина в ДНК [21]. Механизм, с помощью которого роттлерин усиливает снижение МТТ, объясняется его эффектом митохондриального разобщения [22]. Роттлерин имеет заместительную группу коричной кислоты. По сравнению с коричной кислотой соединение 3 имеет два дополнительных гидроксильных остатка, расположенных при С-3 и С-4. Таким образом, мы предполагаем, что механизм, с помощью которого соединения 1 и 2 вызывают противоречивые результаты в тесте МТТ, также может быть связан с их эффектами митохондриального разобщения. Для проверки этой гипотезы необходимы сравнительные исследования соединений 1 и 2, а также химического разобщителя, такого как трифторкарбонилцианид фенилгидразон (FCCP).

НАТУРАЛЬНАЯ ЦИСТАНША TUBULOSA ДЛЯ УЛУЧШЕНИЯ ПОЛОВОЙ ФУНКЦИИ PHGS75% ECH 30% ACT 12%
3. Экспериментальный участок
3.1. Реагенты и химикаты
Соединение 3 (кофейная кислота – порошок, чистота=98,6%) было приобретено у Chengdu Push Bio-Technology Co., Ltd. (Чэнду, Китай). Соединение 4 (3,4-дигидроксифенилэтанол–масло, чистота=98,5%) было получено от Chengdu Must Bio-Technology Co., Ltd. (Чэнду, Китай). МТТ и диметилсульфоксид (ДМСО) были получены от Sigma-Aldrich (Сент-Луис, Миссури, США). Анализ CCK-8 был приобретен у Dojin Laboratories (Кумамото, Япония). Наборы для обнаружения апоптоза Hoechst 33342 и аннексина V-FITC/PI были приобретены в Институте биотехнологии Beyotime (Хаймен, Китай).
3.2. Растительный материал
С. трубчатаястебли были собраны в префектуре Ютянь Синьцзян-Уйгурского автономного района, Китай. Образцы сертификатов были переданы на хранение в Ключевую лабораторию высотной медицины Третьего военно-медицинского университета (Чунцин, Китай) и подтверждены И Чжаном из Университета традиционной китайской медицины Чэнду (Чэнду, Китай).
3.3. Экстракция и изоляция растительного материала
Высушенные на воздухе стебли C. Tubeulosa (0,6 кг) измельчали в порошок и экстрагировали 50% этанолом в течение 2 часов при 70 градусах. После удаления растворителя при пониженном давлении спиртовой экстракт (212,5 г) растворяли и суспендировали в воде (2 л) и экстрагировали н-бутанолом (2 л × 3). Экстракт н-бутанола (110 г) хроматографировали на полиамидной колонке и элюировали смесью этанол/вода (0:100, 5:95, 15:85, 30:70, 50:50), получая пять фракций (А–Е). . Фракцию Б (65 г) фракционировали на колонке с ODS; элюирование смесью этанол:вода (1:9) отделяло соединение 1 (3 г). Фракцию D (10,5 г) фракционировали на колонке с ODS; элюирование смесью этанол/вода (1:4) отделяло соединение 2 (1 г).
Спектры ЯМР записаны на спектрометре Bruker Avance 600 в CD3OD с тетраметилсиланом (ТМС) в качестве внутреннего стандарта. Масс-спектры получены на масс-спектрометре BioTOF-Q.
3.4. Культура клеток
Клеточные линии EA.hy926 были получены из Американской коллекции типовых культур (Манассас, Вирджиния, США). Клетки культивировали в среде RPMI 1640, дополненной 10% (об./об.) фетальной бычьей сывороткой и 1% (об./об.) пенициллином-стрептомицином во влажной среде с 5% CO2 при 37 градусах.
3.5. Жизнеспособность клеток
Жизнеспособность клеток оценивали с помощью анализов MTT и CCK{{0}}. Соединения 1 и 2, а также их агликоны, кофейную кислоту (3) и 3,4-дигидроксифенилэтанол (4) растворяли в ДМСО до конечной концентрации ДМСО < 0,1% (по объему) в культуральной среде.
Клетки EA.hy926 высевали на планшеты с 96-лунками из расчета 4 × 10³ клеток на лунку. После инкубации в течение 24 ч клетки обрабатывали 6,25–50 мкМ соединения 1, 2, 3 или 4 в течение 24 ч. Культуральную среду удаляли и клетки дважды промывали фосфатно-солевым буфером (PBS). Аликвоты (10 мкл) маточного раствора МТТ (5 мг·мл-1) добавляли в каждую лунку, содержащую 100 мкл среды, и инкубировали с клетками в течение 4 часов. После инкубации среду удаляли и в каждую лунку добавляли аликвоты ДМСО по 150 мкл для растворения кристаллов формазана. Поглощение измеряли при 490 нм с использованием микропланшетного ридера (Bio-Tek Synergy HT, Winooski, VT, США). Жизнеспособность клеток выражали как процент снижения МТТ, принимая за 100% значение поглощения контрольных клеток. Все эксперименты проводились трижды и представлялись как среднее ± стандартное отклонение (SD).
Анализ CCK-8 проводился в соответствии с литературными данными с небольшими изменениями [23]. В частности, клетки обрабатывали 6,25–50 мкМ соединений 1, 2, 3 или 4 в течение 24 часов и дважды промывали PBS перед добавлением 10 мкл раствора CCK-8 и 100 мкл культуральной среды. После инкубации микропланшета при 37 градусах в течение 2 часов измеряли поглощение при 450 нм с использованием устройства для считывания микропланшетов. Жизнеспособность клеток выражали как процент жизнеспособных клеток по отношению к контрольным клеткам (100%). Все эксперименты проводились трижды и выражались как среднее значение ± стандартное отклонение.
3.6. Оценка апоптоза с помощью окрашивания Hoechst 33342
Апоптозные морфологические изменения наблюдали при окрашивании Hoechst 33342. Вкратце, клетки EA.hy926 высевали на планшеты с 48-лунками (2 × 10⁴ клеток/лунку) и обрабатывали 50 мкМ соединения 1, 2, 3 или 4 в течение 48 часов при 37 градусах, дважды промывали PBS, и фиксировали 4% (об./об.) параформальдегидом в течение 15 мин при комнатной температуре. После двукратного промывания PBS клетки окрашивали Hoechst 33342 (10 мкг·мл-1) в течение 5 минут при комнатной температуре и дважды промывали PBS. Окрашенные Хехстом ядра визуализировали с помощью флуоресцентного микроскопа (Olympus, Токио, Япония).
3.7. Анализ апоптоза методом проточной цитометрии
Апоптозные клетки обнаруживали с помощью двойного окрашивания аннексином V-FITC/PI и анализа проточной цитометрии. Вкратце, после обработки 50 мкМ соединения 1, 2, 3 или 4 в течение 48 часов клетки собирали и ресуспендировали в PBS в концентрации 1 × 10⁵ клеток/мл-1. После центрифугирования при 500×g в течение 5 минут при 25 градусах добавляли 195 мкл связывающего буфера аннексина V-FITC и 5 мкл аннексина V-FITC. После осторожного вихревого перемешивания смесь инкубировали в течение 10 мин при комнатной температуре в темноте. После центрифугирования при 500×g в течение 5 минут при 25 градусах добавляли 190 мкл буфера для связывания аннексина V, конъюгированного с FITC, и 10 мкл PI. После осторожного вихревого перемешивания образцы анализировали с использованием проточного цитометра FACSCalibur (Becton Dickinson, Сан-Хосе, Калифорния, США) в течение 30 минут.
3.8. Статистический анализ
Все экспериментальные данные были выражены как среднее ± SD. Достоверность различий между экспериментальными выборками и соответствующим контролем оценивали методом однофакторного дисперсионного анализа (ANOVA) с использованием программного обеспечения SPSS (версия 11.5). Статистическая значимость была установлена на уровне p < 0,05.
4. Выводы
Наши результаты показывают, что завышенная оценка количества жизнеспособных клеток, наблюдаемая в тесте МТТ, может маскировать цитотоксичность некоторых соединений. Поэтому в процессе скрининга лекарств мы рекомендуем использовать различные методы для определения влияния конкретного соединения на жизнеспособность клеток (например, анализы CCK-8 и 3 H-TdR), чтобы избежать получения вводящих в заблуждение результатов.

НАТУРАЛЬНЫЙ ЦИСТАНШ ТУБУЛОЗНЫЙ ДЛЯ ПОВЫШЕНИЯ СЕКРЕЦИИ ТЕСТОСТЕРОНА PHGS75% ECH 30% ACT 12%