

Нейромеланин при болезни Паркинсона: тирозингидроксилаза и тирозиназа. Часть 3.
Apr 15, 2024
С другой стороны, НМ в DA-нейронах обычно рассматривается как нейропротекторное средство, поскольку НМ инактивирует токсичные виды свободных радикалов благодаря своей способности хелатировать переходные металлы, особенно железо. Железо также накапливается в DA-нейронах [112,115–117].
DA-нейроны — это тип нейронов в мозге, которые часто тесно связаны с такими видами поведения, как вознаграждение, внимание и мотивация. Однако по мере углубления исследований ученые обнаружили, что DA-нейроны также могут быть тесно связаны с памятью.
Исследователи однажды обнаружили в экспериментах на мышах, что активация нейронов DA может улучшить производительность мышей в задачах пространственного распознавания и распознавания объектов, что иллюстрирует положительное влияние нейронов DA на способность памяти. Кроме того, у людей было обнаружено, что DA-нейроны связаны с формированием и поддержанием памяти, а также играют важную роль в обучении и когнитивных функциях.
В частности, DA-нейроны имеют общий нейронный контур, называемый «гиппокампально-вентральной областью VTA» (HP/VTA), который, как полагают, оказывает глубокое влияние на память и эмоциональное поведение. Когда человек изучает что-то новое, DA-нейроны активируются и выделяют химические вещества, такие как дофамин, чтобы усилить эффект обучения и улучшить память мозга о стимуле. Вот почему, когда вы учитесь, вы будете чувствовать себя взволнованными и счастливыми, а также вам будет легко запомнить то, что вы выучили.
Кроме того, исследования показывают, что DA-нейроны также могут помочь нам лучше хранить информацию, контролируя взгляд глаз, что также известно как «визуально-индуцированная модулированная память». Исследователи обнаружили, что когда наши глаза сканируют объекты, которые мы хотим запомнить, DA-нейроны активируются и помогают нам лучше хранить эту информацию.
Короче говоря, хотя роль DA-нейронов в мозге очень сложна, их влияние на память очень положительное и позитивное. Поэтому нам следует хорошо заботиться о наших нейронах и улучшать память и когнитивные функции посредством обучения, физических упражнений и здорового образа жизни. Видно, что нам необходимо улучшить память, а Cistanche Deserticola может значительно улучшить память, поскольку Cistanche Deserticola также может регулировать баланс нейротрансмиттеров, например, повышая уровень ацетилхолина и факторов роста. Эти вещества очень важны для памяти и обучения. Кроме того, Cistanche Deserticola также может улучшить кровоток и способствовать доставке кислорода, что может гарантировать, что мозг получает достаточное количество питательных веществ и энергии, тем самым повышая жизнеспособность и выносливость мозга.
Нажмите «Знать кратковременную память», как ее улучшить.
Железо связано с НМ в форме двухвалентного железа (II), окислительно-восстановительной форме, которая участвует в реакции Фентона с образованием токсичных свободных радикалов. НМ также выводит из цитоплазмы различные токсичные вещества.
Таким образом, НМ может оказывать нейропротекционное действие и in vivo. Однако при прогрессировании БП высвобождение токсичных веществ, связанных с НМ вследствие внутриклеточной деградации НМ, может приводить к активации микроглии для высвобождения цитотоксических цитокинов, вызывающих нейровоспаление и нейродегенерацию [78,118]. БП возникает спонтанно только у человека.
Чтобы создать фенотип БП в различных моделях БП у млекопитающих, таких как мыши и крысы, у которых практически отсутствует НМ в мозге, необходимо вызвать нейродегенерацию ДА с помощью некоторых токсичных химических веществ, таких как 1-фенил-4- метил-1,2,3,6-тетрагидропиридин (МФТП), ингибирующий митохондриальный комплекс I [97].
Группа Вила сообщила, что накопление NM в DA-нейронах при старении, превышающем пороговое значение, вызывает гибель DA-нейронов и фенотип PD [119–121]. Они создали крысиную модель БП человека путем сверхэкспрессии человеческого NM в правом SNpc путем стереотаксической инъекции аденоассоциированного вирусного (AAV) вектора, экспрессирующего человеческую тирозиназу [119].
Крысы показали возрастную выработку человеческих НМ в черных DA-нейронах, вплоть до уровня, наблюдаемого у пожилых людей. Внутриклеточная N-агрегация выше определенного порога связана с возрастным фенотипом БП, включая гипокинезию.
Усиление лизосомального протеостаза снижает внутриклеточный NM и предотвращает нейродегенерацию у крыс со сверхэкспрессией тирозиназы. Внутриклеточные уровни НМ могут устанавливать порог инициации БП. Более того, внеклеточный NM, вытекший из мертвых NM-содержащих DA-нейронов, может активировать микроглию, вызывая нейровоспаление и дополнительно способствуя гибели DA-клеток [122].
НМ является потенциальным кандидатом на запуск БП и/или на приведение к прогрессирующей дегенерации БП, однако существуют нерешенные проблемы, возникающие при лечении БП леводопой: (1) Посмертные данные не показали увеличения числа выживших при НМ. НМ, содержащие дофаминергические нейроны ЧС, после длительного лечения леводопой и (2) длительного лечения леводопой не продемонстрировали значительного увеличения прогрессирования БП.

Теория НМ соответствует фенотипам СРЛ человека. Кроме того, имеется много данных о цитотоксичности альфа-синуклеина [10,19,123].
Недавно роль НМ в индукции экспрессии и агрегации альфа-синуклеина была предложена в качестве механизма модуляции уязвимости нейронов при БП этим пигментом [124]. -Синуклеин реагирует с тирозиназой, и химические модификации обработанного тирозиназой -синуклеина сильно влияют на его агрегационные свойства и повышают токсичность, а -синуклеин может влиять на синтез НМ [125,126].
Окислительно-восстановительная химия железа способствует агрегации альфа-синуклеина, а агрегаты белково-металлических комплексов непосредственно участвуют в производстве АФК, усугубляя окислительное повреждение [127]. Кроме того, DA-нейроны легко экспрессируют MHC-I, а индукции MHC-I способствует активация микроглии либо -синуклеином, либо NM, а также интерфероном-гамма или высоким цитозольным DA и окислительным стрессом [128].
Активированная микроглия в мозге с БП экспрессирует молекулы главного комплекса гистосовместимости класса II (MHC-II). Количество MHC-II-позитивной микроглии в ЧС и скорлупе увеличивается по мере прогрессирования нейрональной дегенерации ЧС [129].
Была предложена теория эволюции, объясняющая специфическую для человека болезнь Паркинсона, основанная на более высоком развитии коры головного мозга человека, чем базальных ганглиев [130–132]. Клинически БП является системным заболеванием, и дегенеративные процессы, особенно в вегетативной нервной системе, трудно объяснить исключительно теорией НМ, хотя накапливаются данные о том, что патогенез БП сложен и включает нарушения энергообмена, окислительный стресс, протеасомальную аномалии, накопление -синуклеина, изменения метаболитов кишечной микробиоты и нейровоспаление [133,134]. В этом контексте представляет интерес и эволюционная точка зрения на систему НМ и систему -синуклеина.

4. Выводы
Считается, что нейромеланин (НМ) синтезируется по следующему пути: тирозин → (TH) → ДОФА → (AADC) → DA → (неферментативное окисление или тирозиназа) → DAQ -- → euNM/pheoNM.
Обнаружение нейромеланин-специфической тирозиназы (активности) и DACtautomerase (активности) остается для будущих исследований как важная проблема патофизиологии БП. Считается, что НМ действует как на нейропротекцию, так и на гибель клеток DA-нейронов в зависимости от внутриклеточных уровней накопления.
Патофизиология НМ-синуклеина является еще одним важным проектом для выяснения причин БП.
Вклад авторов: Концептуализация, все авторы; написание-подготовка оригинального черновика, TN; написание-рецензирование и редактирование, KW, SI, HW и AN; визуализация, К.В. и А.Н. Все авторы прочитали и согласились с опубликованной версией рукописи.
Финансирование: Данное исследование не получило внешнего финансирования.
Заявление Институционального наблюдательного совета: Неприменимо.
Заявление об информированном согласии: Не применимо.
Заявление о доступности данных: Не применимо.

Конфликты интересов: Авторы заявляют об отсутствии конфликта интересов.
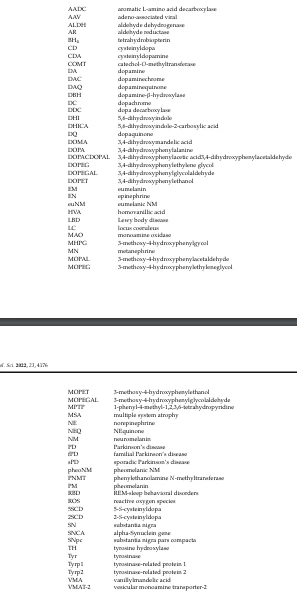
Сокращения
Рекомендации
1. Какабелос, Р. Болезнь Паркинсона: От патогенеза к фармакогеномике. Межд. Дж. Мол. наук. 2017, 18, 551. [CrossRef] [PubMed]
2. Балестрино Р.; Шапира, АГВ болезнь Паркинсона. Евро. акад. Нейрол. 2020, 27, 27–42. [Перекрестная ссылка] [PubMed]
3. Гуаданьоло, Д.; Пиан, М.; Торриси, MR; Пиццути, А.; Петруччи, С. Корреляции генотипа и фенотипа при моногенной болезни Паркинсона: обзор клинических и молекулярных данных. Передний. Нейрол. 2021, 12, 648588. [CrossRef] [PubMed]
4. Ллойд, КГ; Дэвидсон, Л.; Хорникевич О. Нейрохимия болезни Паркинсона: эффект терапии L-ДОФА. J. Pharmacol.Exp. Там. 1975, 153, 453–464.
5. Нагацу, Т.; Като, Т.; Нумата (Судо), Ю.; Икута, К.; Сано, М.; Нагацу, И.; Кондо, Ю.; Инагаки, С.; Иидзука, Р.; Хори, А.; и др. Фенилэтаноламин-N-метилтрансфераза и другие ферменты метаболизма катехоламинов в головном мозге человека. Клин. Хим. Acta1977, 75, 221–232. [Перекрестная ссылка]
6. Нагацу, Т.; Савада, М. Биохимия посмертного мозга при болезни Паркинсона: исторический обзор и перспективы. J.Нейронная передача. Доп. 2007, 72, 113–120. [Перекрестная ссылка]
7. Фан, С. Медикаментозное лечение болезни Паркинсона от Джеймса Паркинсона до Джорджа Котзиаса. Пн. Разлад. 2015, 30, 4–18.[CrossRef]
8. Нагацу, Т.; Савада, М. Терапия L-ДОФА при болезни Паркинсона: прошлое, настоящее и будущее. Паркинсонизм. Отн. Разлад. 2009, 15, С3–С8. [Перекрестная ссылка]
For more information:1950477648nn@gmail.com


