Связь шпинделя и медленных колебаний коррелирует с производительностью памяти и изменениями связности в сети гиппокампа после сна
Aug 24, 2023
Абстрактный
Было предложено, что после кодирования переживаний посткодирующие реактивации во время сна способствуют консолидации долговременной памяти. Связь шпинделя и медленных колебаний во время медленного сна является возможным механизмом, посредством которого диалог коры гиппокампа может усилить вновь сформированную инграмму памяти. Здесь мы исследовали роль связи быстрого веретена и медленного веретена с медленными колебаниями в консолидации пространственной памяти у людей с помощью виртуального водного лабиринта, включающего аллоцентрические и эгоцентрические стратегии обучения. Кроме того, мы проанализировали, как развивалась функциональная связность в состоянии покоя в ходе обучения, консолидации и извлечения этой задачи, используя подход, основанный на данных. Наши результаты показывают изменения связности, связанные с выполнением задачи, в сети исполнительного контроля, сети режима по умолчанию и сети гиппокампа в состоянии покоя после выполнения задачи. Сеть гиппокампа можно далее разделить на две подсети, из которых только одна демонстрирует модуляцию во время сна. Снижение функциональной связности в этой подсети было связано с более высокой мощностью связи шпинделя и медленных колебаний, что также было связано с лучшей производительностью памяти в тесте. В целом, это исследование способствует более целостному пониманию функциональных сетей состояния покоя и механизмов во время сна, связанных с консолидацией пространственной памяти.

Опыт Cistanche-Улучшение памяти
КЛЮЧЕВЫЕ СЛОВА
консолидация памяти, сети покоя, сон, медленные колебания, веретена
1|ВВЕДЕНИЕ
Теория консолидации систем — одна из наиболее широко изучаемых концепций формирования долговременной памяти. Теория утверждает, что лабильные энграммы в мозге, закодированные во время обучения, укрепляются посредством повторной реактивации. Со временем этот процесс может привести к более стабильному долгосрочному представлению — консолидированному следу памяти (Squire et al., 2015). Считается, что реактивация инграммы происходит преимущественно во время сна, но ее также можно наблюдать во время спокойного отдыха. Потенциальный ключевой механизм, лежащий в основе консолидации систем, представляет собой иерархическую координацию трех типов событий во время сна с медленным движением глаз (NREM): (1) высокоамплитудные медленные кортикальные колебания, (2) веретена, управляемые таламическими узлами, и (3) гиппокамп резкие волны-рябь. Считается, что оркестровка этих колебаний, вызванная усилением и убыванием медленных колебаний в префронтальной коре (Helfrich et al., 2019), устанавливает идеальные временные окна для передачи информации из гиппокампа в кору (Sirota et al., 2003) и мозг. -процессы общесинаптической консолидации, лежащие в основе консолидации систем (Genzel, 2020; Genzel, Kroes, et al., 2014; Navarro-Lobato & Genzel, 2020). У людей последовательно идентифицируются два типа веретен: медленные веретена (~9–12,5 Гц) и быстрые веретена (~12,5–16 Гц), которые наиболее выражены в лобной и центрально-теменной областях соответственно (Adamczyk et al. , 2015; Андерер и др., 2001). Оба типа шпинделей связаны с медленными колебаниями. В то время как быстрые веретена часто располагаются в возбудимом положительном состоянии медленных колебаний, медленные веретена обычно возникают во время переходного периода в тормозящее нижнее состояние медленных колебаний (Molle et al., 2011). Быстрые веретена участвуют в передаче информации между гиппокампом и неокортексом, поскольку они совпадают с пульсациями острых волн гиппокампа (Staresina et al., 2015). Медленным веретенам, которым обычно предшествуют пульсации, может быть связано с кортикальным перекрестным связыванием передаваемой информации и модуляцией префронтальных схем для формирования неокортикального представления памяти (Molle et al., 2011). Однако только в исследованиях на людях наблюдается последовательное разделение между медленными и быстрыми веретенами. Поскольку это подразделение редко проводится в исследованиях на животных, конкретные доказательства различных функций каждого типа веретена отсутствуют. Влияние этих двух типов веретена на поведение еще менее убедительно. Недавние результаты ЭЭГ показали, что большее количество и повышенная согласованность взаимодействия быстрых веретен и медленных колебаний связаны с увеличением производительности декларативной памяти (Hahn et al., 2020; Muehlroth et al., 2019; Niknazar et al., 2015). . Экспериментальное усиление координации между пульсациями острых волн гиппокампа, медленными колебаниями и лобными веретенами у грызунов – потенциально аналогом медленных веретен человека – также привело к повышению производительности памяти (Maigret et al., 2016). Напротив, предварительные данные о связи медленного веретена и медленных колебаний у людей указывают на снижение производительности декларативной памяти с усилением связи медленного веретена и медленных колебаний или на отсутствие эффекта вообще (Barakat et al., 2011; Muehlroth et al., 2019). Таким образом, крайне важно распутать поведенческую значимость обоих типов веретена в консолидации памяти. Учитывая важность сна и гиппокампа в автономной консолидации, была выдвинута гипотеза, что сон играет особую роль в консолидации зависимых от гиппокампа воспоминаний в отличие от «независимых от гиппокампа» воспоминаний. Эти два типа воспоминаний можно исследовать с помощью парадигм пространственной навигации. Навигация в среде предполагает использование разных навигационных стратегий, а именно аллоцентрических и эгоцентрических стратегий (по обзору Ekstrom et al., 2017). В аллоцентрической системе отсчета навигатор может определить свое положение на основе относительного положения стабильных ориентиров. Предполагается, что аллоцентрическое пространственное обучение в значительной степени зависит от гиппокампа, поскольку оно требует пространственной когнитивной карты положений ориентиров (O'Keefe & Nadel, 1978). Напротив, эгоцентрическая система отсчета постоянно меняется вместе с движением штурмана. Во время эгоцентрического пространственного обучения штурману необходимо отслеживать пройденное расстояние и направление, в котором дорсальное полосатое тело было идентифицировано как критическая структура (McDonald & White, 1994). Таким образом, можно предположить, что в пространственном контексте механизмы консолидации различаются в аллоцентрических и эгоцентрических условиях обучения и соответственно влияют на производительность памяти. Однако недавние данные указывают на участие гиппокампа в консолидации во время сна, даже для ранее считавшихся независимыми от гиппокампа воспоминаний (Sawangjit et al., 2018; Schapiro et al., 2019), и аналогичные изменения функциональных сетей после сна в аллоцентрических и эгоценических группах. тренировка трюков (Саманта и др., 2021). Поэтому остается открытым вопрос, как пространственная информация двух систем отсчета консолидируется во время сна и как эти механизмы влияют на работу памяти. Хотя большая часть работ была сосредоточена на роли сна в системной консолидации памяти, исследования как на грызунах (Davidson et al., 2009; Diba & Buzsáki, 2007), так и на людях (Schuck & Niv, 2019; Tambini & Davachi, 2013) продемонстрировали общесистемные процессы консолидации в периоды бодрствования и отдыха сразу после обучения. Подобно консолидации, зависящей от сна, репрезентации событий спонтанно реактивируются в гиппокампально-таламокортикальной сети во время посткодирующего отдыха (подробный обзор см. в Tambini & Davachi, 2019). Считается, что важные узлы этих реактиваций включают сеть гиппокампа, сосредоточенную в медиальной височной коре и ретросплениальной коре (van Buuren et al., 2019), а также взаимодействия между центрами сети режима по умолчанию (Lin et al., 2017). и сети, соответствующие задачам (например, сеть исполнительного контроля; Sneve et al., 2017). Было показано, что более высокие уровни функциональной связи в состоянии покоя между областями, специфичными для стимулов, и гиппокампом предсказывают будущую способность восстанавливать воспоминания (Tambini et al., 2010). Кроме того, функциональная связность сразу после обучения, а также степень реактивации гиппокампа предсказывают последующее сохранение памяти в ночное время, предполагая взаимодополняющую связь между реактивацией в состоянии бодрствования и последующей консолидацией во время сна (Schapiro et al., 2018). В то время как большинство предыдущих исследований отдельно рассматривают один тип периода посткодирования (т.е. отдых или сон), исследования, изучающие процессы консолидации в обоих периодах, необходимы для получения целостного понимания параллелей между механизмами консолидации во время этих различных состояний мозга. Таким образом, настоящее исследование направлено на то, чтобы обеспечить внутриисследовательные измерения различных состояний мозга после кодирования и показать их связь с характеристиками памяти в задаче пространственной навигации. Наше исследование является продолжением наших исследований влияния сна на аллоцентрические и эгоцентрические представления памяти у людей и крыс (Samanta et al., 2021). Участники выполнили человеческий аналог водного лабиринта (Моррис, 1981), проверенную парадигму для изучения различных аспектов пространственной навигации (Müller et al., 2018; Schoenfeld et al., 2017). Принимая во внимание, что Саманта и др. (2021) сосредоточились на данных задачи фМРТ во время обучения и извлечения информации, здесь мы сосредоточились на данных фМРТ в состоянии покоя и данных ЭЭГ во сне. Таким образом, функциональная связность в состоянии покоя в соответствующих сетях оценивалась до и после обучения и восстановления задачи на память, в которой участники участвовали либо в аллоцентрической, либо в эгоцентрической пространственной навигации. ЭЭГ использовалась между двумя сеансами задач для измерения процессов консолидации, связанных с медленным сном (т. е. свойств веретена и медленных колебаний и их связи). Мы применили подход, основанный на данных (Рибейро де Паула и др., 2017), чтобы исследовать эволюцию функциональных связей в состоянии покоя посредством пространственного обучения, консолидации и восстановления памяти. Сети в состоянии покоя были выбраны на основе результатов, полученных Samanta et al. (2021), включая сеть режима по умолчанию, сеть гиппокампа и сеть правого исполнительного управления. Чтобы установить триадную взаимосвязь между сном, состоянием покоя и поведением, мы сопоставили параметры веретена и медленных колебаний, изменения в функциональной связности в состоянии покоя и показатели производительности задачи пространственной памяти. Саманта и др. (2021) обнаружили аналогичные изменения в памяти всего мозга, связанные со сном, при аллоцентрической и эгоцентрической тренировке. В частности, активация увеличивалась в сети исполнительного контроля и уменьшалась в сети режима по умолчанию от обучения до извлечения, если испытуемые спали после обучения. Следовательно, мы ожидали наблюдать аналогичные изменения в этих двух сетях в состоянии покоя. Процессы консолидации всего мозга также должны наблюдаться в сети гиппокампа, которая координирует консолидацию во время сна и в состоянии покоя. Мы предположили, что связь веретена и медленных колебаний положительно связана с изменениями в сети гиппокампа и производительности памяти. Эти результаты не должны различаться в зависимости от состояния памяти, поскольку Samanta et al. (2021) не заметили разницы между аллоцентрическим и эгоцентрическим обучением. Действительно, наши результаты показывают, что исполнительный контроль и сети режима по умолчанию изменяются в гипотетически противоположных направлениях до и после выполнения задачи. Кроме того, мы определили две подсети в сети гиппокампа. Первичная подсеть не зависела от состояния сна и увеличивала функциональные связи до и после выполнения задачи, а также после перерыва. Связность во второй подсети за перерыв снизилась только у участников, которые вздремнули. Наконец, сила связи веретена и медленных колебаний была положительно связана с производительностью памяти и снижением связности во второй, зависимой от сна подсети гиппокампа. Все эффекты были одинаковыми для аллоцентрического и эгоцентрического тренинга. Наши результаты показывают, что активации в состоянии покоя можно разделить на изменения, связанные с выполнением задачи и консолидацией, которые либо независимы, либо зависят от сна. Только изменения, зависящие от сна, связаны со связью веретена и медленных колебаний, которая в равной степени способствует улучшению памяти при аллоцентрическом и эгоцентрическом обучении.
Польза цистанхе для мужчин – против болезни Альцгеймера
【Запросить дополнительную информацию】 Электронная почта:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
2|МЕТОДЫ И МАТЕРИАЛЫ
2.1|Участники
Для исследования были привлечены семьдесят семь неврологически здоровых участников-правшей (возрастной диапазон: 18–30 лет, среднее значение=24). Были выбраны только участники мужского пола, поскольку выборка представляет собой субпопуляцию более крупного трансляционного исследования, в котором использовались только грызуны-самцы (Samanta et al., 2021). Исследование было одобрено местным комитетом по этике (CMO Арнем-Неймеген, Медицинский центр Университета Радбауд) в соответствии с общим этическим одобрением («Imaging Human Cognition», CMO 2014/288), и эксперимент проводился в соответствии с этими рекомендациями. Набор персонала осуществлялся через систему участия в исследованиях Radboud. Участники были проверены и исключены на основании (1) приема снотворных, (2) регулярного сна и (3) участия в профессиональных игровых мероприятиях. До начала эксперимента все участники предоставили письменное информированное согласие и получили финансовую компенсацию за свое участие. В общей сложности четырнадцать участников были исключены из анализа после сбора данных. Восемь испытуемых были исключены из эксперимента из-за технических проблем во время обучения или извлечения: у пяти участников джойстик был неправильно откалиброван, а у остальных троих возникли технические проблемы, включая резкий сбой программы среды задач во время сканирования. Трое испытуемых спали менее 30 минут как в ходе теста на сон, так и в контрольном сеансе. Их z-показатели отличались более чем на 2,5*σ от выборочного среднего фактического времени сна. Фактическое время сна рассчитывалось для каждого субъекта как общее время сна (TST) без учета бодрствования после начала сна (WASO). Еще у трех испытуемых было выявлено большое смещение изображения из-за движения головы во время сканирования фМРТ. Величину смещения в серии изображений оценивали с помощью индекса качества (QI) с использованием уравнения (1):

where max. abs. is the maximum absolute displacement of a given volume with respect to a reference time point (i.e. middle volume in the time series) and max. rel. represents the maximum relative displacement at a given volume with respect to the subsequent time point. The two measures account for gradual as well as abrupt changes in head position. The cut-off for the exclusion of participants was set to a QI >16.4 (Рибейру де Паула и др., 2017). В общей сложности в качестве окончательной выборки рассматривались 63 субъекта (возрастной диапазон: 18–30 лет, среднее значение=23.3).
2.2|Экспериментальная процедура
С помощью полнофакторного смешанного плана 2 2 мы протестировали общесистемные процессы консолидации парадигмы пространственной памяти. Во время фМРТ-сканирования участники занимались алло- или эгоцентрическим пространственным обучением и восстановлением памяти в ранее проверенном человеческом аналоге водного лабиринта (Müller et al., 2018; Schoenfeld et al., 2017). Непосредственно до и после сеансов обучения и восстановления функциональную связь оценивали с помощью фМРТ в состоянии покоя. В общей сложности это составляет четыре сеанса фМРТ в состоянии покоя по 9 минут каждый. В промежутках между пространственным обучением и восстановлением памяти для измерения сна использовалась ЭЭГ сна. В экспериментальных условиях участникам было предложено спать 90 минут, в то время как контрольная группа смотрела фильм в течение такого же времени. Примерно через 2 недели после эксперимента участники, находившиеся в состоянии сна, завершили сеанс контроля сна продолжительностью 90 минут, который не следовал за обучающим опытом.

Добавка цистанхе рядом со мной – улучшение памяти
2.3|Задача виртуального водного лабиринта
Задача виртуального водного лабиринта представляет собой адаптацию водного лабиринта для крыс, общепринятого метода проверки пространственных способностей грызунов (Morris, 1981).
Эта аналогичная парадигма для людей совместима со средой МРТ-сканера (Schoenfeld et al., 2017). Участникам было поручено перемещаться по виртуальному острову с целью найти сундук с сокровищами. В этой парадигме мы использовали две разные настройки: «скрытый остров» и «остров с подсказками». Скрытый остров был окружен четырьмя достопримечательностями (т. е. мостом, парусной лодкой, ветряной турбиной и маяком; см. рисунок S1). Спрятанный на острове сундук с сокровищами отметил целевое местоположение. Ящик располагался в небольшом углублении на поверхности виртуального острова и поэтому был виден только в непосредственной близости. Напротив, на острове-подсказке не было никаких ориентиров для ориентации, за исключением флага рядом с сундуком с сокровищами, который был виден издалека. Положение этого флага и сундука с сокровищами менялось в каждом испытании. Последовательность задач состояла из восьми чередующихся блоков подсказок и скрытых островов, в результате чего в общей сложности было выполнено 16 испытаний. В каждом испытании участники могли свободно перемещаться по острову в своем темпе с помощью джойстика. Когда целевое место в непосредственной близости от сундука с сокровищами было достигнуто, участники могли завершить испытание нажатием кнопки на джойстике. Между окончанием одного испытания и началом следующего был интервал 15- секунд, в течение которого участники могли развернуться на острове и сориентироваться. Участники сначала столкнулись с островом, на котором им нужно было найти видимый флаг. Этот остров использовался для контроля перцептивной и моторной обработки, чтобы изолировать эффекты памяти при более позднем анализе. Для встречи со скрытым островом участники были случайным образом распределены по одному из условий обучения — аллоцентрическому или эгоцентрическому. Аллоцентрическая группа начинала в каждом испытании с разных мест на острове, и им приходилось каждый раз переориентироваться, чтобы найти целевое место, тем самым способствуя использованию навигации по местам. В эгоцентрической группе у них будет одно и то же стартовое место в каждом испытании, и, следовательно, они могут полагаться на повторяющееся фиксированное движение, чтобы добраться до целевого места, в дополнение к видимым подсказкам, что позволяет им использовать обе навигационные стратегии. В целом участники не знали этих двух условий. В обучающих испытаниях основная цель участников в обоих условиях заключалась в том, чтобы узнать расположение мишени на восьми испытаниях скрытых островов. Для испытаний по поиску устройство острова осталось прежним с одной модификацией: сундук с сокровищами был удален со скрытого острова, и участникам было поручено отметить место, насколько им известно, где они вспомнили, где должен находиться ящик.
2,4|Получение данных
2.4.1|Полисомнографические записи
Полисомнографические записи были получены с частотой дискретизации 500 Гц (BrainAmp, Brain Products, Гилхинг, Германия) во время 90-минутного сна. Были установлены тридцать два скальповых электрода (международная система ЭЭГ 10–20), включая Fz, F3, F4, Cz, C3, C4, Pz, P3, P4, Oz, O1, O2, и привязаны к левому сосцевидному отростку. Дополнительно регистрировали горизонтальные и вертикальные движения глаз (ЭОГ), электромиограмму (ЭМГ) на подбородке и электрокардиограмму (ЭКГ). Запись началась вскоре после того, как выключили свет. После эксперимента оценка сна проводилась экспериментатором, не имеющим информации об условиях, с использованием набора инструментов SpiSOP (www.spisop.org; RRID: SCR_015673). В соответствии с правилами оценки Американской академии медицины сна (AASM) стадии сна 1 и 2, медленный сон, быстрый сон, пробуждения и движения тела оценивались визуально в 30-секундные периоды на основе ЭОГ, ЭМГ и следующих каналов. —F3, F4, C3, C4, O1, O2.
2.4.2|Получение FMRI
Временные ряды FMRI были получены с использованием головного сканера 3T (Prisma 3T, Siemens, Эрланген, Германия). Семьсот T2*-взвешенных изображений были получены с помощью многополосной последовательности эхо-планарной визуализации градиентного эха (многоканальный коэффициент=8, 64 аксиальных среза, время повторения объема [TR]=1000 мс, время эхо [TE ]=39 мс, 52 угла поворота, толщина среза=2,4 мм; поле зрения (FOV) 210 мм; размер вокселя 2 мм (изотропно). Анатомические изображения были получены с использованием T1-взвешенной последовательности MP-RAGE (192 сагиттальных среза, объем TR=2300 мс, TE=3,03 мс, угол поворота 8, толщина среза 1 мм. ; Угол обзора 256 мм, размер воксела 1 1 1 мм). Все данные доступны в репозитории Donders di. может. ДСК_3013066.01_875.
2,5|Обработка данных
2.5.1|Предварительная обработка ЭЭГ сна
Данные были предварительно обработаны в Matlab R2020b (Mathworks Inc., Шерборн, Массачусетс) с использованием набора инструментов Sleeptrip (www.sleeptrip.org; RRID: SCR_017318). Все каналы ЭЭГ были повторно привязаны к средним сосцевидным отросткам (А1 и А2), а данные подвергались полосовой фильтрации между 0,3 и 35 Гц (нуль-фазовый фильтр Баттерворта 4-го порядка). В общем, применялись только фильтры нулевой фазы (т.е. прямого и обратного направления). Плохие каналы ЭЭГ визуально отклонялись на основании их спектров мощности. Для остальных каналов артефакты были обнаружены в длинных окнах 30-. Сегменты, которые визуально идентифицировались как движение тела, были отмечены для последующего исключения. Для дальнейшего выявления сегментов, которые сильно отклонялись от наблюдаемого общего распределения амплитуд, средние различия амплитуд для каждого сегмента были стандартизированы по z внутри каждого канала. Сегменты с az > 5 в любом из каналов были исключены (Muehlroth et al., 2019). TST рассчитывали как время, проведенное на стадиях 1, 2, SWS и REM-сна. WASO определялось как время бодрствования участников между началом сна и окончательным пробуждением.

Эффекты травы цистанха против болезни Альцгеймера
2.5.2|Обнаружение шпинделя
Шпиндели были обнаружены с помощью автоматизированного алгоритма, реализованного в Sleeptrip на основе предыдущих публикаций (Weber et al., 2020) и алгоритма «выключения», реализованного в Python версии 3.8 (Donoghue et al. , 2020). Предполагаемые пики мощности в диапазонах частот медленного шпинделя (9–12,5 Гц) и быстрого шпинделя (12,5–16 Гц) были визуально обнаружены в периоды NREM (т. е. N2 и N3). Перед проверкой спектров мощности апериодическая составляющая 1/f была удалена из сигнала путем подбора функции Лоренца. Для каждого участника вручную определялись пики медленного веретена в среднем по трем фронтальным каналам (Fz, F3, F4; сеанс теста на сон: 10,25 Гц ± 0,1, среднее ± SEM ; Сеанс контроля сна: 10,07 Гц ± 0,14, среднее ± SEM) и пики быстрых шпинделей в среднем по трем центральным каналам (Cz, C3, C4; Сеанс тестирования сна: 13,44 Гц ± 0,09, среднее ± SEM; Сеанс контроля сна: 13,44 Гц ± 0,06, среднее ± SEM). Чтобы проверить визуально определенные пики частоты, мы итеративно подгоняли гауссианы к периодическим компонентам мощности с помощью fooof (см. рисунок S2, например, спектры). В случае различий в ручных метках и подобранных гауссовских пиках спектры мощности пересматривались. Этот метод использовался, чтобы избежать появления ложных событий веретена (Ujma et al., 2015). Затем сигнал каждого канала подвергался полосовой фильтрации (±1,5 Гц, срез 3 дБ, нулевой фазовый фильтр Баттерворта 4-го порядка) вокруг идентифицированных отдельных частотных пиков. Среднеквадратическое представление сигнала (RMS) рассчитывалось в каждой точке выборки и сглаживалось с использованием фильтра скользящего среднего в скользящем окне длительностью 200 мс. Потенциальное веретено отмечали, если амплитуда сглаженного среднеквадратичного сигнала превышала его среднее значение на 1,5 SD отфильтрованного сигнала в течение 0,5–3 с. Локальные минимумы и максимумы отфильтрованного шпиндельного сигнала были отмечены как пики и минимумы. Самый большой провал определялся как пиковое время шпинделя. Амплитуда веретена определялась разностью потенциалов между самым большим минимумом и самым большим пиком. Индивидуальная частота конкретного веретена определялась путем сложения количества всех впадин и пиков и деления на удвоенную длительность соответствующего веретена. Шпиндели с границами ближе 0,25 с в конечном итоге были объединены.
2.5.3|Обнаружение медленных колебаний
Обнаружение медленных колебаний на лобных электродах также было основано на автоматизированном алгоритме, реализованном в Sleeptrip и проверенном в других источниках (Ngo et al., 2013). Для всех эпох NREM предварительно обработанные данные ЭЭГ подвергались низкочастотной фильтрации с частотой 4 Гц (фильтр Баттерворта 6-го порядка с нулевой фазой). Затем весь сигнал был разделен на отрицательные и положительные полуволны, которые были разделены пересечениями нуля. Потенциальные медленные колебания определялись как отрицательная полуволна, за которой следовала положительная полуволна в диапазоне частот от 0,5 до 1 Гц. Амплитуда и частота медленных колебаний рассчитывались с использованием того же подхода, что и для шпинделей. Предполагаемые медленные колебания, превышающие минимум в 1,25 раза средний минимум всех предполагаемых медленных колебаний, а также амплитуду в 1,25 раза превышающую среднюю амплитуду всех потенциальных медленных колебаний, были приняты для дальнейшего анализа.
2.5.4|Предварительная обработка фМРТ в состоянии покоя
Файлы МРТ DICOM были введены в автоматический конвейер в GraphICA (BraiNet — Brain Imaging Solution Inc. — Сарния, Онтарио, Канада). Анатомические и функциональные изображения были предварительно обработаны с использованием FSL 6.03. Этапы предварительной обработки T1-взвешенных анатомических изображений включали коррекцию поля смещения (RF/B1-коррекция неоднородности), извлечение мозга, сегментацию по типу ткани (CSF, GM, WM) и подкорковую структуру. сегментация. На функциональных данных мы выполнили зачистку черепа, коррекцию движения, коррекцию времени среза, пространственное сглаживание, которое рассчитывается на основе размера воксела, потолок (1,5 * размер воксела), совместную регистрацию, автоматическое удаление артефактов движения на основе ICA, высокочастотный фильтр. фильтрация и регрессия помех (WM и CSF). Данные не были нормализованы по эталонному пространству, поскольку в последующем анализе должны быть сохранены характеристики естественного пространства мозга.
2.5.5|Двойной регрессионный анализ
Двойная регрессия использовалась для определения пространственных карт, специфичных для субъекта, с использованием 11 сетевых масок состояния покоя: слуховая, сеть режима по умолчанию, исполнительный контроль слева, исполнительный контроль справа, гиппокамп, язык, заметность, сенсомоторная, визуальная латеральная, визуальная медиа и визуальная. Затылочная. Интенсивность компонентных пространственных карт выражали в единицах процентного изменения сигнала от среднего значения.
2.5.6|Региональная парцелляция
T{{0}}взвешенное изображение каждого субъекта автоматически сегментировалось с помощью конвейера, реализованного в Freesurfer 7 (v7.1.0, http://surfer.nmr.mgh.harvard.edu/). Дальнейшая парцелляция была выполнена с помощью GraphICA с использованием процедуры модели случайного поля Маркова с градиентным взвешиванием, описанной в (Schaefer et al., 2018). Эта модель парцелляции содержит три конкурирующих термина, которые обеспечивают компромисс между оптимальными свойствами окончательной сегментации: термин глобального сходства для группировки участков мозга с одинаковой интенсивностью изображений, термин локального градиента для обнаружения резких изменений функциональных связей между соседними участками мозга и термин пространственной связности для определения обеспечить пространственную связанность внутри участков. В результате процедуры были выделены 832 парцеллированных участка мозга, которые были включены в качестве узлов сети для дальнейшего анализа.
2.5.7|Функциональное построение сети и пороговая обработка
Используя GraphICA, каждый узловой временной ход фМРТ коррелировал с временным ходом IC для трех сетей в состоянии покоя отдельно. После совместной регистрации каждой из функциональных сетей состояний покоя для субъекта в естественном пространстве среднее значение z было рассчитано путем усреднения значений скалярной карты воксела, принадлежащего каждой из 832 ROI. Получающиеся z-стандартизованные коэффициенты корреляции описывают загрузку каждого узлового временного курса в соответствующей сети в состоянии покоя. Чтобы удалить ложные или слабые значения z, например, из-за шума, нагрузки были установлены с помощью подхода смешанного моделирования на основе данных на уровне одного субъекта (Bielczyk et al., 2018). Кроме того, пороговые сети были сопоставлены с сетевыми шаблонами, предоставленными GraphICA и полученными на основе 200 здоровых элементов управления. Только те узлы, найденные в шаблонах, рассматривались для дальнейшего анализа (т. е. узлы гиппокампальной сети=74, узлы сети режима по умолчанию=171, узлы сети правого исполнительного управления=164).
2,6|статистический анализ
2.6.1|Анализ ЭЭГ сна
Статистический анализ данных ЭЭГ сна проводился с использованием Matlab R2020b (Mathworks Inc., Шерборн, Массачусетс) с набором инструментов Fieldtrip с открытым исходным кодом (Oostenveld et al., 2011) и набором инструментов CircStats (Беренс, 2009). Анализ ограничен каналами Fz для медленных колебаний и медленных шпинделей и Cz для быстрых шпинделей. Не все переменные сна, использованные в нашем анализе, имели нормальное распределение. Все внутригрупповые сравнения описательных характеристик сна и свойств колебаний между сеансом сна после обучения и сеансом контроля сна были проверены с использованием непараметрических знаково-ранговых тестов Уилкоксона для зависимых выборок. Межгрупповые сравнения переменных сна в аллоцентрическом и эгоцентрическом состоянии были рассчитаны с помощью непараметрических U-тестов Манна-Уитни для независимых выборок. Для этих тестов были указаны медианные и квартильные значения переменных. P-значение<.05 was viewed as statistically significant.
2.6.2|Временная связь между обнаруженными медленными колебаниями и шпинделями
Координация медленных колебаний и веретен оценивалась при медленном сне, поскольку было показано, что связь веретена и медленных колебаний стабильна на стадии 2 и медленноволновом сне (Cox et al., 2017), даже несмотря на то, что тип медленные колебания различны (К-комплексы против дельта-волн). Общая временная связь между медленными колебаниями и событиями шпинделя рассчитывалась путем определения доли шпинделей, центр которых (т.е. максимальный минимум) находился в интервале ±1,2 с вокруг минимума выявленных медленных колебаний, а также количества медленных колебаний с веретена, центр которого находился в пределах ±1,2 с вокруг соответствующего минимума колебаний. Временное окно ±1,2 с было выбрано таким образом, чтобы охватить весь цикл медленных колебаний (0,5–1 Гц, т. е. 1–2 с). Всякий раз, когда два временных окна медленных колебаний перекрывались, то окно, находящееся дальше от центра шпинделя, удалялось. Точное время медленных колебаний и событий шпинделя визуализировалось с помощью гистограмм времени пери-событий (PETH) (рис. 2b) быстрых и медленных центров шпинделя (тестовые события), происходящих в течение интервала времени ± 1,2 с вокруг каждой впадины медленных колебаний (целевой событие). Вероятности возникновения начальных событий суммировались в пределах интервалов 100 мс и преобразовывались в проценты. Чтобы проверить временной характер PETH, мы реализовали процедуру рандомизации, случайным образом перетасовывая порядок ячеек PETH 1000 раз. Полученные суррогаты были усреднены для каждого человека и проверены на соответствие исходным PETH с использованием t-тестов зависимой выборки. Контроль множественных сравнений был достигнут посредством кластерного тестирования перестановок с 5000 перестановками (Марис и Оостенвельд, 2007).
2.6.3|Фазовая связь с синхронизацией по событию
Для анализа перекрестных частот с синхронизацией событий (Helfrich et al., 2018) были выбраны безартефактные испытания событий медленных колебаний по каналу Fz (±3 с вокруг максимального минимума медленных колебаний) и полоса -проходная фильтрация в диапазоне частот медленных колебаний (0,3–1,25 Гц). После применения преобразования Гильберта мы извлекли мгновенный фазовый угол из аналитического сигнала. В тех же испытаниях также применялась полосовая фильтрация между 9 и 12,5 Гц (компонент медленных шпинделей) и между 12,5 и 16 Гц (компонент быстрых шпинделей) для расчета огибающей амплитуды аналитического сигнала. Мы рассматривали только временной диапазон от 2 до 2 с, чтобы избежать артефактов на границах фильтра. Для каждого субъекта, канала и эпохи мы теперь определили максимальную амплитуду шпинделя и соответствующий фазовый угол медленных колебаний. Критерии Рэлея были рассчитаны для проверки равномерности распределения фаз по каждому субъекту. Были определены среднее круговое направление и результирующая длина вектора для всех событий NREM. PPC использовался в качестве объективной оценки постоянства фазового соотношения между шпинделями и медленными колебаниями (Винк и др., 2012) на основе спектров Фурье, запускаемых впадиной шпинделя, во временном окне от 3,5 до +3,5 с. (шаг 100 мс) и диапазон частот медленных колебаний от 0,3 до 3 Гц.

Китайская трава цистанхе
2.6.4|Частотно-временной анализ
Для дальнейшего описания временной связи между шпинделями и медленными колебаниями мы снова использовали ранее вычисленные испытания медленных колебаний (сегменты 6- s). Эти испытания были сопоставлены со случайно выбранным временным отрезком без артефактов продолжительностью 6 с на той же стадии сна, что и соответствующее медленное колебание, использованное в качестве базовых испытаний. Для частотно-временного анализа испытаний с медленными колебаниями и без них мы использовали суперсеты (Moca et al., 2021). Суперлеты состоят из серии вейвлетов Морле с одинаковой центральной частотой, но все более ограниченной полосой пропускания и более высоким частотно-временным разрешением, чем общепринятые подходы. В частности, мы применили дробное адаптивное суперлет-преобразование (FASLT) к предварительно обработанным данным медленных колебаний и базовых испытаний в диапазоне от 5 Гц до 20 Гц с шагом 0,25 Гц, с начальным порядком вейвлета 3 и интервалом порядка от 5 до 15 ( Барзан и др., 2021). Затем частотно-временные представления испытаний медленных колебаний и контрольных испытаний сравнивались для каждого испытуемого с использованием t-тестов независимой выборки. Полученные t-карты отражают увеличение/уменьшение диапазона частот как быстрого, так и медленного шпинделя для испытаний с медленными колебаниями по сравнению с испытаниями без них. Чтобы рассчитать контрасты внутри субъектов, мы нарисовали 100 случайных наборов испытаний базового уровня и испытаний с медленными колебаниями, сохраняя при этом соотношение испытаний стадии 2 и испытаний медленного сна. Т-карты для всех этих случайных наборов испытаний были усреднены для каждого испытуемого. отдельно для каждого состояния памяти t-карты проверялись на ноль с использованием кластерного теста перестановок с 5000 перестановками во временном окне от 1,2 до 1,2 с.
2.6.5|ФМРТ-анализ в состоянии покоя
Данные фМРТ трех сетей в состоянии покоя были проанализированы в RStudio 1.4.1103 (RStudio, Inc., Бостон, Массачусетс). Все анализы проводились отдельно для трех предварительно выбранных сетей состояния покоя (т. е. сети гиппокампа, сети режима по умолчанию, сети правого исполнительного управления) и основывались на узловых z-значениях, полученных для каждой IC, которые описывают структуру связности в функциональном сети в состоянии покоя. Мы исследовали три различных подхода к анализу данных, включая анализ теории графов, матрицы евклидовых расстояний и разложение по сингулярным значениям (SVD), из которых SVD наиболее подходил для текущего набора данных. SVD выполнялся на необработанных z-значениях, чтобы более точно отразить исходную организацию сетей в состоянии покоя. Пороговые значения z сформировали матрицу данных m n (m=кол-во участников 4 сеанса; n=кол-во узлов). В частности, SVD для разреженных матриц был выбран для уменьшения размерности, поскольку матрица данных с пороговым значением содержала в основном нулевые значения. Были выделены две основные моды на сеть, которые вместе объяснили 15–20% дисперсии данных. Каждый режим можно понимать как функциональную подсеть состояний покоя, основанную на дисперсии (см. фильмы S1–S4). В результате SVD мы получили усредненную реконструкцию сетей низкого ранга как приближение ранга r, которое описывает пространственное распределение соответствующей подсети, используя уравнение (2):
где A — исходная матрица данных, аппроксимируемая U, содержащим r левых сингулярных векторов, S, содержащим r сингулярных значений, и V, содержащим r правых сингулярных векторов. При подготовке к статистическому тестированию соответствующий левый сингулярный вектор (um, i) был масштабирован по его сингулярному значению (si, i), где i — i-я строка/столбец матрицы. Результатом (um, I si, i) является вектор-столбец, который представляет оценки участников для всех сеансов в i-й подсети. Эти значения можно интерпретировать как силу связности выбранной функциональной подсети для всех участников, независимо от сеансов и условий. Для каждой из двух подсетей полученные оценки участников анализировались как зависимые переменные с использованием линейной модели смешанных эффектов. Предикторы модели включали состояние сна (сон, бодрствование), сеанс (1–4 или до/после перерыва, до/после задания) и состояние памяти (аллоцентрическое, эгоцентрическое) в качестве фиксированных эффектов. Участники были смоделированы как случайные эффекты для четырех сеансов в состоянии покоя. Информационный критерий Акаике (Akaike, 1973), байесовский информационный критерий (Schwarz, 1978) и логарифмическое правдоподобие использовались для оценки соответствия модели.
3|ПОЛУЧЕННЫЕ РЕЗУЛЬТАТЫ
3.1|Дизайн исследования и производительность памяти
В настоящем исследовании использовалась парадигма 1-дня для проверки консолидации задачи на пространственную память (рис. 1a). Во время фМРТ-сканирования участники выполняли алло- или эгоцентрическое пространственное обучение и восстановление памяти в ранее проверенном виртуальном аналоге водного лабиринта для людей (Müller et al., 2018; Schoenfeld et al., 2017). Подробное описание задачи можно найти в первой публикации этого набора данных (Саманта и др., 2021). Вкратце, участники свободно перемещались по виртуальному острову, используя джойстик, чтобы достичь фиксированной целевой точки. На обучающем занятии это место было указано спрятанным сундуком с сокровищами. Однако во время извлечения участникам было поручено отметить местонахождение сундука с сокровищами, насколько им известно, без сундука. Аллоцентрические и эгоцентрические условия различались таким образом, что случайно выбранные участники начинали каждое испытание либо с одной и той же, либо с меняющейся стартовой позиции (рис. 1b). Производительность памяти измерялась как задержка достижения целевого местоположения из начальной точки. При извлечении данных участники, как правило, работали лучше в эгоцентрическом состоянии, чем в аллоцентрическом, и основное влияние сна на производительность памяти было значительным (рис. 1c; таблица 1; двусторонний дисперсионный анализ с алло/эго F1, 62=16 .78, p < .001 и режим сна/бодрствования F1, 62=3.84, p=.05). Непосредственно до и после сеансов обучения и восстановления функциональную связь оценивали с помощью фМРТ в состоянии покоя. В общей сложности это составляет четыре сеанса фМРТ в состоянии покоя по 9 минут каждый. В промежутках между пространственным обучением и восстановлением памяти полисомнография использовалась для измерения архитектуры сна (таблица S1). В экспериментальных условиях участники спали около 90 минут (93,48 ± 1,77, среднее значение ± стандартная ошибка среднего), в то время как контрольная группа смотрела нейтральный фильм в течение такого же времени. Примерно через 2 недели после эксперимента участники, находившиеся в состоянии сна, завершили сеанс контроля сна продолжительностью около 90 минут (103,30 ± 2,66, среднее значение ± SEM), что не сразу же последовало за опытом пространственного обучения. Последовательность двух сеансов сна не была уравновешена, чтобы испытуемые не знали об экспериментальных условиях во время тестового сеанса. Используя аналогичную схему задания, Гензель, Бёрле и др. (2014) и Genzel et al. (2012) получили сопоставимую продолжительность сна. Однако здесь участники спали значительно дольше в сеансе контроля сна, чем в сеансе тестирования сна (тест знакового ранга Уилкоксона, z = 2.68, p=.01). Этот эффект сеанса намекает на привыкание к лаборатории сна. Отличие от предыдущих исследований может быть связано с использованием других лабораторных условий, например, Genzel, Bäurle и соавт. (2014); Genzel et al., 2012) таковой была обозначена лаборатория сна (Институт психиатрии Макса Планка), а лаборатория сна в Институте Дондерса — лаборатория ЭЭГ (и поэтому менее «домашняя»).
3.2|Свойства сна во время сеанса тестирования и контроля
Было показано, что пространственно-временные механизмы во время медленного сна консолидируют опыт, закодированный во время предшествующего бодрствования (Maigret et al., 2016). Считается, что на системном уровне переживания реактивируются в гиппокампо-таламо-кортикальной сети во время сна, чтобы сформировать долгосрочные представления об этих переживаниях. Различные колебания, участвующие в консолидации памяти, могут координировать связь между этими структурами мозга (Genzel, 2020; Genzel, Bäurle, et al., 2014). Нас интересовали медленные колебания, а также медленные веретена (9–12,5 Гц) и быстрые веретена (12,5–16 Гц) во время медленного сна, которые могут играть особую роль в процессе консолидации памяти (Genzel & Robertson, 2015). . В соответствии с ранее сообщенной топографией этих колебаний сна в ЭЭГ человека (Adamczyk et al., 2015), мы сосредоточили наш анализ на фронтальных медленных колебаниях и медленных веретенах (т. е. канале Fz) и центральных быстрых веретенах (т. е. канале Cz; топографию связи см. на рисунке S3). Чтобы уловить конкретное влияние опыта пространственного обучения на архитектуру сна во время сеанса тестирования сна, мы сравнили описания сна, а также свойства веретена и медленных колебаний (см. Таблицу S1) между тестом сна и контрольными сеансами. Мы обнаружили, что участники контрольной сессии спали значительно дольше по сравнению с тестовой сессией. По сравнению с тестовым сеансом продолжительность быстрого шпинделя также была значительно выше в контрольном сеансе (знак-ранговый тест Уилкоксона, z = 2,91, p < 0,01). Далее мы оценили, может ли значительная разница в TST между тестовыми и контрольными сеансами предсказать эту разницу в продолжительности быстрого вращения шпинделя с учетом WASO. Однако существенного влияния TST на разницу амплитуд быстрых веретен во время сеансов сна не выявлено (множественная линейная регрессия, TST:=0.53, p=.61). Увеличение амплитуды быстрого веретена, аналогично увеличению TST, могло быть связано с неконтролируемым эффектом привыкания лаборатории сна. Тем не менее, мы предположили, что временная связь колебаний сна имеет решающее значение для консолидации памяти. В этом отношении мы не наблюдали каких-либо различий между сессиями, о чем будет сказано ниже.

РИСУНОК 1
3.3|Связь шпиндель-медленные колебания в сеансе испытаний и контроля
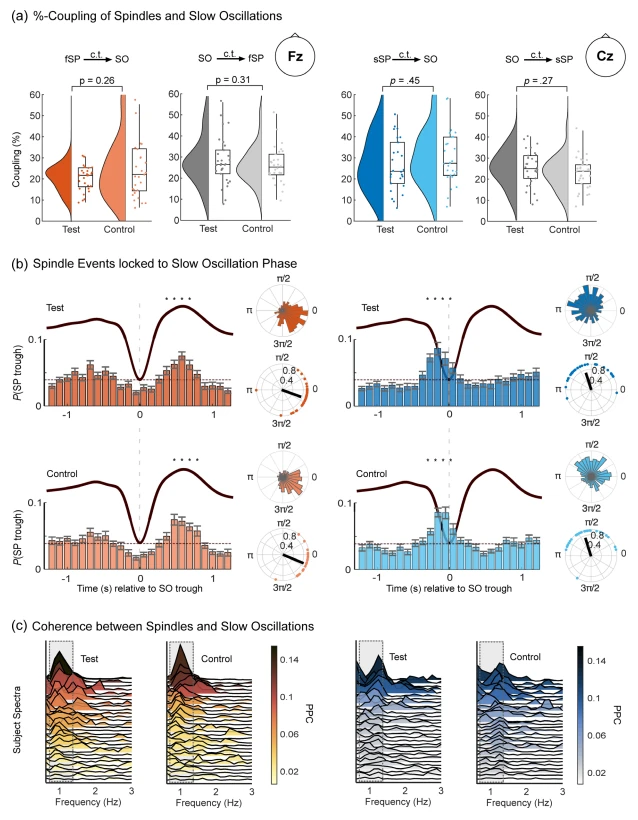
Связь между резкими волновыми рябьми, веретенами и медленными колебаниями может установить решающий временной интервал для закрепления учебного опыта (Гензель, Крус и др., 2014). Поэтому мы сосредоточились на временной взаимосвязи между веретенами и медленными колебаниями, чтобы дополнительно изучить разницу в микроархитектуре сна между тестами сна и контрольными сеансами. Сначала мы подсчитали количество максимальных провалов шпинделей (в %), возникающих за один цикл (интервал ±1,2 с) вокруг центра выявленных медленных колебаний (рис. 2а). В обоих сеансах мы обнаружили одинаковое количество быстрых веретен, связанных с медленными колебаниями (Знакоранговый критерий Вилкоксона, z = 1.14, p=.26) и медленных веретен, связанных с медленными колебаниями (Вилкоксон Знако-ранговый тест, z {{10}}.75, p=.45). И наоборот, примерно одинаковое количество медленных колебаний было связано с быстрыми веретенами (знак-ранговый критерий Вилкоксона, z=1.02, p=.31) и медленными веретенами (знак-ранг Вилкоксона). Ранговый тест, z {{20}}.10, p=.27) после обучения и при контроле сна. Эти данные позволяют предположить, что веретена и медленные колебания в равной степени связаны друг с другом. В целом мы обнаружили постоянную связь шпинделя и медленных колебаний в обоих сеансах сна, независимо от опыта пространственного обучения, проведенного непосредственно перед сеансом тестирования сна. Успешная консолидация памяти может зависеть от точности связи в десятки или даже сотни мс (Maigret et al., 2016; Muehlroth et al., 2019). Таким образом, мы проанализировали точную координацию шпинделя и медленных колебаний с использованием PETH (рис. 2b). PETH показывают вероятность появления максимальных провалов шпинделя во временном окне ±1,2 с вокруг событий медленных колебаний в интервалах времени 100-мс. Быстрые веретена возникали одновременно непосредственно перед пиком медленных колебаний и на пике медленных колебаний после минимума медленных колебаний (перестановки на основе кластеров: знак. кластер: 400–700 мс в тесте, p < 0,001; 500–800 мс в контроле, p < .001). С другой стороны, медленные веретена совпадали при переходе к впадине медленных колебаний и с ней (перестановки на основе кластеров: оба знака кластеров от 300 до 100 мс, p < 0,001). Устойчивость этого эффекта была проверена на эталонном распределении, полученном путем случайного перетасовки временных меток впадин шпинделя. Временная специфика связи шпинделя и медленных колебаний не различалась в течение двух сеансов сна, что еще раз указывает на наличие общего механизма связи, независимого от опыта пространственного обучения. Предыдущие результаты продемонстрировали более высокую силу связи веретена и медленных колебаний у молодых людей по сравнению с пожилыми людьми, а также после обучения крупной моторике (Cross et al., 2020 [препринт]; Helfrich et al., 2018). Мы были заинтересованы в выяснении этой последовательности фазовых отношений в контексте пространственного обучения. Полярные графики на рисунке 2b показывают фазу связи для одного примера субъекта и всей выборки, рассчитанную как мгновенную фазу медленных колебаний (0,3–1,25 Гц) во время максимальной амплитуды шпинделя по каналу Fz для медленных шпинделей (9–12,5 Гц). ) и канал Cz для быстрых шпинделей (12,5–16 Гц). Уже на уровне одного субъекта можно увидеть точную связь веретена и медленных колебаний, которая различна для быстрых и медленных веретен, но относительно постоянна в разных сеансах сна (см. полярные гистограммы, рисунок 2b). На уровне группы наиболее быстрые веретена возникали в диапазоне от 5,76 до 6,28 радиан медленных колебаний (Тест: 6,03 ± 0,56, Контроль: 6,07 ± 0,33, среднее значение ± SD), тогда как медленные веретена возникали в диапазоне от 1,57 до 2,62 радиан медленных колебаний. (Тест: 1,89 ± 0,79, Контроль: 1,87 ± 0,71, среднее значение ± SD; Рисунок 2e). Эти результаты соответствуют временной координации между веретенами и медленными колебаниями, показанными в PETH. Для оценки согласованности этих фазовых соотношений мы рассчитывали парную фазовую согласованность (ППФ; см. «Методы и материалы»). Максимальные значения PPC не различались ни для быстрых шпинделей, ни для медленных шпинделей между двумя сеансами сна (тесты Wilcoxon SignRank, максимальный PPC для быстрого шпинделя: z=0.451, p=.65, медленный шпиндель: макс. КПП: z=0.067, p=.95). Кроме того, мы наблюдали заметные индивидуальные различия в PPC (рис. 2c). Нас интересовало, связана ли эта изменчивость PPC с общим качеством сна участника (измеренным с помощью PSQI), которое не было статистически значимым (линейная корреляция, быстрые веретена: ρ=0.30, p=. 14, медленные шпиндели: ρ=0.15, p=.46). Таким образом, шпиндели постоянно были связаны с медленными колебаниями с определенным фазовым соотношением, которое подтверждает предыдущие результаты во временной области. Общие результаты сопряжения, представленные до сих пор, не различались между двумя сеансами сна. Как описано ранее, мы наблюдали более длительное общее время сна при контроле сна, чем при тестировании сна, что могло иметь компенсаторное воздействие на архитектуру сна, за которой скрывалась разница во взаимосвязи. Таким образом, мы представляем следующие результаты только для сеанса тестирования сна.
3,4|Мощность медленных колебаний шпинделя связана с производительностью памяти.
Установив общую временную и фазовую динамику связи веретена и медленных колебаний во время сеансов сна, мы приступили к анализу, сосредоточив внимание на двух состояниях памяти (алло и эго) во время сеанса тестирования сна, поскольку сон может оказывать отчетливое влияние на аллоцентрические процессы. против эгоцентрических пространственных воспоминаний. Возможные различия между группами были проверены на процентное связывание и PPC (рис. 2a,f). Ни степень связи шпиндель-медленные колебания, ни постоянство фазы шпиндель-медленные колебания существенно не различались между группами (U-критерий Манна-Уитни, % быстрого веретена: z = 1.12, p=. 27, % медленные шпиндели: z=0.09, p=.93, макс.PPC быстрые шпиндели: z=1.742, p=.08, макс. PPC медленные шпиндели: z=0.083, p=.94). В дальнейшем мы исследовали эту закономерность, сравнивая мощность колебаний в диапазоне частот шпинделя для отрезков времени с медленными колебаниями и без них (см. «Материалы и методы»). Испытания медленных колебаний были построены путем интервала ± 1,2 секунды вокруг случайно выбранных медленных колебаний. В этих испытаниях мощность в диапазоне частот шпинделя действительно значительно отличалась от случайно выбранных интервалов без медленных колебаний (для всех кластеров значений t: p < 0,001, рисунок 3a). Этот эффект одинаково присутствовал в обоих состояниях памяти, поскольку карта различий не содержала каких-либо значимых кластеров модуляции (рис. 3а). В заключение следует отметить, что ни один из показателей связи шпинделя и медленных колебаний не различался в зависимости от условий памяти. Результаты также соответствовали незначительному взаимодействию между типом тренировки и сном для поведенческого анализа (см. Рисунок 1c). Таким образом, мы решили объединить два условия памяти, чтобы увеличить статистическую мощность для дальнейшего тестирования. Рассматривая всю выборку во время сеанса тестирования, мы сначала проверили, является ли степень связи шпинделя и медленных колебаний просто случайным побочным продуктом возникновения событий шпинделя и медленных колебаний. Полученная степень связи значительно отличалась от распределения случайной выборки в 60% выборки (рис. 3b, тесты на перестановку: p <0,05, 1000 итераций на участника). Тем не менее, чтобы избежать потери статистической мощности и регрессии к среднему значению, мы рассчитали модуляции спектральной мощности во время испытаний с медленными колебаниями для всей выборки (рис. 3c). Мы обнаружили, что модуляция мощности во время испытаний с медленными колебаниями значительно отличалась от соответствующих контрольных испытаний в диапазонах частот шпинделя и ранее установленных временных интервалах (см. PETH, рисунок 2b). Затем мы провели корреляционный анализ между различиями в мощности управления медленными колебаниями (выраженными в t-значениях) и производительностью памяти отдельно для каждой временно-частотной точки в соответствующем кластере шпинделя, извлеченном из t-карты (рис. 3c). Мы обнаружили значимые ассоциации, тестируя бутстрепированное эталонное распределение корреляций ЭЭГ и поведения. Таким образом, мы смогли идентифицировать значимые корреляционные кластеры, отражающие связь между характеристиками памяти и конкретным паттерном модуляции активности ЭЭГ во время подъема медленных колебаний (см. «Материалы и методы»). Значительный кластер отрицательной корреляции был выявлен для быстрых шпинделей (кластер p < 0,01, max r=0,41, p < 0,01, рисунок 3c вверху). Аналогичным образом мы определили еще один значимый кластер отрицательной корреляции для медленных шпинделей (кластер p=.02, max r=.38, p=.02, рисунок 3c внизу): более быстрый- Мощность шпинделя и мощность медленного шпинделя в период медленных колебаний были связаны с лучшей производительностью памяти (т. е. с меньшей задержкой ответа). Эти эффекты были специфичны для сеанса тестирования сна, поскольку их нельзя было наблюдать для кластера с быстрым или медленным шпинделем в сеансе управления сном (рис. S4). Мы также провели этот корреляционный анализ отдельно для эгоцентрических и аллоцентрических групп (рис. S6). В аллоцентрической группе ни модуляция мощности с быстрым, ни с медленным шпинделем существенно не коррелировала с производительностью памяти. Результаты для эгоцентрической группы очень похожи на результаты, наблюдаемые для всей выборки. Интересно, что модуляция мощности медленного шпинделя показала противоположные тенденции в двух группах. Улучшение производительности памяти намекало на отрицательную связь с модуляцией мощности медленного веретена для аллоцентрической группы (кластер=0.07, макс. r=.50, p=.06, рисунок S6 Нижний левый). Эта ассоциация была значительно положительной для эгоцентрической группы (кластер p=0,03, макс. r=0,61, p=0,02, рисунок S6 внизу справа). Однако мы не стали исследовать эту тенденцию дальше, поскольку для аллоцентрической группы не удалось получить значимых результатов. В заключение мы обнаружили доказательства связи между координацией медленных колебаний и веретен с характеристиками памяти, которая была специфична для сна после обучения, в отличие от контрольного сеанса сна. Модуляции мощности медленного веретена могли быть вызваны в первую очередь эгоцентрической группой.
ФИГУРА 2
3,5|Функциональные сети состояния покоя меняются между сеансами
После анализа ЭЭГ сна мы сосредоточились на функциональных связях в состоянии покоя до и после обучения, консолидации и извлечения задачи памяти, чтобы исследовать консолидацию памяти на сетевом уровне в состояниях покоя. Для этого мы включили данные фМРТ четырех сеансов в состоянии покоя (т. е. 1=базовый уровень, 2=после обучения, 3=после перерыва, 4=после восстановления. ) в анализ. Нас особенно интересовали правая сеть исполнительного контроля, сеть режима по умолчанию и сеть гиппокампа. Анализ этого набора данных с помощью таск-фМРТ, проведенный Samanta et al. (2021) выявили, что регионы этих сетей меняли активацию в период консолидации, когда участники вздремнули, но не тогда, когда они бодрствовали. Таким образом, мы получили три сети в состоянии покоя с помощью GraphICA (Рибейро де Паула и др., 2017), инструмента для анализа сети в состоянии покоя. С целью уменьшения размерности мы рассчитали основные виды дисперсии для каждой сети с помощью SVD (см. «Методы и материалы»). Наконец, мы проверили влияние сеанса, условий сна и памяти на балл каждого участника в ранее определенном режиме. С помощью этого подхода мы могли определить (1) сколько функциональных подсетей содержалось в каждой сети и (2) как изменилась функциональная связность сетей для любой из наших экспериментальных переменных. Для правой сети исполнительного контроля мы выделили первичную подсеть, которая была сосредоточена в правой нижней теменной борозде, правой нижней теменной доле и правой дорсолатеральной префронтальной коре. В этой подсети мы обнаружили увеличение функциональной связи при выполнении задач в сеансах обучения и извлечения данных (рис. 4a; линейная модель смешанных эффектов, сон/бодрствование: t62 = 0.747, p=. 46 алло/эго: t62 = 0.477, p=.64, до разрыва/ после разрыва: t193=1.676, p=.10, до -задача/пост-задача: t193=2.808, p=.01). Это увеличение было обусловлено переходом от пост-разрыва к пост-извлечению (t193=2.468, p=.02). Напротив, подсеть основного режима по умолчанию с основным вовлечением задней части поясной извилины обычно уменьшала связность от производительности до и после выполнения задачи, и ее связность, как правило, была выше во время сна по сравнению с состоянием бодрствования (рис. 4b; линейные смешанные эффекты). модель, сон/бодрствование: t62 = 2.616, p=.01 allo/ego: t62=0.427, p=.67, pre-break/post -break: t193=1.726, p=.08, перед задачей/после задачи: t193 = 2.126, p=.04). Снижение функциональной связности можно объяснить значительным изменением от пост-разрыва к пост-извлечению (t193 = 2.451, p=.017). Однако основной эффект сна не может быть объяснен никакими экспериментальными манипуляциями и мог возникнуть случайно (рис. S5). Примечательно, что первичная подсеть гиппокампа, которая в основном задействовала гиппокамп и двустороннюю парагиппокампальную кору, продемонстрировала аналогичные изменения связности, что и правая сеть исполнительного контроля. В этом случае мы не только обнаружили увеличение функциональных связей до и после выполнения задачи, но также увеличение функциональных связей до и после перерыва (рис. 4c; линейная модель смешанных эффектов, сон/бодрствование: t62 = 0). 143, p=.89 алло/эго: t62=0.702, p=.49, до разрыва/после разрыва: t193=3.749, p <.001, до задачи/после задачи: t193=4.535, p <.001). Это нашло отражение в значительной разнице между исходным уровнем и после обучения (t193=3.586, p < .001), а также между периодами после перерыва и после извлечения (t193=3.338, p < .001). ). Наконец, мы проверили, связано ли изменение функциональных связей после разрыва и после извлечения, наблюдаемое во всех сетях, с производительностью памяти при извлечении. Этот эффект не был значимым для правой подсети исполнительного контроля (линейная регрессия,=0.016, p=.90), подсети режима по умолчанию (линейная регрессия,=0.655, p=.43) или подсеть гиппокампа (линейная регрессия,=0.596, p=.44). В целом, мы последовательно получили эффект до и после выполнения задачи во всех трех подсетях, с увеличением сети исполнительного контроля и гиппокампа и уменьшением сети режима по умолчанию. Только подсеть гиппокампа увеличила связность до и после разрыва, а основной эффект сна наблюдался для сети режима по умолчанию. Как показал наш анализ сна, фактор памяти (алло против эго) не влиял на изменения в сетях состояний покоя.

РИСУНОК 3

РИСУНОК 4
3,6|Зависимая от сна подсеть гиппокампа и связь быстрого веретена и медленных колебаний
Из анализа, проведенного Samanta et al. (2021), очевидно, что активация предклинья/ретросплениальной коры снижается после сна, но не тогда, когда участники бодрствовали в период консолидации. Аналогичным образом мы выделили вторую функциональную подсеть гиппокампа, сосредоточенную в двусторонней ретросплениальной коре и двусторонней миндалине (рис. 5а вверху). Мы идентифицировали эту подсеть на основе факторизации SVD с использованием критерия спектра сингулярных значений (см. «Методы и материалы»). Здесь мы также исследовали, как сеансы, условия сна и состояния памяти повлияли на результаты участников во втором режиме. В отличие от основных эффектов задачи и перерыва, обнаруженных для других сетей, теперь мы наблюдали взаимодействие между условиями сеанса и сна (линейная модель смешанных эффектов, взаимодействие сеанса * сна t191=2.086, p {{5} } .04). Функциональная связность подсети, похоже, снизилась только у тех участников, которые вздремнули в период консолидации. Этот эффект сохранялся при сравнении переходов от сеансов после обучения к сеансам после перерыва (t-критерий парной выборки, t95=2.3971, p=.02). Таким образом, мы также рассчитали значения разницы от одного сеанса к следующему и проверили, значительно ли они отличаются от 0. Значительное изменение произошло только для группы сна от пост-тренировки до после перерыва (t26 = 3.17, p=.01), для группы пробуждения этого не наблюдалось (t38 = 1 .363, p=.18). Поэтому нас интересовало, связано ли это снижение связности между сеансами после обучения и после перерыва в состоянии сна с описанной ранее связью шпинделя и медленных колебаний (см. Рисунок 3c). Снова был проведен корреляционный анализ, но на этот раз для различий в мощности контроля медленных колебаний (выраженных в t-значениях) и оценки изменений в подсети гиппокампа между сессиями после обучения и после перерыва. Корреляции рассчитывались для каждой частотно-временной точки в соответствующих веретенообразных кластерах, извлеченных из t-карты. Значительный кластер отрицательной корреляции был выявлен для быстрых шпинделей (кластер: p < 0,001, максимальный пиксель: ρ = 0,38, p < 0,01; рис. 5b, вверху) и для медленных шпинделей (кластер: p {{ 39}} .02, ρ = 0.30, p=.03): более высокая мощность веретена во время медленного колебательного состояния была связана с большим снижением функциональной связи подсети гиппокампа во время сна. . Кластеры частично перекрывались с кластерами значимой корреляции ответов, представленными ранее (см. Рисунок 3c). Эти данные свидетельствуют о связи между координацией медленных колебаний и веретен и снижением связности в подсети гиппокампа. Они аналогичны результатам, полученным для мощности и поведения связи шпиндель-медленные колебания. Поэтому мы стремились установить триадную взаимосвязь между показателем изменений в этой подсети гиппокампа, связью веретена и медленных колебаний и характеристиками памяти. Мы регрессировали оценку изменения сетей во время сна на производительность памяти при извлечении данных. Однако снижение связности в подсети гиппокампа не влияло на поведение существенно (линейная регрессия,=0.01, p=.94). Таким образом, мы обнаружили подсеть гиппокампа, которая снижает функциональную связь во время сеансов в состоянии покоя у участников, которые вздремнули. Функциональная связь оставалась в основном стабильной у тех участников, которые бодрствовали. Этот эффект не различался между двумя состояниями памяти. Снижение функциональной связи после обучения до момента перерыва было положительно связано со связью веретена и медленных колебаний во время сна. Таким образом, мы ожидали, что это изменение связности будет коррелировать с консолидацией памяти. Однако, в отличие от силы связи веретена и медленных колебаний (см. рисунок 3c), зависимое от сна снижение связности во второй подсети гиппокампа не предсказывает производительность памяти при извлечении информации.

РИСУНОК 5
4|ОБСУЖДЕНИЕ
В этом исследовании использовались данные фМРТ в состоянии покоя и ЭЭГ во сне для изучения консолидации пространственной памяти во время сна или в тот же период бодрствования. Испытуемые изучали целевое местоположение в виртуальном водном лабиринте либо с разными стартовыми точками (аллоцентрическая группа), либо с одной и той же начальной локацией (эгоцентрическая группа). Анализ ЭЭГ сна был сосредоточен на связи веретена и медленных колебаний, разделяя веретена на быстрые и медленные подтипы. ФМРТ в состоянии покоя была сосредоточена на изменениях в связях внутри ранее определенных сетей. Мы смогли показать, что связь веретена и медленных колебаний положительно коррелирует с характеристиками памяти после сна, а также со снижением связности в функциональной сети гиппокампа, включая ретросплениальную кору. Это снижение связности не было замечено в группе, которая бодрствовала. Увеличение связности, связанное с выполнением задач, наблюдалось в сети исполнительного управления и другой сети гиппокампа, тогда как снижение было обнаружено в сети режима по умолчанию. Эти изменения не были специфичными для группы сна, но наблюдались у всех участников. Мы повторили предыдущие результаты связи колебаний, показав, что медленные шпиндели вложены в переходный период от медленного колебания вверх к состоянию понижения, а быстрые шпиндели часто возникают непосредственно перед и внутри состояния медленного колебания вверх. Мы не обнаружили различий в связи веретена и медленных колебаний между аллоцентрическими и эгоцентрическими тренировочными группами. Точная координация между шпинделями и медленными колебаниями последовательно наблюдалась во временной, фазовой и частотно-временной областях. Удивительно, но эти эффекты не различались между сеансом тестирования сна, который следовал сразу за опытом пространственного обучения, и сеансом контроля сна, где предварительное обучение не проводилось. Тот факт, что мы не наблюдали разницы между сеансами сна, скорее всего, связан с методологическими ограничениями дизайна исследования — контрольным сном всегда был второй сон, поскольку также наблюдалась разница в общем времени сна. Анализ фМРТ в состоянии покоя был сосредоточен на сети гиппокампа, сети режима по умолчанию и сети правого исполнительного контроля. Эти сети были определены и позже разделены на подсети с использованием подхода, основанного на данных. Мы обнаружили изменения в масштабах всего мозга во время сеансов в состоянии покоя, которые соответствовали нашим предыдущим результатам анализа активности (Samanta et al., 2021). Связанные с задачей изменения связности в сети режима по умолчанию (уменьшение связности) в отличие от изменений в правой сети исполнительного управления (увеличение связности). Интересно, что сеть гиппокампа можно разделить на две подсети: первичную функциональную подсеть, сосредоточенную в гиппокампе и парагиппокампальной коре, и вторую функциональную подсеть с ретросплениальной корой в качестве узловой области. Функциональная связь в первичной подсети гиппокампа увеличивалась до и после выполнения задачи и до и после перерыва. Функциональная связность во второй подсети гиппокампа снизилась во время четырех сеансов в состоянии покоя (наиболее заметно во время перерыва на сон) только у участников, которые спали во время перерыва, но не у тех, кто бодрствовал. Как и результаты анализа нашего поведения и сна, условия памяти (алло или эго) не повлияли на изменения ни в одной из этих сетей. Наши результаты предполагают изменения связности функциональных сетей, связанные с задачами и консолидацией, которые могут быть связаны с реактивацией памяти.
Наконец, мы стремились связать результаты ЭЭГ сна с изменениями в связях в состоянии покоя и производительности памяти. Связь шпинделя и медленных колебаний была положительно связана с зависимыми от сна изменениями во второй подсети гиппокампа и с производительностью памяти. Это было характерно для сна после обучения и не наблюдалось в контрольном сеансе сна. В совокупности точная связь шпинделя и медленных колебаний, по-видимому, имеет поведенческое значение и потенциально имеет функциональное значение для консолидации памяти. Эта связь может быть механизмом, с помощью которого функциональные связи в сети гиппокампа модулируются во время консолидации памяти.
4.1|Изменения в связности в сетях состояния покоя
В целом было показано, что задачи могут влиять на активность мозга в состоянии покоя после выполнения задачи (Lewis et al., 2009). Например, модуляция зависимой от обучения спонтанной активности мозга после выполнения задания наблюдалась для когнитивных задач, включающих рабочую память, эмоции и двигательную тренировку (Lewis et al., 2009). Подобную модуляцию областей мозга, связанных с предыдущей задачей, можно понимать как форму консолидации состояния покоя, возможно, с участием тех же механизмов, что и консолидация памяти, связанной со сном (Tambini & Davachi, 2019). Анализ связности в состоянии покоя основан на корреляции различных вокселов внутри сети. Реактивация нейронной памяти и усиление сетей памяти должны привести к усилению совместной активации сети памяти, что, следовательно, потенциально может увеличить внутрисетевую связь, как мы измеряем здесь. Таким образом, наши результаты можно интерпретировать как изменения в реактивациях, происходящих в состоянии покоя. Мы показываем противоположные изменения в исполнительном контроле и основной сети гиппокампа в отличие от сети режима по умолчанию при работе до и после выполнения задачи. Сеть исполнительного контроля и гиппокампа увеличилась, тогда как сеть режима по умолчанию уменьшила функциональные возможности связи. Если эти изменения связности вызваны происходящими реактивациями, результаты будут указывать на то, что после выполнения задачи у человека возникает больше реактиваций как в сети исполнительного контроля, так и в гиппокампе. Мы также показали специфическое для сна снижение связности во второй сети гиппокампа, включая ретросплениальную кору. Потенциально эта сеть может быть связующим звеном между гиппокампом и нижележащими областями, такими как теменная кора, которая является частью сети исполнительного контроля (Genzel, 2020). Таким образом, снижение связности в этой сети будет указывать на то, что реактивации, происходящие в сети исполнительного контроля и гиппокампе, более независимы друг от друга после сна. Напротив, после пробуждения, когда такого снижения связности нет, реактивации в коре и гиппокампе все равно будут связаны. Ранее предполагалось, что после прогресса консолидации от гиппокампа к коре реактивация в коре происходит независимо от реактивации гиппокампа. Наши результаты потенциально могут поддержать эту идею. Однако измерение внутрисетевой связи в состоянии покоя очень косвенное, и поэтому этот вывод должен быть подтвержден более прямыми измерениями, такими как одновременные записи гиппокампа и корковых нейронов у грызунов.
4.2|Связанные с задачами изменения в правом исполнительном органе управления и сети режима по умолчанию.
Наши результаты согласуются с анализом этого набора данных, проведенным Samanta et al. (2021). Измеряя изменения активности BOLD во время сеансов обучения и извлечения информации, пока участники выполняли задание, мы наблюдали связанное со сном увеличение областей исполнительного контроля и уменьшение областей режима по умолчанию. В текущем анализе мы наблюдали увеличение количества внутрисетевых подключений для сети исполнительного управления и уменьшение в сети режима по умолчанию в различных сеансах в состоянии покоя. Следует отметить, что текущие результаты не специфичны для состояния сна, в отличие от результатов анализа активности Samanta et al. Это несоответствие может быть связано с разными подходами к анализу. Саманта и др. (2021) исследовали изменения в реакции BOLD, но не в функциональной связи, для двух сетей отдельно. Их анализ функциональных связей был основан на подходе, основанном на начальных значениях, который проверял взаимодействие между заранее определенным центром сети исполнительного контроля и остальной частью мозга. Напротив, мы использовали независимый компонентный анализ для определения наших сетей без априорных предположений и оценивали изменения функциональных связей только внутри каждой из этих сетей. Эти методологические различия, возможно, способствовали разным результатам двух анализов. Считается, что сеть исполнительного контроля распределяет внимание между зрительно-пространственными задачами и участвует в целенаправленном поведении и навигации. В частности, задняя теменная кора служит местом кортикальной интеграции для генерируемой гиппокампом аллоцентрической пространственной информации и эгоцентрической пространственной ориентации для управления целенаправленной навигацией (Nitz, 2012; Whitlock et al., 2008). Кроме того, есть свидетельства последовательного воспроизведения или закономерной реактивации областей мозга в состоянии покоя после выполнения задания, участвующих в кодировании предыдущего опыта (Hoffman & McNaughton, 2002; Staresina et al., 2013). В совокупности данные о центральной роли теменной коры в пространственной навигации и воспроизведении во время отдыха после выполнения задачи в соответствующих областях мозга согласуются с нашими выводами. Мы наблюдали усиление функциональных связей в правой сети исполнительного контроля, сосредоточенной в нижней задней теменной доле и бороздке, в состоянии покоя от выполнения задания до и после него. Ранние исследования нейровизуализации определили сеть режима по умолчанию как сеть, не выполняющую задачу, функциональная связность которой уменьшается во время выполнения задачи по сравнению с состоянием покоя (Buckner et al., 2008). Однако, используя меры теории графов, Lin et al. (2017) предоставили временное разрешение динамики сети в режиме по умолчанию во время отдыха перед задачей, выполнения задачи и отдыха после задачи. Они обнаружили снижение эффективности (меры функциональной интеграции) в сети режима по умолчанию во время отдыха после выполнения задачи по сравнению с отдыхом перед задачей. Глобальная эффективность снижалась во всей сети, а локальная эффективность снижалась конкретно в задней поясной извилине. Наши результаты также показывают, что сеть режима по умолчанию со значительным влиянием задней поясной извилины снижает функциональные связи между отдыхом до и после выполнения задачи. Следует отметить, что в результате анализа независимых компонентов (ICA) и процедуры сопоставления шаблонов задняя поясная извилина, префронтальная кора и латеральная задняя теменная кора внесли наибольший вклад в подключение к сети в режиме по умолчанию. Предыдущие исследования, в том числе Samanta et al. (2021) также считали гиппокамп и ретросплениальную кору функциональными центрами этой сети (Greicius et al., 2003; Vincent et al., 2006). Было предложено, что вместе все эти регионы образуют сеть памяти, в которой информация передается из гиппокампа через префронтальную и ретросплениальную кору в нижележащие теменные области во время консолидации (Genzel, 2020). Однако в нашем исследовании гиппокамп и ретросплениальная кора в основном были частью отдельной гиппокампальной сети. Таким образом, некоторые результаты нашего исследования, которые ранее были отнесены к сети режима по умолчанию, здесь обсуждаются отдельно для сети гиппокампа, включая гиппокамп, области височных долей и ретросплениальную кору. Наш конвейер обработки фМРТ был основан на ICA, который создавал максимально независимые пространственные сети. Таким образом, мы не смогли протестировать взаимодействие между функциональными сетями состояния покоя. Тем не менее, противоположные тенденции в правильном исполнительном управлении и функциональной связности сетей в режиме по умолчанию указывают на то же направление, что и предыдущие исследования. Было показано, что противоположные сдвиги между сетью режима по умолчанию и сетью исполнительного контроля облегчают переход между отдыхом и концентрацией внимания (Goulden et al., 2014; Menon & Uddin, 2010). Эта передача включает в себя перераспределение ресурсов внутри мозга для поддержки когнитивной обработки, связанной со стимулами. Согласно нашим наблюдениям, антагонизм в функциональных связях между двумя сетями может присутствовать не только во время перехода от отдыха к переходу от задачи, но и сохраняться даже во время отдыха после задачи и, таким образом, может отражать автономную координацию соответствующих областей для усиления закодированного опыта.
4.3|Роль сети гиппокампа в консолидации памяти
С помощью SVD мы смогли идентифицировать две функционально значимые подсети в сети гиппокампа: одну подсеть гиппокампа, сосредоточенную в гиппокампе и парагиппокампальной коре, и вторую подсеть гиппокампа, в первую очередь затрагивающую ретросплениальную кору. Эти подсети продемонстрировали отчетливые изменения функциональных связей во время четырех сеансов фМРТ в состоянии покоя. Функциональная связность первичной подсети гиппокампа увеличилась после выполнения задач в сеансах обучения и поиска. Этот вывод может лежать в основе аналогичной консолидации в состоянии покоя, описанной для сети исполнительного контроля. Часто было показано, что гиппокамп как место первоначального хранения памяти вызывает реактивацию, которая приводит к улучшению производительности памяти после отдыха (Dupret et al., 2010). Мы также наблюдали увеличение функциональной связи после 90-минутного перерыва в этой подсети. На первый взгляд, такое увеличение в период консолидации кажется противоречащим предлагаемым механизмам консолидации систем (Squire et al., 2015). Вместо этого можно было бы ожидать уменьшения вовлечения гиппокампа после периода консолидации. Однако следует иметь в виду, что текущий показатель — это не активность как таковая, а внутрисетевое подключение, и наш период консолидации был ограничен 90 минутами. Вторая подсеть гиппокампа в первую очередь затрагивает ретросплениальную кору, а также медиальные височные области. В литературе гиппокамп, области височных долей и ретросплениальная кора часто рассматриваются как часть сети режима по умолчанию, поскольку они демонстрируют сильную когерентность во время отдыха (Greicius et al., 2003; Vincent et al., 2006). Однако недавно была идентифицирована «медиальная височная» подсеть, снижение связности которой было связано с повышением производительности пространственной памяти (Barnett et al., 2021; van Buuren et al., 2019). Основные области этой сети включают медиальную височную долю и ретросплениальную кору. Эти структуры соответствуют нашей второй подсети гиппокампа. Следовательно, наша вторая подсеть гиппокампа может играть уникальную роль в консолидации памяти (de Sousa et al., 2019; van Buuren et al., 2019). Функционально связь второй подсети гиппокампа уменьшилась во время четырех сеансов в состоянии покоя, но только для участников, находящихся в состоянии сна. Медиальная височная доля и ретросплениальная кора были названы соответствующими для пространственной навигации на моделях людей и грызунов (Epstein et al., 2017; Peigneux et al., 2004). Эти области функционально модулируются во время сна с постепенным разделением во время глубокого сна (Spoormaker et al., 2010). Таким образом, вторая подсеть гиппокампа может координировать механизмы консолидации всего мозга, включающие активность медленных колебаний веретена во время сна (Cowan et al., 2020; Navarro-Lobato & Genzel, 2020). Действительно, мы показываем, что наша вторая подсеть гиппокампа, сосредоточенная в ретроспленальной коре, значительно модулируется сном и положительно связана с силой связи веретена и медленных колебаний, что также предсказывает производительность памяти. Соединение пульсаций, веретен и медленных колебаний может быть механизмом, с помощью которого воспоминания консолидируются во время сна из первоначального хранилища гиппокампа в последующие области, такие как задняя теменная кора, через ретросплениальную кору (Genzel, 2020; Hennies et al. , 2016). Наша вторая подсеть гиппокампа может быть нейронным субстратом, посредством которого сон оказывает благотворное влияние на консолидацию памяти в дополнение к общей форме консолидации первичной подсети гиппокампа, обсуждавшейся ранее. Подводя итог, мы показываем, что паттерны функциональных связей в мозге, лежащие в основе консолидации воспоминаний, не могут просто ограничиваться установленными сетями состояния покоя. Используя подход, основанный на данных, мы определили подсети на основе дисперсии. В частности, мы дифференцировали гиппокампальную сеть на гиппокамп-центрированный, независимый от сна компонент и ретросплениально-центрированный компонент, зависящий от сна. Обе эти сети могут участвовать в консолидации пространственной памяти. Тем не менее, только вторая подсеть гиппокампа может лежать в основе благотворного влияния сна на формирование памяти, о чем свидетельствует ее связь с силой связи веретена и медленных колебаний, которая предсказывает эффективность памяти. Наши результаты дают более четкое представление о сети гиппокампа при консолидации памяти, в которой ее функциональные связи в состоянии покоя по-разному меняются в процессе обучения, консолидации и извлечения задачи пространственной памяти в 1-дневной парадигме.