Клонирование генов, функциональная идентификация, структурный и экспрессионный анализ сахарозосинтазы Cistanche Tubulosa Ⅱ
Sep 13, 2024
Результаты и анализ
1 Добыча генов сахарозосинтазы у Cistanche Tubeulosa и клонирование гена CtSus
Using the amino acid sequence of the identified Arabidopsis thaliana sucrose synthase AtSus1 as a template[16], the sequence was aligned in the Cistanche tubulosa transcriptome database by local Blastp. At the same time, two sucrose synthase gene sequences with FPKM values greater than 10 were screened out in combination with transcriptome gene annotation and gene expression abundance data. They were named CtSus and CtSus1, respectively. The comparative transcriptome data of different parts of Cistanche (haustoria, underground parts and aerial parts) were further analyzed. The distribution of chemical components in different parts of Cistanche plants has been studied in depth. The results showed that glycoside compounds represented by phenylethanoid glycosides in Cistanche are mainly present in its underground parts, with the highest content in the haustoria[22]. In the early stage of this study, the content of phenylethanoid glycosides in plant materials used for comparative transcriptome sequencing of different parts was also determined, confirming that the content of phenylethanoid glycosides in different parts of Cistanche tubulosa was different in the following manner: haustorium>underground part>>надземная часть.
Высококачественная цистанхе трубчатая для мужского здоровья
Таким образом, значения уровня экспрессии FPKM двух кандидатов в гены сахарозосинтазы, полученные при первоначальном скрининге в данных транскриптома различных частей Cistanche Tubeulosa, были нормализованы с помощью Z-Score и проведен дифференциальный анализ (рис. 1A). Результаты показали, что ген CtSus имел самый высокий уровень экспрессии в гаустории, причем уровень экспрессии в подземной части был выше, чем в надземной части, что соответствовало характеру накопления гликозидных соединений в разных частях Cistanche Tubeulosa. тогда как уровень экспрессии гена CtSus1 в гаустории был низким. Поэтому на основании приведенных выше результатов ген CtSus был выбран для последующей амплификации последовательности, экзогенной экспрессии и функциональной идентификации. Используя кДНК Cistanche Tubeulosa в качестве матрицы, после ПЦР-амплификации был получен однополосный продукт с длиной ~2500 п.н. (рис. 1B). Продукт ПЦР извлекали из геля и лигировали с вектором клонирования, а полноразмерную кодирующую область целевого гена получали путем секвенирования. Длина последовательности CtSus составила 2418 п.н.
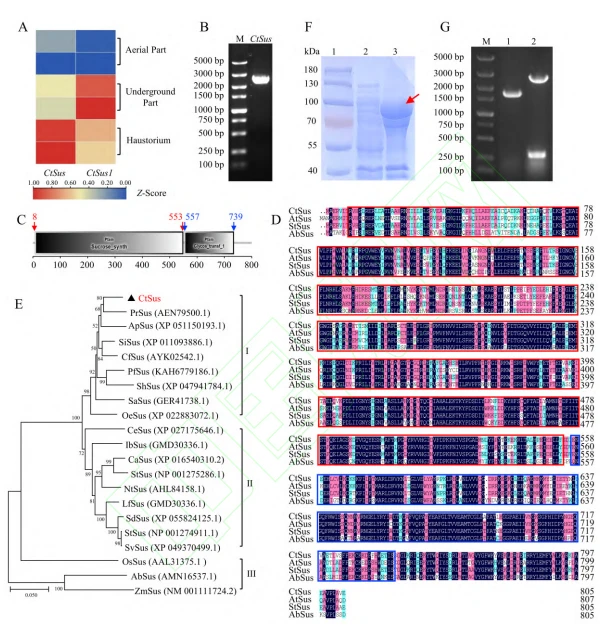
Рисунок 1. Исследование гена и клонирование CtSus из C. Tubeulosa и биоинформатический анализ кодируемого им белка. А: Уровни экспрессии генов CtSus и CtSus1 в различных частях C. Tubeulosa, нормализованные как Z-показатели на основе их значений FPKM; B: Амплификация гена CtSus; M: ДНК-маркер; C: консервативный домен белка CtSus, предсказанный с помощью SMART; D: Множественное выравнивание последовательностей CtSus и синтаз сахарозы, идентифицированных из других растений, включая Arabidopsis thaliana, Solanumtuberosum и Albuca bracteata. Домен синтеза сахарозы и домен переноса сахара представлены красными и синими прямоугольниками соответственно; E: Филогенетический анализ CtSus и сахаросинтетаз других растений; F: SDS-PAGE-анализ гетерологичной экспрессии CtSus с использованием вектора pCold™ I в E. coli. Дорожка 1: белковый маркер; Дорожка 2: фракция супернатанта; Дорожка 3: фракция осадков. Красной стрелкой показан белок CtSus. G: ПЦР колоний одного клона, содержащего обе рекомбинантные плазмиды. М: ДНК-маркер; 1: pET-28a-UGT71BD1; 2: pCold™ I-CtSus
Таблица 2. Сходство аминокислотных последовательностей CtSus и сахарозосинтаз, выявленных из других растений

2.3 Филогенетический анализ
Филогенетическое дерево, построенное с помощью программного обеспечения MEGA, было использовано для анализа филогенетических связей между сахарозосинтазой CtSus из Cistanche Tubeulosa и другими сахарозосинтазами растительного происхождения. Результаты показаны на рисунке 1E. Синтазы сахарозы растительного происхождения демонстрируют различные эволюционные ветви у двудольных (регионы I и II) и однодольных (регион III). CtSus находится в ветви двудольных, а все последовательности, которые наиболее тесно связаны с CtSus, происходят из растений Lamiaceae (Cistanche Tubeulosa — растение Lamiaceae Orobanchaceae), в то время как другая ветвь в основном состоит из растений Solanales, что еще раз указывает на высокую сохранность и гомология генов сахарозосинтазы растительного происхождения в эволюции растений в одном и том же порядке. Среди них сахарозосинтаза PrSus (AEN79500.1) из Phelipanche ramosa растения Orobanchaceae наиболее тесно связана с CtSus.
3 Анализ экзогенной экспрессии и активности CtSus
3.1 Экзогенная экспрессия гена CtSus Плазмиды pET-28a-CtSus, pET-24b-CtSus и pCold™ I-CtSus, подтвержденные секвенированием, переносили в компетентную к экспрессии E. coli Transetta (DE3), и положительные клоны подвергали скринингу с помощью ПЦР колоний для проверки секвенирования. Полученные рекомбинантные экспрессирующие штаммы индуцировали низкой температурой IPTG для экспрессии белка, бактерии собирали центрифугированием и добавляли буфер для лизиса, чтобы разрушить бактерии, чтобы получить супернатант и осадок, и для обнаружения проводили SDS-PAGE. Результаты показали, что когда pET-28a и pET-24b использовались в качестве векторов экспрессии, CtSus не экспрессировался в E. coli, тогда как когда pCold™ I использовался в качестве вектора экспрессии, чистый CtSus Полоса рекомбинантного белка была обнаружена в области ~ 100 кДа, что соответствовало его теоретически предсказанной относительной молекулярной массе 92,2 кДа (рис. 1F).
3.2 Цельноклеточная трансформация
Чтобы предварительно проверить каталитическую функцию CtSus, был сконструирован штамм, совместно экспрессирующий CtSus и ген гликозилтрансферазы UGT71BD1. UGT71BD1 был клонирован и идентифицирован из Cistanche Tubeulosa и представляет собой UDP-глюкозилтрансферазу, которая может широко принимать ароматические соединения, такие как фенилэтаноидные гликозиды, различные типы флавоноидов, стильбен и кумарин, в качестве рецепторов и катализировать реакцию глюкозилирования фенольной гидроксильной группы субстрата с использованием UDP-глюкозы. в качестве донора сахара [18]. Введение CtSus теоретически может обеспечить более достаточный гликозильный донор UDP-глюкозы для реакции глюкозилирования, катализируемой UGT71BD1, тем самым способствуя переходу равновесия реакции в сторону образования продуктов гликозилирования, тем самым увеличивая выход продуктов гликозилирования. Плазмиду pCold™ I-CtSus и плазмиду pET-28a-UGT71BD1 одновременно трансформировали в компетентную к экспрессии E. coli Transetta (DE3). Отдельные клоны, содержащие обе рекомбинантные плазмиды, были проверены с помощью ПЦР колоний, а положительные рекомбинантные экспрессирующие штаммы были получены путем проверки секвенирования (рис. 1G). Совместную экспрессию двойного гена индуцировали in vitro, и в качестве контрольной группы использовали штамм pET-28aUGT71BD1, экспрессирующий один ген. Активность CtSus в катализе образования донора УДФ-глюкозы была предварительно проверена путем трансформации цельных клеток. Результаты ВЭЖХ и масс-спектрометрии высокого разрешения показали, что при проведении реакции трансформации цельных клеток с аконитином 1 и ресвератролом 2 в качестве субстратов образование очевидных продуктов гликозилирования было обнаружено после 24 часов трансформации, как показано на рисунке 2.
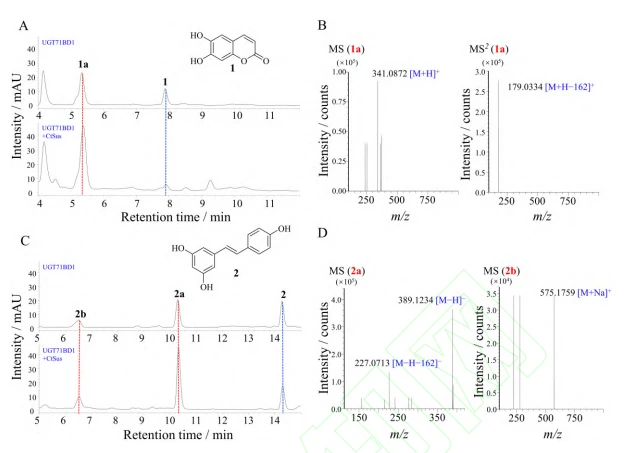
Рисунок 2. Биотрансформация цельных клеток субстрата 1 или 2 рекомбинантным штаммом, несущим UGT71BD1, или рекомбинантным штаммом, несущим UGT71BD1, связывающимся с CtSus, соответственно. А: ВЭЖХ-хроматограммы полноклеточной биотрансформации субстрата 1. Длина волны обнаружения составляла 360 нм; B: спектры HRESI-MS и MS2 продукта 1a; C: ВЭЖХ-хроматограммы полноклеточной биотрансформации субстрата 2; Длина волны регистрации составляла 330 нм. D: Спектры HRESI-MS продуктов 2a и 2b.

Когда 1 (m/z 179.034 4 [M+H]+, молекулярная формула C9H6O4) использовали в качестве субстрата, хроматографический пик продукта 1a (m/z 341.087 2 [M+H]+, предсказанная молекулярная формула C15H16O9) был обнаружен при 5,39 мин, что соответствовало УФ-излучению. поглощение субстрата и контрольного продукта. В то же время в спектре MS2 1a был обнаружен фрагментный пик с m/z 179.033 4 [M+H]+, который образовался в результате потери 1a молекулы глюкозы (162 Да), что указывает на то, что 1а представлял собой продукт субстрата 1, связанного с молекулой глюкозы. Коэффициент конверсии рассчитывали путем интегрирования площади пика. Было обнаружено, что скорость конверсии цельных клеток UGT71BD1, катализирующих субстрат 1, в образование гликозилированного продукта 1а, составила 71,87%, а добавление CtSus увеличивало скорость конверсии реакции до 95,84%, что в 1,3 раза выше, чем в контрольной группе. Когда субстратом было соединение 2 (m/z 227.072 5 [MH]-, молекулярная формула C14H12O3), хроматографические пики продукта 2a (m/z 389.123 4 [MH]-, предсказывали молекулярную формула C20H22O8) и 2b (m/z 575.175 9 [M+Na]+, предсказанная молекулярная формула C26H32O13), соответствующие характерному УФ-поглощению субстрата и контрольного продукта, были обнаружены при 10,32 и 6,52 мин соответственно. . Пик фрагмента был обнаружен при 3 [MH]-, который возник в результате потери одной молекулы глюкозы (162 Да), что указывает на то, что 2a был продуктом субстрата 2, соединенного с одной молекулой глюкозы. Путем сравнения с литературными данными [18] и информацией предсказания масс-спектрометрии было установлено, что продукт 2b является продуктом субстрата 2, связанного с двумя молекулами глюкозы. Коэффициент конверсии рассчитывали с использованием интегрированной площади пика. Установлено, что добавление CtSus позволяет увеличить скорость конверсии реакции гликозилирования субстрата 2 с 64,01% до 78,51%, при этом выход моносахаридного продукта 2а увеличивается с 45,09% до 63,58%, а выход дисахаридного продукта 2б изменилась с 18,92% до 14,93%.

3.3. Очистка рекомбинантного белка CtSus и идентификация ферментативной активности in vitro.
Результаты эксперимента по трансформации цельных клеток позволяют предположить, что CtSus обладает активностью катализа продукции активного донора глюкозы UDP-глюкозы. Для дальнейшей прямой проверки этой каталитической активности посредством ферментативно-каталитической реакции in vitro слитый белок гена CtSus в системе экспрессии pCold™ был выделен и очищен с помощью аффинной хроматографии. Результаты показали, что при использовании pCold™ I в качестве вектора экспрессии рекомбинантный белок экспрессировался в больших количествах, но главным образом в осадке. Когда в качестве вектора экспрессии использовался pCold™ TF, ген CtSus экспрессировался в больших количествах в E. coli (рис. 3А). Гибридный белок очищали с помощью аффинной хроматографии HisTrap FF и подвергали ферментативной каталитической реакции in vitro. Результаты показаны на рисунке 3B. Когда в качестве субстратов использовались сахароза и УДФ, по сравнению с группой отрицательного контроля новый пик продукта был обнаружен через 10,32 мин. Время его удерживания и поглощение УФ-излучения соответствовали УДФ-глюкозе. По сравнению со стандартом было доказано, что продукт представляет собой УДФ-глюкозу. Однако, поскольку слитый белок, экспрессируемый вектором экспрессии pCold™ TF, содержит большую растворимую метку триггерного фактора (размер белка-метки составляет 48 кДа), он будет оказывать большое влияние на каталитическую активность белка. Таким образом, метка слитого белка была дополнительно разрезана ферментом фактора Ха, а белок CtSus без экзогенных меток был очищен (рис. 3А). Белок подвергли ферментативному катализу in vitro, и результаты показали, что выход УДФ-глюкозы увеличился с 3,53% до 10,66%.
(Рисунок 3Б). Вышеуказанные результаты подтвердили активность CtSus в катализе продукции УДФ-глюкозы посредством ферментативного катализа in vitro, а также показали, что наличие большой аффинной метки способствует растворимой экспрессии CtSus, но также существенно влияет на каталитическая активность фермента vitro.

Рисунок 3. Гетерологичная экспрессия и функциональная идентификация CtSus. A: SDS-PAGE-анализ белков CtSus. Дорожка 1: белковый маркер; Дорожка 2: рекомбинантный CtSus с триггерным фактором; Дорожка 3: Расщепление метки триггерного фактора с использованием протеазы фактора Ха с получением белка CtSus, отмеченного красной стрелкой. B: Ферментативные анализы invitro с использованием слитого белка и белков CtSus, не содержащих триггерных факторов, для катализа синтеза УДФ-глюкозы в присутствии сахарозы и УДФ, соответственно, с эталонным стандартом УДФ-глюкозы. В качестве контрольной группы в тех же условиях использовали вареный белок. Длина волны обнаружения составляла 260 нм.